혈액 공급 Nematocera 파트 1의 D7 단백질 구조 및 생리학적 역할에 대한 개요
Jun 14, 2023
간단한 요약:
벡터는 한 숙주(인간 또는 동물)에서 다른 숙주로 감염성 병원균을 옮길 수 있는 유기체입니다. 많은 매개체(모기, 모래파리, 진드기 포함)에는 한 가지 공통된 특징이 있습니다. 바로 피를 빨아먹는(혈액을 섭취하는) 절지동물입니다. 그들이 척추동물 숙주를 물 때마다 피부 및 혈관 손상이 일련의 반응을 유발하여 입으로 가는 혈류를 방해하고 가려움증과 통증으로 인해 숙주가 의식을 잃도록 할 수 있습니다. 그럼에도 불구하고 그들의 타액에는 이러한 숙주 반응(지혈, 염증 및 면역)에 대응할 수 있는 분자 칵테일이 포함되어 있어 성공적으로 섭취할 수 있습니다.
여러 번 그들이 전달하는 병원체는 타액과 함께 숙주에 주입됩니다. 따라서 벡터 타액의 구성을 이해하는 것은 생물학 및 벡터 능력을 연구하고 전파하는 질병(새로운 백신 후보 포함)을 제어하는 새로운 방법을 제안하는 데 매우 중요합니다. 중요한 타액 단백질 패밀리 중 D7은 피를 빨아먹는 Diptera에서 풍부하게 발현되며 Odorant-Binding Proteins(OBP)와 관련이 있습니다. 여기에서 우리는 D7 단백질의 구조, 기능 및 진화에 대한 광범위한 검토를 제공하고 OBP 유사 도메인의 유전자 복제 및 수정이 어떻게 다른 조혈성 Diptera 종에서 기능의 획득 및 상실로 이어지는지 논의합니다.
감염성 병원체는 감염을 일으킬 수 있으며, 면역 체계는 이러한 병원체를 방어하고 감염 발생을 방지하는 역할을 합니다. 면역 체계는 병원체를 식별하고 파괴하는 데 중요한 역할을 합니다. 감염성 병원체는 재감염을 방지하는 항체 및 세포 면역 반응을 생성하도록 면역 체계를 유도합니다.
그러나 특정 병원체는 면역 체계의 방어 메커니즘을 우회하거나 약화시켜 면역력을 감소시켜 감염 위험을 증가시킬 수 있습니다. 예를 들어, HIV는 면역 체계의 CD4+ T 세포를 공격하여 면역 체계 기능을 방해하고 감염을 쉽게 만듭니다.
또한 약해진 면역력은 특정 감염을 더 심각하고 치료하기 어렵게 만들 수 있습니다. 따라서 감염성 질환의 예방과 치료를 위해서는 감염성 병원체와 면역과의 관계를 이해하는 것이 매우 중요하다. 이러한 관점에서 우리는 면역력을 향상시켜야 합니다. Cistanche는 면역력을 크게 향상시킬 수 있습니다. 육류의 다당류는 인간 면역 체계의 면역 반응을 조절하고 면역 세포의 스트레스 능력을 향상시키며 면역 세포의 살균 효과를 높일 수 있습니다.

추상적인:
곤충이 척추동물 숙주를 물 때마다 피어싱으로 인한 피부 및 혈관 손상은 지혈, 염증 및 면역을 포함한 일련의 반응을 유발합니다. 이 중복되고 상호 연결된 반응 세트는 궁극적으로 혈액 응고, 가려움증 및 통증을 유발하여 호스트 인식으로 이어져 최상의 시나리오에서 먹이 공급 중단을 초래합니다. 그럼에도 불구하고 조혈 절지동물의 타액에는 성공적인 혈액 공급에 중요한 복잡한 분자 칵테일이 포함되어 있습니다.
흡혈 절지동물의 타액에서 지금까지 기술된 중요한 단백질 군 중에는 흡혈 Nematocera에서 풍부하게 발현되는 D7이 있습니다. D7 단백질은 곤충 Odorant-Binding Proteins(OBP)와 먼 관련이 있으며, 낮은 서열 동일성에도 불구하고 구조적 유사성의 관찰로 인해 OBP와 마찬가지로 작은 소수성 화합물에 결합/격리해야 한다는 제안이 나왔습니다. 이 패밀리에 속하는 구성원은 각각 하나 또는 두 개의 OBP 유사 도메인을 포함하는 짧은 형식과 긴 형식으로 나뉩니다. 여기에서 우리는 D7 단백질의 구조와 기능에 대한 리뷰를 제공하고, 진화 과정에서 유전자 복제와 OBP 유사 도메인의 일부 변형이 어떻게 다양한 조혈성 Diptera 종 사이에서 기능의 획득과 상실로 이어지는지에 대해 논의합니다.
키워드:
D7 단백질; 냄새 결합 단백질; 벡터 생물학; 조혈; 벡터 타액; 지혈; 염증.
1. 소개
매개체 매개 질병은 증상, 특성, 병인 및 매개체 측면에서 매우 다양합니다. 이러한 다양성에도 불구하고 대부분의 알려진 벡터가 공유하는 공통적인 특징은 이들이 조혈 절지동물이라는 사실입니다. 혈액을 섭취하는 능력은 숙주를 찾고, 피부를 뚫고 혈액 공급원을 찾고, 나중에 소화하기 위해 혈액을 빨아들이고, 소화로 인해 생성된 산화 스트레스를 처리하는 능력을 포함하여 많은 문제를 제기합니다([1–3]에서 검토됨). ).
곤충이 척추동물 숙주를 물 때마다 피부 및 혈관 손상은 지혈, 염증 및 면역을 포함한 일련의 반응을 유발합니다[1,2,4-8]. 이러한 복잡하고 중복되는 생물학적 과정은 상호 연결되어 있으며 에이코사노이드, 바이오제닉 아민, 응고 및 보체 인자를 포함한 많은 종류의 매개체의 생산/분비로 인해 전파될 수 있습니다.
그 자리에서 그들은 (혈관 수축, 혈소판 응집 및 혈액 응고로 인해) 조혈 절지 동물의 입 부분으로의 혈류를 방해하고 (가려움증과 통증으로 인해) 숙주 인식을 유발합니다. 그럼에도 불구하고 피를 먹는 절지 동물의 타액에는 혈액 포식의 성공에 중추적인 역할을 하는 숙주 방어에 대응할 수 있는 분자의 똑같이 복잡하고 중복된 혼합이 포함되어 있습니다([1,2,4-8]에서 검토). 실제로, Ribeiro가 이전에 언급한 바와 같이, 조혈 절지동물은 "살아있는 주사기"이며 이들의 타액은 여전히 상대적으로 개발되지 않은 약리학적 활성 분자의 공급원입니다[4].
조혈 절지동물의 타액에 항응고제 분자가 존재한다는 사실은 지난 세기 초에 처음 보고되었으며[9,10], 수혈에서 타액 분비의 중요성에 대한 증명은 800년대에 처음 제안되었습니다[11-13] . 그러나 타액의 구성과 그 구성 요소의 특정 기능은 여전히 잘 이해되지 않았습니다. 지난 수십 년 동안 대규모 시퀀싱 및 프로테오믹스를 사용하여 타액 구성을 더 잘 이해할 수 있었지만 그 복잡성과 알려진 것이 얼마나 적은지도 밝혀졌습니다[2,14]. 절지동물 진화 과정에서 조혈 작용이 독립적으로 여러 번 발생했기 때문에 이 습관에 의해 부과된 문제를 처리하는 많은 방법이 다른 곤충 목에서 나타나거나 동일한 속 내에서도 숙주 방어에 대응하기 위한 단백질 레퍼토리의 광범위한 변이로 이어집니다. 물린 [2,4,5,7,15,16].
흡혈 절지동물의 타액에서 지금까지 기술된 중요한 단백질 패밀리 중 D7은 조혈성 Diptera에서 풍부하게 발현되며 [17-19] 곤충 냄새 결합 단백질(OBP)/페로몬 결합 단백질(PBP)과 관련이 있습니다. .
곤충에서 OBP는 일반적으로 100~160개의 잔기 범위이지만 Diptera에 설명된 "비정형/두 도메인" 또는 "Plus C" 하위 패밀리에 속하는 일부 구성원에서 관찰된 바와 같이 최대 300개의 아미노산을 가질 수 있습니다[20–22 ]. 그들은 다양한 순서로 존재하며 주석이 달린 OBP 유전자의 수는 아미노산 서열뿐만 아니라 종에 따라 많이 다릅니다.
그럼에도 불구하고 그들의 시스테인은 고도로 보존되어 있습니다(고전적으로 6개이지만 이 수는 4인치 마이너스 C OBP에서 8인치 플러스 OBP, 심지어 9 또는 10까지 다양할 수 있음). ,23]. 리포칼린 상과(SCOP: 3001332)에 속하는 전 단백질인 척추동물 OBP와 달리, 곤충 OBP는 전 단백질로 분류되며 곤충 페로몬/냄새 결합 상과(SCOP ID: 4000957)에 속합니다. 구성원 간의 낮은 서열 동일성에도 불구하고, 고전적으로 곤충 OBP는 소수성 잔기로 둘러싸인 결합 공동을 형성하는 3개의 이황화 결합에 의해 일반적으로 안정화된 6 - 나선을 갖는 매우 특징적인 3차 구조를 가지고 있습니다[20,24-26 ]. 1차 구조의 많은 수와 다양성은 전체 구조를 유지하면서 리간드 측면에서 매우 다재다능하게 만들었지만 모두 한 가지 공통점이 있습니다. 바로 작은 소수성 분자에 결합할 수 있는 능력/잠재력입니다.

그럼에도 불구하고 D7 단백질은 침샘에서 풍부하게 발현되는 혈액을 공급하는 Nematocera로 제한됩니다. 이 계열의 구성원은 (1) D7 관련(D7r)이라고도 하는 짧은 형태(D7S)로 분류되며 분자량은 약 15-17kDa이며 하나의 OBP 유사 도메인을 포함합니다(그림 1B). (2) 2개의 OBP 유사 도메인으로 구성된 약 30-38kDa의 분자량을 갖는 긴 형태(D7L)(도 1C). Arcà와 그의 동료들[27]에 의해 처음 제안되고 나중에 X선 회절 결정학[7,28-30]에 의해 관찰된 바와 같이, OBP와 낮은 서열 유사성에도 불구하고 D7 단백질 도메인 구조는 다음과 같이 구성되어 있어 OBP와 매우 유사합니다. 나선(일반적으로 6이 아닌 7–8 -나선), 소수성 분자에 결합하기에 적합한 소수성 포켓(그림 1B, C)을 형성합니다.

지금까지 특성화된 대부분의 D7 단백질은 흡혈 Diptera의 타액에서 발견되었으며, 그곳에서 항지혈 및/또는 항염증 분자로 작용하여 혈액 공급을 촉진합니다. 본 논문에서는 단백질 구조, 기능 및 진화와 같은 D7 및 D7-에 대한 포괄적인 검토를 제공하고 일부 측면을 절지동물 OBP 및 벡터 생리학과 관련된 기타 단백질 계열과 비교합니다.
2. D7s: 첫 번째 유전자의 설명에서 다양성, 분포 및 기능에 관한 단서까지
D7 단백질을 암호화하는 첫 번째 유전자는 1991년 Aedes aegypti[31]에서 분리 및 설명되었으며, 37kDa 단백질을 생성하는 여성 침샘에서 풍부하고 독점적으로 발현되는 것으로 나타났습니다. 이 유전자의 코딩 영역에 대한 안티센스 RNA로 프로브된 해부된 여성 타액선을 사용한 제자리 하이브리드화는 그 발현이 주로 남성(phytophagous)과 비교했을 때 여성(hematophagous)에서 매우 잘 분화되는 영역인 원위 측엽 및 내측 엽에 있음을 밝혔습니다. , 자사 제품이 수혈에 관여할 가능성이 매우 높다는 것을 암시합니다. 나중에 Anopheles gambiae의 타액선에서만 발현되고 신호 펩타이드가 포함된 제품을 식별하기 위한 선구적인 연구에서 6개의 cDNA가 분리되었습니다.
그 중 3개는 여성 타액선에서 풍부하게 발현되는 것으로 나타났으며 이전에 기술된 Aedes aegypti D7과 유사하지만 더 짧기는 하지만 유사한 전사물을 암호화하여 이것이 새로운 단백질 계열임을 시사합니다. 세 가지 모두 Aedes D7 C-말단 도메인과 완전히 일치하므로 D7- 관련 단백질(D7r): D7r1–D7r3[32]으로 명명되었습니다. 마찬가지로, 그것들 중 하나만(D7r1) 내측 엽에서도 발현되었지만[32] 여성 원위 측엽에서 발현되었습니다.
몇 년 후 네 번째 D7r(D7r4)도 Anopheles gambiae 여성 침샘에서 발견되었으며 염색체 3R에서 클러스터를 형성하는 다른 세 가지 형태에 가깝게 위치하는 것으로 나타났습니다[27]. 정렬되었을 때, 이 4개의 전사물은 53%에서 73% 범위의 유사성을 가졌으며 매우 중요한 것은 OBP 및 페로몬 결합 단백질(PBP)과 낮은 수준의 유사성을 가졌으나 4개의 시스테인은 더듬이와 관련된 보존된 위치에 위치했습니다. 및 비 안테나 OBP. 낮은 서열 유사성에도 불구하고, 2차 구조 예측은 OBP와 구조적 유사성을 시사했으며, 따라서 D7은 -나선으로 둘러싸인 소수성 결합 포켓을 가질 수 있고 작은 소수성 분자, 아마도 숙주 반응에 관여하는 매개체(예: 염증 및 지혈), 여성 타액에 풍부하고 배타적이라는 사실을 감안할 때 [27].

이러한 An. gambiae 짧은 형태는 Ae의 C-말단에 정렬됩니다. aegypti D7L과 밀접하게 관련된 종의 다른 구성원을 발견한 Southern blot 분석은 이 유전자 가족의 구성원이 다른 모기 종에 존재할 수 있고 이러한 유전자에 의해 암호화된 길이가 다른 단백질이 유사한 기능을 가질 수 있지만 다른 표적은 기본 구조의 차이 [27].
실제로 Suwan과 동료들은 Anopheles stephensi의 타액선에서 하나의 D7L 및 2D7-관련(짧은) 형태를 암호화하는 유전자와 긴 형태 단백질을 인식하기 위해 생성된 다클론 항체를 사용한 웨스턴 블롯이 교차했다고 처음으로 보고했습니다. D7rs와의 반응성[33]. 이것은 실제로 긴 형태와 짧은 형태가 같은 종에서 발견될 수 있음을 보여주는 최초의 보고서였습니다. 그런 다음, 후속 연구에서 Anopheles arabiensis, Aedes aegypti 및 Anopheles darlingi [17,18]를 포함한 다른 모기과(Culicidae) 종과 Psychodidae과에 속하는 다른 조혈성 Diptera에서 이 과의 다른 구성원이 존재한다고 보고했습니다. 모래 파리) [17].
전체적으로 이러한 연구는 다음과 같이 강력하게 제안했습니다. (1) D7은 여성 타액선에서만 독점적으로 발현되는 조혈 쌍시목에 널리 퍼져 있는 단백질 계열이므로 혈액 공급에 중요한 역할을 할 수 있습니다. (2) 길이와 아미노산 서열이 다른 D7 단백질이 서로 다른 종과 같은 종 내에 존재했는데, 아마도 다양성을 생성하는 유전자 복제의 결과일 것입니다. (3) 추정되는 표적은 염증 및/또는 지혈 매개체와 같은 작은 소수성 분자여야 합니다[27,33]. 그럼에도 불구하고 그들의 기능은 여전히 파악하기 어려웠습니다.
3. 타액 D7 단백질은 항염증 및 항지혈 분자입니다.
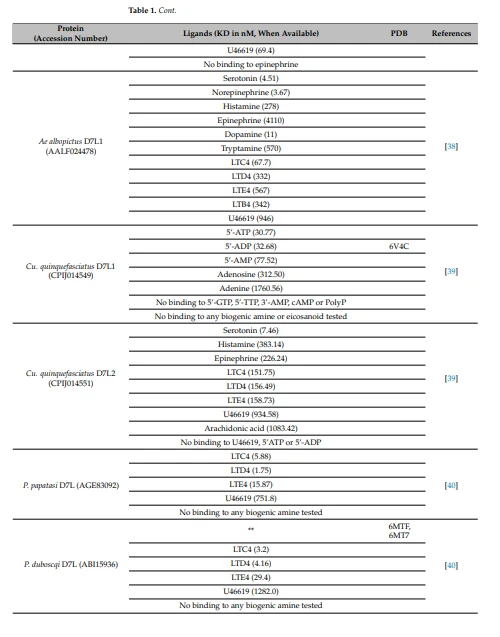
피를 빨아먹는 Nematocera의 타액에 존재하는 D7 및 기타 OBP 유사 단백질은 많은 OBP에서 관찰된 바와 같이 일부 핵심 기능과 일반적인 구조를 유지함에도 불구하고 기능의 획득 및 상실로 이어지는 1차 구조에 가변성을 가질 수 있습니다. 표 1은 다른 종의 타액에서 지금까지 기술된 D7 및 D7-유사 단백질과 이들의 리간드를 요약하고 해당하는 경우 PDB(Protein Data Bank) 수탁 번호를 제공합니다. 자세한 내용과 생리학적 관련성은 아래에서 설명합니다.



3.1. 접촉 경로 억제제
그 기능을 특성화한 최초의 D7은 짧은 형태(D7r)로 이름은 Hamadarin [35]이며 Anopheles stephensi females의 SG로 표현됩니다. 가장 가까운 D7은 An으로 표현됩니다. 감비아는 D7r1입니다. Hamadarin은 Factor XII(FXII) 및 High Molecular Weigh Kininogen(HMWK)에 결합하여 접촉 경로 활성화 및 결과적으로 항염증 분자로 작용하는 bradykinin 생성을 억제하는 것으로 나타났습니다. 그럼에도 불구하고, 두 경우 모두에서 SPR(Surface Plasmon Resonance)에 의해 연구된 FXII 및 HMWK와의 상호작용은 Zn2 플러스가 존재하는 경우에만 발생했으며 활성화된 인자 아미드분해 활성에는 영향을 미치지 않았다. 오히려 접촉 경로 활성화에 대한 억제 효과는 대전된 표면과 상호 작용할 때 발생해야 하는 FXII 및 칼리크레인의 상호 활성화에 대한 간섭 때문이었습니다[35]. 몇 년 후 Anopheles stephensi(Anophensin)의 타액에 존재하는 또 다른 접촉 경로 활성화 억제제가 특성화되었으며 Hamadarin과 유사한 표적을 갖지만 완전히 다른 단백질 계열에 속하는 것으로 나타났습니다[42].

주목할 만한 것은 모래파리 타액에서 가장 많이 발현되는 단백질[43–45]은 OBP 수퍼패밀리에도 속하는 단백질 그룹이며 모기에서는 발견되지 않으며 D7 단백질과 구별됩니다. 그들은 풍부할 뿐만 아니라 Leishmaniasis [46,47]에 대한 백신 후보로 확인되었기 때문에 처음 주목을 받았습니다. 불과 10년 후에 이 그룹의 두 구성원이 Phlebotomus duboscqi의 타액에서 특성화되었습니다: PdSP15a 및 PdSP15b(각각 P. duboscqi 타액 단백질 15a 및 b). 둘 다 서로 매우 유사하며 접촉 경로 활성화 및 브래디키닌 생성을 억제하지만[41] Hamadarin에 대해 설명된 것과는 다른 메커니즘을 통해[35]. PdSP15a 및 b는 응고 인자(자이모겐 또는 활성화된 형태), 칼리크레인 또는 프리칼리크레인에 결합하지 않습니다. 그러나 이들의 작용은 덱스트란 설페이트(DS), 폴리포스페이트(PP) 및 헤파린과 같은 음전하를 띤 중합체를 결합하여 FXII와의 상호 작용을 방지함으로써 활성화를 유발하는 자동 절단과 후속적인 접촉 경로 활성화 전파에 필요합니다. FXII 및 혈장 프리칼리크레인(PK)의 상호 활성화 및 트롬빈 및 FXIIa에 의한 FXI의 활성화. 중요한 것은 고전적인 OBP와 D7은 작은 소수성 리간드가 결합하는 소수성 포켓을 가지고 있지만, 구조적 데이터는 그 작용 메커니즘이 소수성 공동 내부의 결합이 아니라 음이온 표면과 음전하를 띤 리간드 사이의 정전기적 상호 작용을 통해 이루어짐을 시사합니다[41,47] .
혈장 응고 캐스케이드는 2개의 별개의 가지에 의해 개시될 수 있다: (1) 혈관 손상 후 노출된 내피하 조직 인자(TF)에 결합시 제VII 인자(FVII)가 활성화될 때 개시되는 외인성 경로. (2) 고유 경로로도 알려진 접촉 경로는 음으로 하전된 표면과의 접촉에 의해 유발된 FXII에서 FXIIa로의 활성화 시 시작됩니다. 일련의 반응 후 두 경로 모두 FX 활성화를 통해 공통 경로로 수렴하여 궁극적으로 피브리노겐이 피브린으로 절단되어 응고 형성에 필수적입니다[48,49]. 최근 몇 년 동안 FXII 및 FXI와 같은 고유(접촉) 경로 구성요소를 표적으로 하는 약물이 광범위하게 연구되었는데, 이는 FXII가 결핍된 마우스가 주요 출혈 장애가 없는 동안 혈전 형성으로부터 보호된다는 것이 밝혀졌기 때문입니다[50-52]. 병적 응고에 중요합니다.
활성화 시 인자 XII는 혈장 프리칼리크레인(PK) 생성 칼리크레인을 절단하며 FXII와의 상호 활성화 외에도 브라디키닌(칼리크레인-키닌 시스템)을 생성하는 HMWK의 가수분해를 촉매합니다[53]. 브래디키닌은 내피 투과성[48,54]과 통증[55]을 증가시키는 강력한 전염증 매개체입니다. 따라서, 조혈절지동물의 타액에 있는 접촉 경로 억제제의 존재는 브래디키닌 생성을 감소시킴으로써 항염증 분자로서 중요한 역할을 할 것입니다(D7s/OBP 유사 단백질 hamada [35] 및 PdSP15s [41]에서 보여진 바와 같이). , 및 PdSP15s에 대해 보고된 바와 같이 접촉 경로 활성화에 의해 유도된 플라즈마 누출을 억제/방지함으로써[41].
For more information:1950477648nn@gamil.com