

혈액 공급 Nematocera 파트 2의 D7 단백질 구조 및 생리학적 역할에 대한 개요
Jun 14, 2023
3.2. 바이오제닉 아민 결합 D7s
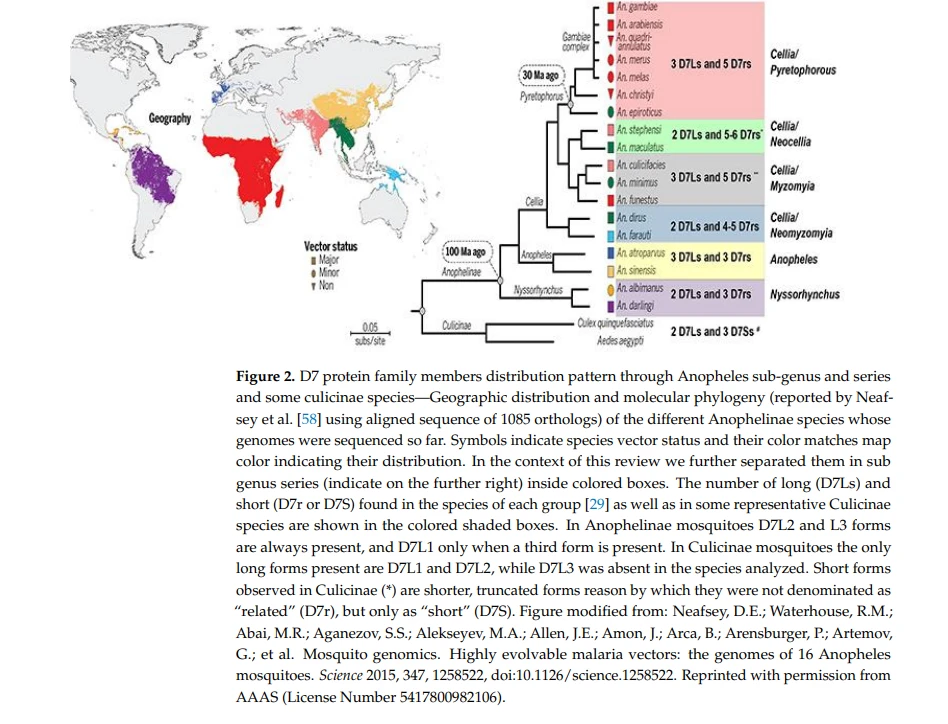
460종 이상의 Anopheles가 있으며, 7개의 하위 속으로 나뉩니다[56]. 지금까지 Anopheles(참조 변종) 18종의 게놈이 시퀀싱되었으며 Vector Base에서 사용할 수 있습니다. 이는 의학적으로 중요한 Anopheles의 세 가지 주요 아속인 Cellia, Anopheles 및 Nyssorhynchus를 나타내며 지구상의 다른 지역을 점유하고 서로 최대 1억년 전에(Calia와 Nyssorrhynchus 사이의 경우처럼) [57–59]. 지금까지 게놈이 공개된 Anopheles sp 모기(그림 2)에는 2~5개의 D7S(아속 및 시리즈에 따라 다름)와 최소 2개의 긴 형태(D7L2 및 D7L3)가 있으며 일부는 세 번째 긴 형태(D7L1, 존재함)가 있습니다. 일부 Cellia 시리즈 및 Anopheles 아속) [29,60].
게놈은 면역과 밀접한 관련이 있습니다. 인간 게놈에는 포유류 면역 체계 유전자, 바이러스 및 세균 감염 유전자 등 면역 체계에 필요한 모든 유전자가 포함되어 있습니다. 이 유전자는 면역 체계의 정상적인 기능과 밀접한 관련이 있으며 사람들의 저항력과 면역 수준에 영향을 미칩니다.
이 외에도 게놈의 다양한 변이도 면역 체계의 성능과 저항에 영향을 미칠 수 있습니다. 인간 게놈에는 여러 집단의 질병에 대한 저항성 정도를 결정하는 많은 유전자 다형성이 있습니다. 예를 들어, 인간 백혈구 항원(HLA)은 면역 체계에서 중요한 유전자이며, 그 다형성으로 인해 사람마다 다른 면역 반응과 저항이 발생할 수 있습니다.
최근 유전체학 연구가 심화되면서 유전체 변이가 많은 면역 관련 질환의 발생과 밀접한 관련이 있다는 연구 결과가 점점 많아지고 있다. 예를 들어, 자가면역질환(루푸스, 류마티스관절염, 다발성경화증 등)과 면역결핍질환(AIDS, 주기열, 구강궤양증후군 등)은 모두 유전적 변이와 관련이 있다.
따라서 게놈 연구는 면역계의 기능과 질병의 기전, 그리고 다양한 집단에 대한 개별화된 치료를 이해하는 데 큰 의미가 있습니다. 이러한 관점에서 우리는 면역력을 향상시켜야 합니다. Cistanche는 면역력을 크게 향상시킬 수 있습니다. Cistanche는 비타민 C, 비타민, 카로티노이드 등과 같은 다양한 항산화 물질이 풍부합니다. 이러한 성분은 자유 라디칼을 제거하고 산화 스트레스를 줄이며 면역력을 향상시킬 수 있습니다. 면역 체계 저항.

Hamadarin의 특성화 몇 년 후, 이전에 Anopheles gambiae(Cellia) 암컷 침샘에서 전사가 관찰된 5 D7rs(D7r1-D7r5)[27,32]가 특성화되었습니다[34]. D7r5를 제외하고 모두 매우 높은 친화도(해리 상수, KD, 3nM 미만)로 세로토닌과 결합하고 KD가 41~111nM 범위인 히스타민과 결합하는 것으로 보고되었습니다. 흥미롭게도, 놀랍지는 않지만 다른 생물기원 아민과 결합하는 그들의 능력과 그들에 대한 그들의 친화력 또한 뚜렷했습니다(표 1에 요약됨). 모든 경우에 결합 화학양론은 1:1이었고, 경쟁 분석은 바이오제닉 아민이 동일한 결합 부위를 공유한다고 제안했습니다[34]. 나중에 세로토닌과 다른 바이오제닉 아민에 결합된 Anopheles gambiae D7r4의 결정 구조에 의해 확인되었습니다[28]. .
An의 Orthologs. gambiae D7rs는 모든 Anophelines 분석 종에서 발견되며, 일부는 하나 이상의 구성원을 잃었지만 지금까지 Vector Base에서 게놈에 주석이 추가되었습니다(그림 2). 서로 다른 종과 그룹에 걸친 서열의 변이와 상관없이, Anopheles gambiae D7r4 구조 데이터[28] 덕분에 식별된 생체 아민을 라이닝하는 중요한 잔기는 속하는 종 전체에서 실질적으로 모든 D7r1-D7r4 형태에서 극도로 보존됩니다. 아속 Cellia, Nissorhynchus 및 Anopheles로, 이들은 모두 세로토닌에 결합하는 능력을 보유하고 있음을 시사합니다[29]. 한편, 모든 종 D7r5는 다양한 중요한 잔기의 변화를 보여[29] Anopheles gambiae D7r5[34]에 대해 실험적으로 관찰된 바와 같이 생물기원 아민에 결합하는 능력을 상실했음을 시사합니다.
흥미롭게도, 아노펠린 D7S 형태는 일반적으로 생물기원 아민 결합 능력을 보존하는 것처럼 보이지만, 긴 형태의 경우에는 그렇지 않습니다. 다른 종류에 속하는 종 전체에서 많은 변이, 신기능화 및 기능 상실이 관찰됩니다. 아속.
특성화되는 최초의 Anopheles D7L은 원래 Anopheles stephensi D7L1(AnSt-D7L1)로 명명되었으며 현재 An과의 유사성으로 인해 D7L2로 간주됩니다. 감비아 형태는 세로토닌 또는 테스트된 모든 생체 아민에 결합할 수 없지만 N-말단 도메인에서 에이코사노이드에 결합하는 것으로 나타났습니다[30]. Anopheles gambiae처럼 An. stephensi는 Cellia 아속에 속합니다. 그럼에도 불구하고 최근 D7L 구성원은 다른 Anopheline 아속 An에 속합니다. 아트로파르부스 D7L1(Anopheles) 및 An. darling D7L2(Nyssorhynchus)는 매우 높은 친화력으로 세로토닌에 결합하는 것으로 나타났습니다(C-말단 도메인에서). ]. 그럼에도 불구하고, 일반적으로 다른 바이오제닉 아민과 결합하는 능력이 없거나 상당히 낮습니다. An에서 관찰된 세로토닌 결합 능력의 상실. stephensi는 구조적 데이터 덕분에 더 잘 이해할 수 있습니다[30].
Anopheline 모기에서 D7S(또는 D7r) 단백질은 Anopheles 및 Aedes D7L의 C-말단 도메인에 정렬되며, X선 결정학 연구에서 D7S 단백질과 바이오제닉 아민 결합 D7L의 OBP 유사 C-말단 도메인이 구조적으로 매우 유사함을 확인했습니다. (28,29,36] 일반적인 특징으로, 세로토닌/바이오제닉 아민 결합 포켓은 3개의 이황화 결합으로 안정화된 8개의 α-나선으로 둘러싸인 방향족 그룹으로 둘러싸인 소수성 공동입니다(그림 1B 및 3). 포켓 입구에 있는 일부 극성 전하 잔기(글루탐산 및 아스파르트산)의 존재는 세로토닌의 지방족 부분과 수소 결합을 허용합니다(그림 3 및 4) 리간드는 인돌 그룹과 티로신(An. gambiaeD7r4 그림 3의 lyr 94) 세로토닌/생물기원 아민 결합에 중요한 것으로 알려진 잔기는 그림 4에서 회색 상자로 강조 표시되어 있습니다. An과 같은 생체 아민에 결합하지 않는 것으로 나타난 단백질에서도. 결합 손실이 몇 가지 잔류물 변형으로 인한 것인 stephensi D7L1(그림 4).


일부 단백질에서 세로토닌 5- 하이드록실 그룹은 D7r4 및 Aedes aegypti D7L1(첫 번째는 His 35, 두번째). 이 His는 An-StD7L1에서 알라닌(Ala-190)으로 대체되지만 An 이후 관찰된 기능 손실을 설명하기에는 충분하지 않습니다. darlingi D7L2 (Nyssorhynchus 아속) 및 An. iteroparous D7L1(Anopheles 아속)은 이 His가 각각 메티오닌 또는 알라닌으로 대체되더라도 세로토닌에 결합합니다[29]. 따라서 세로토닌에 결합하는 모기 D7과 Anopheles stephensi D7L1을 구별하는 중요한 차이점은 C-말단 도메인(녹색 및 빨간색 상자 C-말단 도메인, 그림 4)에서 두 번째 및 마지막 시스테인의 손실입니다. 이 두 잔기는 전체 단백질의 네 번째인 C-말단의 두 번째 디설파이드 결합을 형성하므로 DS4로 표시됩니다. 그들의 부재에서 헬릭스 H2의 이동과 헬릭스 B2의 풀림이 있습니다. 이전에 자세히 설명하고 논의한 바와 같이 생체 아민에 결합할 수 없습니다[30].

이 두 시스테인의 부재는 아속에 속하는 모든 종에서 발현되는 모든 D7L1s 및 D7L2s에서도 관찰되어 생물기원 아민 결합 기능도 상실했을 수 있음을 암시합니다[29]. 이 가설은 AlphaFold[61](그림 5)를 사용하여 구성된 모델의 관찰에 의해 추가로 뒷받침됩니다. An에 대해 실험적으로 관찰된 것과 같습니다. stephensi D7L1[30], Cellia D7L1 및 D7L2 단백질에서 DS4의 부재는 헬릭스 H2 위치의 이동 및 다른 구조적 재배열을 동반하여 충분한 공간을 남기지 않는 공동의 일부를 차지하는 잔류물이 있는 더 부피가 큰 C-말단 포켓을 초래합니다. 세로토닌 또는 기타 생체 아민을 수용합니다(그림 5). 한편, 관찰된 나선 B2의 풀림 정도는 종에 따라 다르거나 한 상태에서 다른 상태로 전이하는 보다 불안정한 나선의 결과일 수 있습니다.
긴 형태의 또 다른 그룹은 지금까지 이용 가능한 게놈을 가진 모든 Anopheles 종에 존재하는 D7L3입니다. Anopheles gambiae D7L3은 높은 친화력과 특이성으로 세로토닌과 결합하며[29], 그의 C-말단 도메인은 생물기원 아민 상호작용[28]에 관여하는 것으로 밝혀진 모든 중요한 아미노산을 보존하고(그림 4) D7r4와 동일한 공간 배치를 가집니다. [29]. 이러한 보존은 아속(subgenera)에 관계없이 아노펠레스 종에서 분석된 모든 D7L3에서도 관찰되었으며, 이는 D7 클러스터에서 짧은 형태에 인접한 위치에 있는 이 형태가 이 모든 종에서 이 기능을 보존했음을 시사합니다[29].
Culicinae 모기에서는 D7S 오르토로그와 2개의 D7L(D7L1 및 D7L2)도 발견됩니다. 그럼에도 불구하고, Anophelinae에서 관찰된 것과는 달리 짧은 형태는 Aedes aegypti(AeD7S1) 및 Culex quinquefasciatus(D7CQS1) [29]에 대해 보고된 결과에 따라 생물기원 아민과 결합하지 않는 반면, Culex를 제외하고 긴 형태는 지금까지 특성화되었습니다. quinquefasciatus D7L1은 Aedes aegypti D7L1(이전에는 AeD7L로 명명) 및 D7L2[34,37], Ae에 대해 보고된 리간드(특히 세로토닌)에 대해 매우 높은 친화력을 가집니다. albopictus (D7L1) [38] 및 Culex quinquefasciatus (CxD7L2) [39]. 구조적 데이터는 6개의 보존된 시스테인을 모두 포함하고 -helix로 구성되어 있음에도 불구하고 짧은 형태의 기능 상실은 C-말단의 -helix H2 영역이 짧아지고 결과적으로 -helix의 차이로 인한 것임을 시사합니다. 바인딩 포켓 [29]의 막힘으로 이어지는 배열. 매우 중요한 것은 culicine에는 Anopheles sp.의 긴 형태인 D7L3가 없다는 것입니다. 카세트의 짧은 형태에 바로 인접해 있으며 Anopheles의 대부분의 DS(D7r1–r4)가 세로토닌과 결합합니다[29].

바이오제닉 아민은 물기에 대한 척추동물의 반응과 관련된 다양한 과정의 매개체이며 여러 번 서로 연결되어 있습니다[6,62]. 예를 들어, 히스타민은 염증 및 알레르기 반응의 강력한 매개체이며 비만 세포 탈과립화에 의해 방출됩니다. 내피를 활성화하고 혈관투과성을 증가시키며 가려움증과 통증을 촉진한다[63-67]. 또한 평활근 수축을 촉진하는 것으로 알려져 있습니다. 활성화된 혈소판과 호중구에 의해 즉시 방출되는 세로토닌과 노르에피네프린은 혈소판 응집과 혈관 수축의 작용제입니다. 세로토닌은 또한 내피를 활성화하고 가려움증과 통증을 촉진하여 염증 반응에 관여합니다[6]. 벡터 생물학에 대한 이러한 D7의 효과와 중요성은 다양한 생체 아민에 의해 유도된 평활근 수축[34,37]을 억제하고 세로토닌 매개 혈소판 활성화[38]를 방해하는 능력으로 나타났습니다.
3.3. 에이코사노이드 결합 D7s(D7Ls의 N-말단 도메인)
D7L 형태가 두 개의 OBP 유사 도메인을 가지고 있다는 사실은 이들 단백질이 N-말단 도메인에 다른 리간드를 품을 수 있는 가능성을 높였습니다. 과연, 에이. 생체 아민에 결합하는 것으로 알려진 aegypti D7L1은[34] N-말단에 의해 cysteinyl leukotrienes(CysLTs) 및 leukotriene B4(LTB4)에 결합하는 것으로 나타난 최초의 긴 형태였습니다[36]. 얼마 지나지 않아 안. stephensi D7L1(AnSt-D7L1)은 바이오제닉 아민 또는 C-말단 도메인의 다른 테스트된 리간드에 결합하지 않으며 매우 높은 친화력으로 CysLT뿐만 아니라 트롬복산 A2(TXA2) 유사체(U46619 및 카르보사이클릭 트롬복산)에도 결합하는 것으로 나타났습니다. ) [30]. 등온 적정 열량계(ITC) 분석 및 구조 데이터는 두 리간드가 N-말단 도메인에 위치한 결합 부위의 적어도 일부를 공유한다는 것을 보여주었습니다[30].
Culicinae 및 Anophelinae 모기의 다른 D7L1 및 L2 단백질도 eicosanoids에 결합하는 것으로 나타났지만 세로토닌에 결합하는 능력 외에도 다른 친화도 및 특이성을 나타냅니다. Culicinae(Ae. aegypti D7L2 [37], Ae. albopictus D7L1 [38] 및 Cu. quinquefasciatus D7L2 [39])에서 CysLTs 및 LTB4(후자는 Aedes에서만)에 결합하는 것으로 나타났지만 친화도는 보고된 것보다 현저히 낮습니다. 애에게. 애집티 D7L1. 흥미롭게도 그들은 U46619를 바인딩하는 능력을 얻었습니다. Anophelinae 모기에서. 안. iteroparous D7L1 (Anopheles)은 CysLT에 결합하지만 친화력은 낮고 An. darling D7L2(Nyssorhynchus)는 매우 높은 친화력으로 CysLT와 TXA2 유사체(U46619)에 결합합니다[29]. 이 D7s 단백질은 세로토닌과 결합하기 때문에 이중 기능을 합니다.
An의 리간드 복합 결정의 결합 부위 잔기 비교. 달링기 D7L2, 안. 스테판시 D7L1 및 Ae. aegypti D7L1[29,30,36]은 N-말단 도메인에서 에이코사노이드 결합을 위한 중요한 잔기의 지정을 가능하게 했습니다(그림 4에 강조 표시됨). 리간드의 안정화에 특히 중요한 것은 Trp-37, Trp-40 및 Tyr-52(참고로 AnSt-D7L1)이며, 후자를 Phe(노란색 화살촉 그림 4), Ae에서 관찰됩니다. aegypti D7L1, CysLT 외에 TXA2에 결합하는 능력이 상실됩니다. 동등하게 중요한 것은 에이코사노이드의 카르복실과 수소 결합 또는 염다리를 형성하는 Lys-152의 존재입니다. 이러한 주요 잔기 중 다수는 D7L1s 및 D7L2, 특히 후자에서 보존되며, 분석된 다른 Anophelinae 종에 존재하며, 아속에 관계없이 결합할 수 있는 적어도 하나의 긴 형태(D7L1 및/또는 D7L2)를 보존했음을 시사합니다. cysteinyl leukotrienes[29], 최근에는 Anopheles gambiae D7L1 및 D7L2[68]의 경우인 것으로 나타났습니다. 이 두 안. gambiae D7Ls는 생체 아민에 결합할 수 없었지만 eicosanoids에 결합하는 능력을 보존했습니다. Cellia와 그들의 D7L1 및 L2는 C-말단 도메인에 DS4가 없습니다.
주목할 만한 점은 D7L3s가 모든 Anopheles 종에 존재하고 C-말단에서 세로토닌 결합에 연결된 잔기가 극도로 보존되어 있는 반면, 모든 종의 N-말단은 이 작업에 중요합니다. 이 가설은 ITC가 An. gambiae D7L3는 테스트된 어떤 에이코사노이드에도 결합하지 않습니다[29].
매우 흥미롭게도 D7L 형태는 모래파리(과: Psychodidae)[17,69]와 모기(Culicidae) 사이의 진화적 거리에도 불구하고 발견됩니다. Phlebotomus의 두 가지 다른 종(P. papatasi 및 P. duboscqi)의 타액을 특징으로 하는 긴 형태는 극도로 높은 친화도로 CysLT와 TXA2 유사체를 결합하는 능력을 유지했습니다[40]. P. 파파타시 D7L1에서 얻은 구조 데이터는 eicosanoid 결합이 모기의 D7L에 대해 설명한 것과 유사한 방식으로 N-말단에서도 발생하는 반면 C-말단은 더 짧고 잘려서 바이오제닉 아민과 결합할 수 없음을 보여주었습니다. 40].
화석 관찰에 따르면 최초의 쌍시목은 2억 4천만 년 전(MYA)보다 더 이전인 트라이아스기에 나타났습니다. Triassic, Culicomorpha 및 Psychodomorpha 인프라 목이 나타 났는데, 이는 모기와 모래 파리 혈통이 200 MYA 이상 갈라 졌음을 의미하며, 이는 식물을 먹는 조상으로부터 매우 가능성이 높으며 독립적으로 피를 먹는 습관을 개발했음을 시사합니다 [5,70 ]. 이것은 Nematocera에서 독점적으로 발견되는 대부분의 침샘 단백질 계열이 Psychodidae와 Culicidae 계열 사이에서 다르다는 사실에 의해 뒷받침되며, 이는 그들 사이에 ortholog를 지정하기가 매우 어렵다는 것을 의미합니다[5]. 따라서 모기와 모래파리 D7L은 OBP를 코딩할 가능성이 있는 유사하거나 공통 조상 유전자에서 독립적으로 기원했으며 나중에 독립적으로 시알롬에 모집되어 수렴 진화를 통해 해당 기능을 얻었습니다. 이 가설은 서로 다른 인트론/엑손 구조를 가지고 있다는 관찰에 의해 더욱 뒷받침됩니다[40].
모래파리에 D7S 오르토로그가 없고 D7L 오르토로그가 생체 아민에 결합할 수 없다고 해서 타액이 이러한 표적을 격리하는 분자가 부족하다는 의미는 아닙니다. 실제로, 모래파리 타액에서 또 다른 단백질 계열인 "Yellow"는 생체 아민에 결합하는 기능을 담당하는 반면 [71], 타액에서 발견되는 OBP 유사 단백질 PdSP15의 다른 계열은 접촉 경로 활성화를 억제함으로써 작용합니다 [41]. 이것은 독립적인 진화가 어떻게 동일한 분자를 표적으로 하는 단백질의 다른 레퍼토리로 이어지는지를 보여주는 좋은 예입니다.
류코트리엔(CysLT 및 LTB4)은 활성화된 비만 세포와 호산구 및 대식세포와 같은 다른 면역 세포뿐만 아니라 상피 및 내피 세포에서 분비되는 강력한 염증 및 알레르기 매개체입니다[72]. CysLT는 히스타민과 함께 모기 물림에 대한 반응으로 방출되어 [62] 피부의 혈관 투과성을 증가시켜 [63] 결과적으로 홍반과 팽진을 형성하며 [73,74], LTB4는 면역 세포를 끌어들이는 화학 유인 물질로 알려져 있습니다. 응답 사이트 [72]. 이러한 강력한 전염증성 매개체를 결합하는 능력은 이러한 에이코사노이드에 의해 유발되는 내피 활성화, 부종 형성, 면역 세포 침윤, 가려움증 및 통증을 억제하여 숙주 인식을 방지하거나 지연시키고 이러한 곤충이 혈액을 섭취할 수 있도록 하는 데 중요합니다. 이러한 항염증 효과는 마우스 모델에서 Ae를 주입했을 때 나타났다. albopictus D7L1(U46619에 대한 낮은 친화성 외에도 LTB4, CysLTS 및 생체 아민에 결합함)은 Saccharomyces cerevisiae의 α-glucan으로 염증 유발 공격 10분 전에 복막강으로의 면역 세포 유입을 감소시켰습니다[38].
트롬복산 A2는 콜라겐 노출에 대한 반응으로 활성화된 혈소판에 의해 생성 및 분비됩니다. 그런 다음 혈소판 표면에 존재하는 수용체에 결합하여 혈소판 활성화를 전파하고 응집을 강화합니다[75,76]. 매우 중요한 것은 TXA2 외에도 혈소판이 ADP, 세로토닌, 폴리포스페이트 및 노르에피네프린과 같은 다른 전지혈 및 전염증 분자를 분비한다는 것입니다[6]. TXA2는 또한 혈관 수축을 촉진하며[77,78], 최근에는 마우스에서 가려움증과 긁는 반응을 유발하는 것으로 나타났습니다[79,80].
몇몇 D7L은 ITC 실험에 의해 보다 안정적인 TXA2 유사체인 U46619에 결합하는 것으로 나타났으며 U46619에 의해 유도된 시험관 내 혈소판 응집을 억제하는 것으로 나타났습니다. 중요하게도, 이 단백질은 아라키돈산(트롬복산 A2 전구체) 및 낮은 농도의 콜라겐(혈소판 응집이 신호를 강화하기 위해 TXA2 및 ADP에 의존함)에 의해 유도된 혈소판 응집을 억제하여 실제로 혈소판 합성 TXA2에 결합할 수 있음을 입증했습니다. ITC 및 결정학 실험에 사용되는 안정적인 아날로그뿐만 아니라 [29,30,37,38,40].
CysLT 및 TXA2는 또한 평활근 수축을 촉진하는 것으로 알려져 있습니다. 분석 결과 An. 예를 들어, stephensi D7L1(현재 D7L2로 분류됨)은 생체 내에서 LTC4- 촉진 기니피그 회장 수축 및 U46619- 촉진 쥐 대동맥 수축을 억제할 수 있었습니다[30].
곤충 OBP는 원래 후각 및 미각 부속기관에서 설명되었으며, 여기에서 기호화학물질을 결합, 용해 및 운반할 뿐만 아니라 후각 반응의 지속 시간을 조절합니다. 나중에 그것들은 중장, 부선, 고환, 정낭, Malpighian tubules, 심지어 말벌의 독샘과 같은 비감각 기관에도 존재하는 것으로 나타났습니다. 화학수용에만 국한되지 않음([20,21]에서 검토). 따라서 이용 가능한 대부분의 결합 분석 및 구조 데이터는 페로몬, 냄새 분자, 알코올 및 기타 합성 유기 화합물과 같은 리간드로 수행되었습니다[20,26,81-84]. 지금까지 어떤 곤충 OBP도 생체 아민에 결합하지 않는 것으로 나타났습니다. 그럼에도 불구하고 일부 OBP는 Bombyx mori[82]에 의해 생성된 페로몬인 bombykol과 같은 장쇄 지방 알코올[82] 또는 Aedes aegypti OBP22[85, 예를 들어 86]. 애. aegypti OBP22는 더듬이, 암컷 코, 수컷 생식 기관에 존재하며 짝짓기[86] 동안 암컷에게 전달되어 그 기능이 화학수용에만 국한되지 않음을 시사합니다. 구조 연구에 따르면 리간드가 없는 상태에서 이 단백질은 곤충의 고전적인 OBP와 같은 6 -나선으로 구성되어 있습니다. 그러나 리간드가 있는 경우 OBP22는 바인딩 포켓을 확대하는 7번째 나선[85]을 형성하는 C-말단에서 구조적 변화를 겪습니다. 주목할 만한 점은 저자들은 이 OBP가 D7L 단백질의 N-말단 도메인과 가장 유사하며 지방산과 결합할 때 형성된 7번째 나선이 이러한 D7L 지질 결합 도메인에서 관찰되는 7번째 나선과 매우 유사한 위치를 차지한다는 사실을 관찰했습니다[85 ].
3.4. ADP 바인딩 D7s
지금까지 특성화된 D7L과 달리 Culex quinquefasciatus D7L1(CxD7L1)은 에이코사노이드 또는 생체 아민에 결합할 수 없으며, 이는 아마도 글리신의 존재와 같은 N- 및 C- 말단 포켓의 일부 중요한 위치에서 몇 가지 중요한 변형 때문일 것입니다. 대부분의 바이오제닉 아민 결합 D7s에서 세로토닌 인돌 고리의 5-하이드록실 그룹과 수소 결합을 형성하는 데 매우 중요한 155번 위치의 글루탐산 대신 172번 위치의 히스티딘 대부분의 생체 아민 결합 D7 단백질에서 관찰되는 티로신(그림 4). 대신, 아데노신 인산화 유도체 ATP, ADP 및 AMP(각각 50adenosine tri-, di 및 mono diphosphate), 아데노신 및 상당히 낮은 친화력을 갖는 아데닌에 결합하는 것으로 나타났습니다[39]. 또 다른 특이점은 그것의 리간드와의 상호작용이 그들 내부의 구멍이 아니라 N-말단과 C-말단 OBP 유사 도메인 사이에서 일어난다는 사실이다[39].
ATP와 ADP 세포 내 농도는 단단히 유지되며 손상이 있을 때 ADP와 ATP는 세포 용해 후 세포 외 환경으로 방출되어 전 염증 및 전 지혈 분자로 작용할 수 있습니다 [76,87]. ADP는 혈소판 응집을 활성화하고 혈관 손상 후 노출된 콜라겐과 같은 작용제에 반응하여 활성화된 혈소판에서 분비되어 응집을 더 전파한다[76,88]. ADP에 결합하는 능력으로 인해 CxD7L1[39]은 낮은 농도의 콜라겐에 의해 유도된 혈소판 모양 변화뿐만 아니라 더 높은 용량(1 μM)의 ADP 및 더 낮은 용량의 콜라겐에 의해 유발되는 응집을 억제하는 것으로 나타났습니다. ADP 및 TXA2와 같은 두 번째 매개체의 분비.
4. 모기 유충 호르몬 결합 단백질(mJHBP): D{2}}유사 단백질이 모기 혈림프에서 하는 일은 무엇입니까?
2017년 Kim과 동료[89]는 타액선 외부에서 발현되는 D{2}} 관련 단백질을 찾기 위해 번데기 및 성체(암컷) Aedes aegypti 모기의 혈림프에 주로 존재하는 새로운 단백질을 발견하고 설명했습니다. 이 단백질의 Orthologues는 다른 Anopheles 및 Culex 종에서도 발견되었으며 타액 D7 단백질보다 더 많은 유사성을 공유합니다. 타액 D7 긴 형태와 마찬가지로 이 단백질에는 두 개의 OBP 유사 도메인이 있습니다. N-말단은 타액 D7에서 에이코사노이드 결합에 관여하는 것으로 나타난 많은 잔기를 보존하여 지질 결합 주머니가 존재할 수 있음을 시사하는 반면, C-말단 구성은 다른 D7/D와7-유사한 것과 매우 다릅니다. 지금까지 설명한 . ITC 실험은 모기 유충 호르몬 결합 단백질(mJHBP)로 명명된 이 단백질이 에이코사노이드에 결합할 수 없지만 유충 호르몬(JH)에 대해 높은 친화성과 특이성을 가지고 있음을 보여주었습니다. 구조 데이터는 실제로 N-말단 도메인 구조가 2개의 이황화 결합을 포함하고 7 -나선으로 구성되고 JH III와의 상호 작용에 관련된 대부분의 잔기를 포함하는 D7L 단백질의 해당 부분과 유사하다는 것을 보여줍니다. 그럼에도 불구하고, 지금까지 설명한 타액 D7L 단백질에 대해 관찰된 것과는 달리, C-말단 잔기 중 일부는 결합, 특히 결합 주머니의 입구를 닫는 나선 -13의 확장에 참여합니다[89]. 매우 중요하게도 저자들이 잘 언급한 바와 같이 이 단백질은 Bombyx mori [90]에서 지금까지 기술된 혈림프 청소년 호르몬 결합 단백질과 구조적으로 완전히 다릅니다.
유충 호르몬은 발달[91], 털갈이 및 변태[92], 번식 및 난자 형성[93-95], 면역[96,97]을 포함하여 곤충의 가장 다양한 과정을 조절합니다. Aedes aegypti mJHBP의 생리학적 역할이 CRISPR-cas9에 의해 유전자를 제거하여 연구되었을 때 발달, 성장 또는 번식에 대한 영향이 관찰되지 않았습니다[98]. 그럼에도 불구하고 녹아웃(KO) 모기는 선천적 면역 반응을 손상시켰고, 준치사량의 대장균으로 도전했을 때 세균 감염에 더 취약했으며 감염 후 야생형(WT) 모기에 비해 훨씬 적은 양의 항균 펩타이드를 생성했습니다. . 이러한 효과는 저자가 관찰한 KO 모기에서 혈구의 수가 적고 구성이 다른 것과 일치합니다[98].
5. 결론
D7 및 PdSP15 계열 구성원과 같은 타액 OBP 유사 단백질은 숙주 지혈 및 염증 반응에 관여하는 다른 분자를 표적으로 삼아 혈액 공급을 촉진하는 데 중요한 역할을 합니다. D7을 포함한 타액 유전자의 유전자 복제와 빠른 돌연변이는 다른 가족 구성원 내에서 기능의 획득 및 상실로 이어집니다. 이러한 다양성은 D7 단백질에만 국한되지 않으며 곤충 리포칼린[6,7]과 같은 다른 계열에서도 설명되었습니다.
물기에 대한 숙주 방어는 조혈 쌍시목에만 국한되지 않으며 이를 해결하기 위한 단백질의 표적이나 존재도 아닙니다. 그럼에도 불구하고 이러한 문제를 극복하는 방법은 숙주 지혈, 염증 및 면역 반응에 대응하기 위한 광범위한 단백질 레퍼토리를 초래하는 조혈의 독립적인 진화로 인해 절지동물 그룹 간에 다양합니다[2,4,5,7,15,16]. . 예를 들어, D7 단백질은 생체 아민과 에이코사노이드에 결합할 수 있습니다. 진드기와 트리아토민 벌레 리포칼린(독립적 진화)에서 결합 주머니를 둘러싸고 있는 8개의 역평행 시트로 구성된 매우 독특한 구조를 가진 완전히 다른 단백질 계열이 이러한 기능을 대신합니다[7,99-105]. 모래파리에서는 짧은 형태의 D7이 없고 생물기원 아민 결합 기능은 "노란색" 단백질 계열에 의해 대체되지만[71], 그들은 eicosanoids에 결합하는 D7L을 가지고 있습니다[40].
Culex quinquefasciatus D7L1은 다른 D7과 달리 ADP에 결합합니다. ATP와 ADP의 AMP와 Pi(무기 인산염)로의 가수분해를 촉매하는 효소인 Apyrases와 ADP 결합 단백질 및 50뉴클레오티다아제는 다양한 조혈 절지동물 종의 타액에서 설명되었으며, 다른 분자를 표적으로 하는 혈소판 응집을 억제하는 다른 단백질은 말할 것도 없습니다. 콜라겐 및 트롬빈과 같은([76]에서 검토).
타액의 구성을 이해하는 것은 벡터 생물학 및 숙주와의 상호 작용 연구에 매우 중요합니다. 또한 새로운 벡터 매개 질병 통제 접근법 개발을 위한 귀중한 정보를 제공합니다. 예를 들어, 대부분의 벡터 매개 질병에서 병원균은 물린 동안 벡터 타액과 함께 숙주에 주입됩니다. 일부 타액 단백질이 면역원성이라는 사실은 Aedes 타액선 단백질 추출물[106] 및 An. 감비아 D7s [107]. 피부 리슈마니아증에 대한 유망한 백신 후보인 것으로 밝혀진 OBP 유사 타액 단백질인 PdSP15의 경우와 마찬가지로 면역 반응을 유도하는 그들의 능력은 또한 그들을 훌륭한 백신 후보로 만듭니다[47].
저자 기여:
PHA와 JFA는 문헌을 검토하고 원고의 초안을 작성했으며 후속 초안을 대폭 수정하고 최종 버전을 승인했습니다. 모든 저자는 원고의 출판된 버전을 읽고 이에 동의했습니다.
자금 조달:
이 작업은 국립 보건원(National Institutes of Health)인 NIAID의 교내 연구 프로그램(Intramural Research Program)의 지원을 받았습니다.
기관 검토 위원회 성명서:
적용되지 않습니다.
정보에 입각한 동의서:
적용되지 않습니다.
데이터 가용성 진술:
적용되지 않습니다.
감사의 말:
저자는 이 원고를 검토하고 귀중한 제안과 의견을 제공한 José Marcos Chaves Ribeiro에게 감사드립니다.

이해 상충:
저자는 이해 상충을 선언하지 않습니다.
참조
1. Ribeiro, JM 절지동물의 혈액 공급에서 타액의 역할. 안누. Entomol 목사. 1987, 32, 463–478. [CrossRef] [펍메드]
2. 리베이로, JM; Francischetti, IM 수혈 시 절지동물 타액의 역할: Sialome 및 post-sialome 관점. 안누. Entomol 목사. 2003, 48, 73–88. [CrossRef] [펍메드]
3. Graca-Souza, AV; Maya-Monteiro, C.; 파이바-실바, GO; 브라즈, GR; Paes, MC; 소르진, MH; 올리베이라, MF; Oliveira, PL 피를 먹는 절지 동물의 헴 독성에 대한 적응. 곤충 생화학. 몰. 비올. 2006, 36, 322–335. [CrossRef] [펍메드]
4. Ribeiro, JM 혈액 공급 절지동물: 살아있는 주사기 또는 무척추동물 약리학자? 감염. 에이전트 Dis. 1995, 4, 143–152. [펍메드]
5. 리베이로, JM; 남자, BJ; Arca, B. 혈액을 공급하는 Nematocera의 sialome에 대한 통찰력. 곤충 생화학. 몰. 비올. 2010, 40, 767–784. [교차 참조]
6. 리베이로, JMC; Arcà, B. Sialomes에서 Sialoverse까지의 2장. 곤충 생리학의 발전; 엘스비어: 암스테르담, 네덜란드, 2009년; 59~118쪽.
7. Andersen, JF 흡혈 절지동물의 타액 단백질 구조 및 메커니즘. Toxicon 2010, 56, 1120–1129. [교차 참조]
8. 아르카, B.; Ribeiro, JM 조혈 곤충의 타액: 다면적 툴킷. 현재 의견. 곤충 과학. 2018, 29, 102–109. [교차 참조]
9. 콘월, J.; Patton, W. 일반적인 흡혈 곤충과 진드기의 타액 분비에 대한 일부 관찰. 인도 J. Med. 해상도 1914, 2, 569–593.
10. Lester, H.; Lloyd, L. Tsetse-flies의 소화 과정에 대한 참고 사항. 황소. 엔토몰. 해상도 1928, 19, 39–60. [교차 참조]
11. Ribeiro, J.; Garcia, E. Rhodnius prolixus에서 먹이를 먹는 침샘의 역할. J.특급 비올. 1981, 94, 219–230. [교차 참조]
12. 리베이로, JM; 로시뇰, PA; Spielman, A. 혈관 위치에서 모기 타액의 역할. J.특급 비올. 1984, 108, 1–7. [교차 참조]
13. 리베이로, J.; Rossignol, P.; Spielman, A. 타액선 apyrase는 anopheline 모기에서 프로빙 시간을 결정합니다. J. 곤충 Physiol. 1985, 31, 689–692. [교차 참조]
14. Valenzuela, JG 질병 벡터의 타액 단백질과 유전자를 연구하기 위한 고처리량 접근법. 곤충 생화학. 몰. 비올. 2002, 32, 1199–1209. [CrossRef] 15. Mans, B.; Francischetti, I. Arthropods의 혈액 공급 행동의 진화에 대한 Sialomic 관점: 자연 설계에 의한 미래 치료법. 독소 및 지혈; 스프링거: Dordrecht, 네덜란드, 2010; 21~44쪽.
16. 남성, BJ 척추동물의 혈액섭식 절지동물 지혈 및 염증조절 기작의 진화. J. 선천적 면역. 2011, 3, 41–51. [CrossRef] [PubMed] 17. Valenzuela, JG; Charlab, R.; 곤잘레스, EC; 데 미란다-산토스, IK; 마리노티, O.; Francischetti, IM; Ribeiro, JM 피를 빨아먹는 Diptera의 타액 단백질의 D7 계열. 곤충 몰. 비올. 2002, 11, 149–155. [CrossRef] [펍메드]
18. 칼보, E.; 드 비앙키, AG; 제임스, AA; Marinotti, O. 성인 여성 Anopheles darlingi 타액선의 주요 산 용해성 단백질에는 D7- 관련 단백질 계열의 구성원이 포함됩니다. 곤충 생화학. 몰. 비올. 2002, 32, 1419–1427. [교차 참조]


