이전에 학습된 시간 순서와 새로운 시간 순서의 뇌 인식: 차등 동시 처리 2부
Aug 11, 2023
데이터 취득
우리는 두 개의 독립적인 세션을 통해 해부학적 MRI 및 MEG 데이터를 획득했습니다. MEG 데이터는 3{3}}6개 채널을 갖춘 Elekta Neuromag TRIUX 시스템(Elekta Neuromag, Helsinki, Finland)을 사용하여 획득했습니다. 이 기계는 덴마크 오르후스 대학 병원의 자기 차폐실에 배치되었습니다. 데이터는 0.1~330Hz의 아날로그 필터링을 사용하여 1,000Hz의 샘플링 속도로 기록되었습니다. 측정 전에 우리는 사운드 레벨을 각 참가자의 최소 청력 임계값보다 50dB 높게 설정했습니다. 또한 3차원 디지타이저(Polhemus Fastrak, Colchester, VT, USA)를 활용하여 3개의 해부학적 랜드마크(콧구멍, 좌우 귓바퀴 위치)에 관한 참가자의 머리 모양과 4개의 머리 코일 위치를 등록했습니다.
과학과 기술의 지속적인 발전으로 인해 우리 삶에는 많은 새로운 개념과 기술이 등장했습니다. MEG 기술도 그 중 하나입니다. MEG는 인간 두뇌의 전기적 활동을 측정하는 일반적인 기술입니다. 초전도 양자 간섭계(SQUID)를 사용하여 뉴런의 전기적 활동을 감지합니다. MEG 기술은 인간 두뇌의 작동 원리를 더 잘 이해하고 인간 지능의 신비를 탐구하는 데 도움이 될 수 있습니다.
MEG 기술은 뉴런의 전기적 활동을 연구하는 것 외에도 인간의 기억을 평가하고 연구할 수도 있습니다. 많은 연구에서 MEG 기술과 메모리 사이의 관계가 밝혀졌습니다. 과학자들은 대량의 데이터를 연구하고 분석함으로써 MEG 기술을 사용하여 사람들의 기억 용량과 다양한 사람들이 기억을 처리하는 방식을 추적할 수 있습니다.
연구에 따르면 과학자들은 MEG 기술과 데이터 분석을 통해 인간 뇌의 다양한 영역에서 전기적 활동을 식별하고 측정할 수 있으며 이를 통해 뇌의 작동 모드를 이해하는 데 도움을 줄 수 있습니다. 이러한 데이터는 우리가 기억력과 인지 과정을 더 잘 이해하고 결과적으로 사람들의 기억력을 향상시키는 더 나은 방법을 개발하는 데 도움이 될 수 있습니다.
또한, 많은 연구에서는 기억력을 향상시키기 위해 다양한 방법과 기술을 사용하는 것이 전적으로 가능하다는 것을 보여주었습니다. 다양한 기억 기술과 훈련을 통해 우리는 뇌를 훈련시켜 기억력을 향상시킬 수 있습니다. 기억력을 향상시키려는 사람들에게는 MEG 기술과 데이터 분석을 이해하는 것이 중요한 단계입니다.
따라서 MEG 기술과 메모리는 불가분의 관계에 있습니다. 대량의 데이터 분석을 통해 우리는 인간의 뇌가 어떻게 작동하는지, 기억 형성 과정을 더 잘 이해할 수 있고, 기억력을 향상시킬 수 있는 더 나은 방법을 개발할 수 있습니다. 우리는 미래에 기술의 지속적인 개발과 개선을 통해 우리의 기억 능력을 더 잘 개발하고 활용하는 데 도움이 되는 더 많은 방법과 기술을 갖게 될 것이라고 믿습니다. 이런 관점에서 우리는 기억력을 향상시켜야 한다. Cistanche는 기억력과 학습에 매우 중요한 아세틸콜린 및 성장 인자의 수준을 높이는 등 신경 전달 물질의 균형을 조절할 수도 있기 때문에 기억력을 크게 향상시킬 수 있습니다. 또한 고기는 혈류를 개선하고 산소 전달을 촉진하여 뇌에 충분한 영양과 에너지를 공급하여 뇌의 활력과 지구력을 향상시킬 수 있습니다.
머리 코일의 위치는 연속 머리 위치 식별(cHPI)을 사용하여 전체 기록 중에 등록되었으며, 이를 통해 각 시점에서 MEG 스캐너 내에서 정확한 머리 위치를 추적할 수 있습니다. 우리는 이 데이터를 활용하여 데이터 분석의 후반 단계에서 정확한 움직임 보정을 수행했습니다.
기록된 해부학적 MRI 데이터는 구조적 T1에 해당합니다. 스캔에 대한 획득 매개변수는 다음과 같이 보고됩니다: 복셀 크기=1.0 × 1.0 × 1.0 mm (또는 1.0 mm3); 재구성된 행렬 크기 256 × 256; 에코 시간(TE)은 2.96ms, 반복 시간(TR)은 5000ms, 대역폭은 240Hz/Px입니다. 분석의 후반 단계에서 각 T1-가중 MR 스캔은 아핀 변환을 통해 표준 MNI 뇌 템플릿에 공동 등록된 다음 Polhemus 머리 모양 데이터와 세 가지를 사용하여 MEG 센서 공간을 참조했습니다. MEG 세션 중에 측정된 기준점.
데이터 전처리
원시 MEG 센서 데이터(204개의 평면 경도계 및 102개의 자력계)는 신호 공간 분리를 적용하여 두피 외부에서 발생하는 간섭을 감쇠하기 위해 MaxFilter(Taulu 및 Simola 2006)에 의해 사전 처리되었습니다. 동일한 세션 내에서 Maxfilter는 머리 움직임에 대한 신호도 조정하고 1000에서 250Hz로 다운샘플링했습니다.
데이터는 SPM 형식으로 변환되었으며 FSL(Woolrich et al. 2009)의 조합에 의존하는 무료로 사용 가능한 도구 상자인 OSL(OHBA 소프트웨어 라이브러리)을 사용하여 Matlab(MathWorks, Natick, Massachusetts, USA)에서 추가로 분석되었습니다. SPM(Penny et al. 2007) 및 Fieldtrip(Oostenveld et al. 2011) 및 자체 구축 기능. 전류 간섭 가능성을 보정하기 위해 노치 필터(48~52Hz)가 적용되었습니다. 데이터는 150Hz로 추가로 다운샘플링되었으며 큰 아티팩트에 의해 변경된 데이터의 일부 세그먼트는 육안 검사 후 제거되었습니다.
그런 다음 뇌 데이터에서 눈 깜박임 및 심장 박동 인공물의 간섭을 제거하기 위해 독립 성분 분석(ICA)을 사용하여 원래 신호를 독립 성분으로 분해했습니다. 그런 다음 눈 깜박임과 심장 박동 활동을 포착한 구성 요소를 먼저 분리한 후 폐기했습니다. 나머지 구성 요소를 사용하여 신호를 재구성한 다음(Mantini et al. 2011) 각각 3,500ms 동안 지속되는 80번의 시도(각 음악 발췌마다 하나씩)를 통해 획기적인 발전을 이루었습니다(기준선 수정에 사용된 100ms의 사전 자극 시간 포함)( 그림 1B).
MEG 센서를 통한 일변량 테스트 및 Monte-Carlo 시뮬레이션
우리의 주요 초점은 MEG 소스로 재구성된 뇌 데이터에 있었지만 MEG 센서 데이터의 첫 번째 분석은 MEG 분석의 모범 사례에 대한 최신 권장 사항과 일관되게 계산되었습니다(Gross et al. 2013).

따라서 다수의 MEG 및 뇌파검사(EEG) 작업 관련 연구(Gross et al. 2013)와 유사하게 조건에 대한 시행을 평균화하여 M과 N에 대한 두 개의 최종 평균 시행을 얻었습니다. 각기. 그런 다음 각 평면 경도계 쌍을 제곱근 합으로 결합했습니다. 그 후, 우리는 0-2.500초 시간 범위의 각 시점과 각 결합된 평면 경도계에 대해 M과 N을 대조하여 t-테스트를 수행했습니다.
다중 비교를 수정하기 위해 우리는 t-테스트에서 나온 중요한 결과 클러스터에 대해 1,000 순열을 사용하여 Monte-Carlo 시뮬레이션(MCS)(Kroese et al. 2011)을 계산했습니다. 순열된 데이터의 최대 클러스터 크기 99.9%보다 큰 크기를 가진 원래 클러스터를 중요하게 고려했습니다. 널리 사용되는 이 절차에 대한 자세한 내용은 Bonetti et al.에서 확인할 수 있습니다. (2020), Bonetti, Brattico, Carlomagno, 외. (2021a), Bonetti, Bruzzone, Sedghi, et al. (2021b), Bonetti, Brattico, Vuust, et al. (2021c) 및 Fernàndez-Rubio, Brattico, et al. (2022a), FernàndezRubio, Carlomagno, et al. (2022b), Fernàndez-Rubio, Olsen, et al. (2022c).
이 분석은 실험 조건 간에 크고 확실한 차이를 보여주었습니다. 또한 MCS 분석에 의해 출력된 중요한 클러스터를 형성하는 MEG 채널을 통해 기록된 뇌 활동은 두 가지 주요 주파수 구성 요소를 나타내는 시계열을 설명합니다. 그림 S2A에서 볼 수 있듯이, 시퀀스를 구성하는 각 항목이 표시된 후 더 빠른 주파수 구성 요소가 최고조에 이르렀고, 전체 시퀀스를 수반하는 느린 주파수 구성 요소가 나타났습니다.
이 증거는 모든 MEG 센서 데이터에 대한 복잡한 Morlet 웨이블릿 변환(Daubechies 1992)의 계산에 의해 추가로 뒷받침되었으며, 이는 작업 중에 기록된 MEG 신호에 대한 1Hz 및 4Hz의 주요 기여를 강조했습니다(그림 S2B). 또한, 본 분석에서는 10Hz 부근에서 눈에 띄지만 약한 전력을 보여주었다.
10Hz 전력은 음악 시퀀스의 시작 오프셋에 시간 고정되지 않았습니다. 따라서 다음 분석에서는 주로 1Hz와 4Hz 주위로 정의된 두 주파수 대역에 중점을 두었습니다. 왜냐하면 이 대역이 가장 강력한 전력을 갖는 주파수이기 때문입니다. 이 두 대역은 0.1–1 및 2–8Hz였습니다. 또한, 약 10Hz로 정의된 주파수 범위는 감소하지만 구별 가능한 전력을 나타내기 때문에 추가 분석을 수행했습니다. 이러한 대역은 8~12Hz였습니다.
중요한 것은 주파수 대역 2-8과 0.1-1Hz가 실험 작업과 관련된 두 가지 주요 프로세스, 즉 시간 순서를 형성하는 단일 항목 처리(i-로컬 처리)와 포괄적인 상위 개체로서의 시간적 순서(ii- 전역 처리).
소스 재구성
우리는 최첨단 소스 재구성 방법을 사용하여 MEG 센서에 기록한 신호를 생성한 소스를 추정했습니다(그림 1C 및 그림 2A)(Huang et al. 1999; Hillebrand 및 Barnes 2{{ 7}}05). 중요한 것은 소스 재구성 알고리즘이 연구에 포함된 세 가지 주파수 대역(0.1–1, 2–8 및 8–12Hz)에 대해 독립적으로 계산되어 이 세 가지 다른 주파수 대역에서 M 및 N에 대한 유발된 반응을 특성화했다는 것입니다. . 구체적으로 다음 단계가 구현되었습니다.
먼저, 에포칭 이전의 연속 데이터를 3개의 주파수 대역으로 대역 통과 필터링했습니다. 둘째, 필터링된 데이터(3개의 밴드에 대해 독립적으로)가 획기적으로 나타났습니다. 셋째, 획기적인 데이터는 아래 설명된 소스 재구성 알고리즘에 제출되었습니다.
이러한 알고리즘에는 (i) 순방향 모델 설계 및 (ii) 역방향 솔루션 계산이라는 두 가지 후속 단계가 포함됩니다. 순방향 모델은 각 뇌 소스를 활성 쌍극자로 간주하고 이러한 쌍극자의 단일 강도가 모든 MEG 센서에 어떻게 반영되는지 설명하는 이론적 모델입니다(이 경우에는 자력계와 평면 경도계를 모두 활용했습니다)(Huang et al. 1999).
여기에서는 전체 뇌 내에서 3,559개의 쌍극자 위치(복셀)를 반환하는 8-mm 그리드를 사용했습니다. 개별 구조적 T1 데이터를 fiducials(머리 랜드마크에 대한 정보)에 등록한 후 Nolte(2003)가 자세히 제시한 "Single Shell"이라는 널리 사용되는 방법을 채택하여 전방 모델을 계산했습니다. 리드 필드 모델이라고도 하는 이러한 계산의 출력은 행렬 L(소스 × MEG 채널)에 저장되었습니다. 구조적 T1을 사용할 수 없는 몇 가지 경우에는 템플릿(8-mm 공간 해상도를 갖춘 MNI152-T1)을 사용하여 리드 필드 계산을 수행했습니다.
소스 재구성의 두 번째 단계는 역해를 계산하는 것입니다(즉, MEG로 기록된 뇌 활동을 기반으로 신경 신호 생성기를 추정하는 것). 우리 연구에서 우리는 현장에서 가장 널리 사용되고 효과적인 알고리즘 중 하나인 빔포밍을 선택했습니다(Huang et al. 1999; Hillebrand and Barnes 2005). 이 절차는 각 시점에 대해 MEG 채널에 의해 기록된 활동에 대한 각 소스의 기여도를 분리하기 위해 소스 위치에 순차적으로 적용되는 다양한 가중치 세트를 사용합니다(Hillebrand and Barnes 2005; Brookes et al. 2007). 좀 더 기술적인 수준에서 빔포밍을 기반으로 한 역 솔루션은 다음과 같은 주요 단계로 설명할 수 있습니다.
먼저, t 시점에 MEG 센서(B)에 의해 기록된 데이터는 다음 방정식(3)으로 설명할 수 있다.

여기서 L은 위에서 설명한 리드 필드 모델이고, Q는 시간에 따른 각 활성 쌍극자의 활동(q)을 전달하는 쌍극자 매트릭스이고, ε는 잡음입니다(자세한 내용은 Huang et al.(2004) 참조). 따라서 역 문제를 해결하려면 Q를 계산해야 합니다. 빔 형성을 사용하여 이러한 절차는 방정식(4)의 단일 쌍극자 q에 대해 표시된 것처럼 각 시점에서 MEG 센서에 적용되는 가중치 계산을 중심으로 진행됩니다. ):
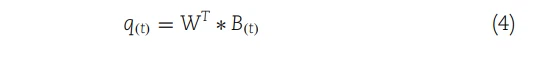
실제로 q를 얻으려면 가중치 W를 계산해야 합니다(아래 첨자 T는 전치 행렬을 나타냄). 이를 위해 빔포밍은 L과 MEG 센서 간의 공분산 행렬(C) 사이의 행렬 곱셈에 의존하며 연결된 실험 시도에서 계산됩니다. 구체적으로, 각 뇌 소스 n에 대해 가중치 Wn은 다음과 같이 계산됩니다.
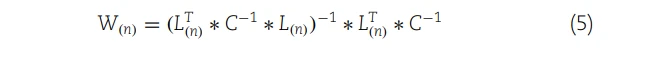
주목해야 할 점은 Nolte(Nolte 2003)에 따라 각 뇌 소스(쌍극자)의 세 가지 주요 방향에 대해 리드 필드 모델의 계산이 수행되었다는 것입니다. 그러나 가중치를 계산하기 전에 식 (6)에서 보고된 행렬 곱셈에 대한 특이값 분해 알고리즘을 사용하여 방향을 하나로 줄였습니다. 이 절차는 빔형성 출력을 단순화하기 위해 널리 채택됩니다(Huang et al. 2004; Woolrich et al. 2011).
여기서 l은 세 가지 방향을 갖는 리드 필드 모델을 나타내고, L은 (5)에서 사용된 분해된 단일 방향 모델을 나타냅니다.
마지막으로 위에서 언급한 바와 같이 이러한 알고리즘의 코딩 구현과 관련하여 우리는 OSL, FieldTrip, SPM(MEEG 전처리 및 SPM 빔포밍 도구 상자 기능) 및 FSL과 같은 Matlab 도구 상자를 사용했습니다. 게다가 이러한 코드는 자체적으로 구축된 스크립트와 기능으로 보완되었습니다.

시간 순서의 각 요소에 대한 뇌 활동
먼저, 우리는 시간 순서의 각 항목에 기초한 뇌 활동을 감지하고 싶었습니다(그림 1D, 그림 S3, S4, 표 1 및 표 S1). 여기서는 신호의 절대 강도에 관심이 있었기 때문에 재구성된 시계열의 절대값을 계산했습니다.
각 참가자에 대한 1차 분석을 수행하기 위해 일반 선형 모델(GLM)을 사용했습니다. 이러한 모델은 각 시점 및 뇌 소스에 대해 재구성된 소스 데이터를 기반으로 계산되었습니다(Hunt et al. 2012). GLM은 M과 N의 주 효과(매개변수 추정 대비(COPE))와 그 대비를 반환했습니다. 그들은 참가자들 간의 분산에 의해 결정적으로 조정되는 주효과를 얻을 수 있었기 때문에 고용되었습니다. 이러한 결과는 가우스 커널(최대 반치의 전폭: 50mm)을 사용하여 얻은 공간적으로 평활화된 분산을 갖는 1-표본 t-검정을 사용하는 두 번째 수준 분석에 제출되었습니다(Huang et al. 2004).
여기에서 우리는 시퀀스를 형성하는 각 주파수 대역 및 항목(음악 톤)에 대해 독립적으로 M 대 N 시간 시퀀스의 인식을 기본으로 하는 다양한 뇌 활동을 관찰하는 데 관심이 있었습니다. 따라서 우리는 음악 톤의 지속 시간에 해당하는 5개 시간 창에 대해 평균을 낸 두 번째 수준(그룹 수준) 분석 결과에 대해 15개(5 톤 × 3 주파수 대역) 클러스터 기반 몬테카를로 시뮬레이션(MCS)을 계산했습니다. . MCS 분석은 1,000 순열과 클러스터 형성 임계값 P < 0.05(두 번째 수준 테스트에서)로 구성됩니다. 구체적으로 MCS 테스트는 원본 데이터에서 중요한 값의 공간 클러스터를 탐지하는 것으로 구성되었습니다. 그런 다음, 이러한 데이터를 치환하고, 치환된 유의값의 공간적 클러스터를 검출하였다. 이 절차는 여러 번(예: 1,000) 계산되었으며 각 순열에 대해 감지된 클러스터 크기의 참조 분포가 발생했습니다. 마지막으로 원래 클러스터 크기를 참조 분포와 비교했습니다. 순열된 데이터의 클러스터 크기가 MCS 수준보다 적은 횟수로 원래 클러스터 크기보다 큰 경우 원래 클러스터는 중요한 것으로 간주됩니다. 이 경우에는 분석을 15번 계산했기 때문에 표준 MCS 수준(=0.05)을 15로 나누어 다중 비교를 수정하여 업데이트된 MCS=0.003(즉, 원본)을 얻었습니다. 크기가 순열된 클러스터 크기의 99.7%보다 큰 경우 클러스터는 중요했습니다.
본 연구에 사용된 주파수 범위 중 하나가 다소 낮았기 때문에({0}}.1–1Hz), 우리는 세 가지 다른 주파수를 사용하여 0.1–1Hz에 대한 소스 재구성과 M과 N 사이의 대비를 다시 계산했습니다. 기준(500, 1,000 및 2,000 ms). 이는 원래 결과가 기준선의 길이에 의해 좌우되지 않는다는 것을 입증하기 위해 수행되었습니다. 이 절차의 결과는 그림 S5에 나와 있으며 표 S2에 자세히보고되어 있습니다.


K-기능적 클러스터링을 의미
이전 결과를 보완하고 활성 뇌 소스의 공간적 범위와 시간에 따른 활동에 대한 보다 자세한 설명을 제공하기 위해 기능적으로 뇌의 구획을 정의했습니다. 우리는 일련의 k-평균 클러스터링 알고리즘으로 구성된 소위 k-평균 기능적 클러스터링을 채택했습니다. Sinaga와 Yang(2020)은 재구성된 각 뇌 소스(복셀) 시계열의 기능적 및 공간적 정보에 대해 수행했습니다. 이 접근 방식은 이전 분석에서 가장 강력한 결과를 반환하고 시퀀스의 단일 항목 또는 전체 시퀀스, 즉 0.1–1 및 2–8Hz와 관련된 두 개의 주파수 대역에 대해 따랐습니다.
구체적으로, 첫 번째 단계로 k-평균 기능적 클러스터링 알고리즘은 복셀 시계열의 피크 값 및 해당 인덱스와 같은 기본 기능 매개변수에 대한 클러스터링을 계산했습니다. 이 단계를 기능적 클러스터링이라고 합니다. 이 절차는 뇌 복셀의 기능적 프로필에 따라 그룹화된 독립적인 소포 세트를 반환했습니다. 실제로 이러한 소포에는 거의 동시에 정점에 도달한 복셀(그림 2B, 왼쪽) 또는 비슷한 절대 강도(그림 2B, 오른쪽)가 포함될 수 있습니다. 생각할 수 있듯이, 뇌 활동이 서로 다른 시간과 서로 다른 영역에 국한될 때 최대 시계열 지수에 대한 클러스터링이 제안됩니다.
반대로, 활동이 대부분의 뇌 복셀에 대해 높은 상관 관계가 있는 경우 클러스터링은 최대 시계열 값에서 수행되어야 하며 신경 신호의 핵심 생성기를 식별하는 데 도움이 됩니다. 본 연구에서 0.1~1Hz(시퀀스의 전역 처리)는 시간이 지남에 따라 이동하는 다양한 활동 피크를 나타내므로 이러한 피크의 시간 지수를 고려하여 클러스터링되었습니다. 다르게, 2-8Hz(시퀀스의 로컬 처리)는 매우 상관된 활동을 나타냈으므로 이러한 피크 활동의 절대값을 사용하여 클러스터링되었습니다. 클러스터링 분석에서 널리 수행된 것처럼(Garcia-Dias et al. 2019), 우리의 경우에도 k 클러스터의 순차적 세트(k= 2에서 20까지)에서 클러스터링 알고리즘을 계산하는 것이 유익했습니다. 그런 다음 팔꿈치 방법/규칙(Liu and Deng 2021) 및 실루엣 계수(Al-Zoubi 및 Al Rawi 2008)와 같은 잘 알려진 평가 전략(휴리스틱)을 기반으로 최상의 클러스터링 솔루션이 결정되었습니다.
엘보우 방법은 점점 더 많은 클러스터 솔루션의 함수로 클러스터의 중심과 관련된 클러스터에 속하는 요소의 제곱 오차(SSE)의 합을 플로팅하는 것으로 구성됩니다. 그런 다음 이 방법은 곡선의 "엘보우"를 사용할 클러스터 수로 시각적으로 식별하는 것을 제안합니다. 실루엣 계수는 다른 군집(분리)과 비교할 때 해당 군집(응집성)과 요소의 유사성을 나타내는 값(-1에서 +1 범위)입니다. 높은 실루엣 계수 값은 요소가 해당 클러스터와 잘 일치하고 인접 클러스터와는 잘 일치하지 않음을 나타냅니다.
최상의 기능적 클러스터링 솔루션이 결정되면 공간 정보에 대한 두 번째 클러스터링이 계산되어야 합니다(공간 클러스터링, 그림 2C). 실제로 뇌 활동은 주로 공간적 위치와 시간에 따른 변화라는 두 가지 매개변수로 설명됩니다. 원래의 뇌 복셀을 별개의 기능적 소포로 클러스터링하면 동시에 활성화되는 공간적으로 분리된 뇌 영역의 네트워크를 포함하는 큰 소포가 반환될 수 있습니다. 따라서 더 나은 구획을 정의하려면 각 기능 구획의 공간 좌표에 대해서도 클러스터링 분석을 수행하는 것이 좋습니다. 우리 연구에서는 각 기능 소포를 형성하는 복셀의 3차원 공간 좌표(MNI 공간)를 고려했습니다. 이 클러스터링 계산은 한 번에 하나의 소포에 대해 k개의 클러스터 솔루션(k= 2에서 10까지)의 순차적 세트에 대해 수행되었습니다. 기능적 클러스터링에 대해서는 엘보 법칙과 실루엣 계수를 이용하여 공간 클러스터링에 가장 적합한 솔루션을 평가했습니다. 이 절차가 모든 기능 소포에 대해 수행되면 k-평균 기능 클러스터링이 완료되어 기능 및 공간 정보를 기반으로 실험 작업에 대한 효과적인 구획을 제안합니다(예는 0.1-에 대한 그림 S7, 표 S3 및 S4에 보고됨). 1Hz 및 그림 S8, 2~8Hz의 경우 표 S5, S6 및 S7). 마지막 단계로, 각 소포에 속한 뇌 복셀의 시계열을 평균하여 소포에 대한 최종 시계열을 제공했습니다. k-평균 기능 클러스터링에 대한 추가 정보는 보충 자료에 보고되어 있습니다.
각 소포에 대한 시간 경과에 따른 대조
여기서는 M과 N의 그룹 수준 주효과를 함께 평균하여 k-평균 기능적 클러스터링을 수행했습니다. 그런 다음 각 소포와 참가자에 대한 M과 N의 주 효과를 얻기 위해 각 기능 소포에 속하는 뇌 복셀에 대한 M과 N(GLM에서)의 첫 번째 수준 주 효과를 평균화했습니다. 이로 인해 각 참가자, 기능적 구획 및 실험 조건(M 및 N)에 대한 새로운 시계열이 생성되었습니다. 이러한 시계열은 단변량 대비(M 대 N, 그림 2D, 방법 및 그림 S9 및 S10, 결과)에 제출되었습니다. 구체적으로, 각 소포 및 시점에 대해 M 대 N의 주 효과를 대조하는 하나의 2-표본 t-검정(임계값 P < 0.05)을 계산했습니다. 그런 다음 다음을 사용하여 다중 비교를 수정했습니다. 1,000 순열을 사용하는 2차원 MCS 접근 방식(MCS P < 0.001). 널리 채택된 이 통계 절차에 대한 자세한 내용은 Bonetti et al. (2020), Bonetti, Brattico, Carlomagno, 외. (2021a), Bonetti, Bruzzone, Sedghi, et al. (2021b), Bonetti, Brattico, Vuust, et al. (2021c). 다른 분석에서와 마찬가지로 연구에서 조사된 두 가지 주요 주파수 대역에 대해 이러한 작동이 관찰되었습니다(그림 3 및 표 S8).
결과
실험 설계 및 MEG 센서 분석
우선, MEG 데이터를 전처리한 후(자세한 내용은 그림 1A 및 B, 재료 및 방법 참조) MEG 센서에 의해 기록된 M 대 N 인식의 기초가 되는 뇌 활동을 대조했습니다. 이 절차에서는 크고 중요한 클러스터(P < 0.001, 클러스터 크기 k=2,117, 평균값=3.29, 시간)를 반환했습니다.=0.547–1.180 s), M 대 N에 대한 더 강한 뇌 활동을 보여줍니다. 더욱이, 중요한 클러스터를 형성하는 MEG 채널을 통해 기록된 뇌 활동은 두 가지 주요 주파수 구성 요소를 나타내는 시계열을 설명합니다. 그림 S2A에서 볼 수 있듯이, 시퀀스를 구성하는 각 항목이 표시된 후 더 빠른 주파수 구성 요소가 최고조에 이르렀고, 전체 시퀀스를 수반하는 느린 주파수 구성 요소가 나타났습니다. 이 증거는 모든 MEG 센서 데이터에 의해 기록된 유발 응답에 대한 복잡한 Morlet 웨이블릿 변환의 계산에 의해 추가로 뒷받침되었으며, 이는 작업 중에 기록된 MEG 신호에 대한 1Hz 및 4Hz의 주요 기여를 강조했습니다(그림 S2B). 따라서 다음 분석은 주로 1Hz와 4Hz 주위에 정의된 두 개의 주파수 대역(0.1–1 및 2–8Hz)에 중점을 두었습니다. 중요한 것은, 우리는 2~8Hz 및 0.1~1Hz의 주파수 대역이 실험 작업과 관련된 두 가지 주요 프로세스, 즉 시간 순서를 형성하는 단일 항목 처리(i-로컬 처리)와 시간 순서를 포괄적인 상위 항목으로 인식한다는 가설을 세웠습니다. 객체(ii - 전역 처리).
재구성된 뇌 활동 및 단일 항목 분석 소스
우리는 M 대 N 시퀀스의 기본이 되는 재구성된 뇌 활동을 대조했습니다(자세한 내용은 재료 및 방법 참조). 주요 두 주파수 대역({{0}}.1–1 및 2–8Hz)에 대해 서로 다른 결과가 나타났습니다. 0.1-1Hz의 뇌 활동은 특히 시퀀스의 마지막 세 항목을 처리하는 동안 M과 N의 경우 더 강력했습니다. 그림 1D, 그림 S3-S5에 도시된 바와 같이, 이러한 활동은 대상회, 해마, 섬엽, 전두엽 및 열등한 기억 및 평가 과정과 관련된 뇌 영역을 포함하는 시퀀스의 전체 처리를 기본으로 하는 광범위한 뇌 네트워크를 묘사합니다. 측두엽 피질(MCS P < 0.001). 반대로, 2~8Hz 대역의 뇌 활동은 N에 비해 M에 비해 전반적으로 더 강했으며 주로 청각 피질과 관련되었습니다(MCS P < 0.001). 주파수 0.1-1 및 2-8Hz에 대한 최고 중요 뇌 복셀의 통계는 표 1에 보고되어 있으며, 세 가지 주파수 대역에 대한 광범위한 결과는 표 S1 및 S2에 설명되어 있습니다.
기능적으로 파생된 ROI의 대조
시간에 따른 뇌 활동의 시공간적 전개를 완전히 특성화하기 위해 우리는 {{3} }.1–1 및 2–8Hz 주파수 대역. 이로 인해 각 참가자, 기능적 소포 및 실험 조건(M 및 N)에 대한 새로운 시계열이 생성되었으며, 이는 단변량 대비(M 대 N)에 제출되고(그림 3) 클러스터 기반 MCS를 사용하여 다중 비교를 위해 수정되었습니다.
이전 분석과 유사하게 느린 대역에서 가장 강한 뇌 활동이 M에서 감지되었습니다. 놀랍게도 첫 번째 분석을 확장하면 이 새로운 결과는 시간 순서 처리와 함께 일련의 순차적으로 활성화되는 뇌 소포를 강조했습니다. 그림 3A에서 볼 수 있듯이, 뇌는 N에 비해 M에 대한 힘이 약간 더 강한 것을 특징으로 하는 오른쪽 청각 피질의 초기 활동을 나타냈습니다(그림 3A, 소포 1: P < 0.0{ {10}}1, 클러스터 크기 k=39, 평균 t 값=2.72, 첫 번째 객체 시작 시간: 0–0. 25초). 다음으로 우리는 왼쪽 청각 피질의 신경 활동을 관찰했지만 실험 조건 간에는 유의미한 차이가 없었습니다(그림 3A, 소포 2). 두 번째와 세 번째 항목 사이에서 시작하여 시간 순서의 다섯 번째 항목 동안 정점에 도달하면 대상 이랑에서 활동이 급증하는 것을 관찰했는데 이는 M 대 N에 대해 더 강했습니다(그림 3A, 소포 3: P <{34} }.001, k=92; t-값=2.73; 시간: 0.45~1.05초). 약간의 지연과 함께 뇌섬엽, 하측두엽 피질의 앞쪽 부분, 해마 및 전두엽 덮개로 구성된 더 큰 뇌 소포에 대해 유사한 프로필이 나타났습니다. 다시 한번, M은 N보다 크게 강했습니다(그림 3A, 소포 4: P < 0.001, k=77; t-값=2.79; 시간: 0.69–1.19 s). 마지막으로, 참가자의 패턴 분류에 대한 평균 반응 시간 직전에 최고점에 도달한 후 중추회 및 감각운동 피질의 더 강한 활동이 M 대 N에 대해 관찰되었습니다(그림 3A, 소포 5, 주요 클러스터: P < 0.001, k=142; t-값=2.68; 시간: 0.94–1.88초).

반대로, 2-8Hz 대역에 대한 분석은 시계열의 날카로운 피크 주변에서 N 대 M에 대한 더 강한 활동의 몇 가지 중요한 클러스터를 보여주었습니다. 특히, 시간 순서의 5개 항목에 대한 첫 번째 분석과 비교하여, 이 두 번째 절차에서는 시간 순서의 마지막 세 가지 톤에 해당하는 이러한 차이의 시간적 범위를 명확하게 설명했습니다. 구체적으로 이러한 차이는 오른쪽(그림 3B, 소포 1, 주 클러스터 I: P < 0.001, k=11, t-값 {{)과 관련됩니다. 9}}.51; 시간: 0.89–0.95초; II: P < 0.001, k {{ 17}}; t-값=2.22; 시간: 1.21–1.28초) 및 왼쪽 일차 청각 피질(그림 3B, 소포 2, 주 클러스터 I: P < 0.{{46 }}01, k=12, t-값=−3.70, 시간: 0.74–{{6{{7{{ 76}}}}}}.81 s; II: P < 0.001, k {{40}}; t-값 {{ 42}}.09; 시간: 0.87–{{1{{105}}1}}.95초; III: P < {{113} }.001, k {{50}}; t-값=2.90; 시간: 0.64~0.69초). 강도가 감소하면 유사한 활동 클러스터가 오른쪽에서 관찰되었습니다(그림 3B, 소포 3, 주 클러스터 I: P < 0.001, k=13, t-값=3.08; 시간 : 1.19~1.27초, II: P < 0.001, k=12, t 값=3.61, 시간: 0.89~0.96초) 및 왼쪽 이차 청각 피질과 해마 영역(그림 3B, 소포 4, 주 군집 I: P < 0.001, k=12,t 값 {{86}} −2.97, 시간: 0.74–0.81 s, II: P < 0.001, k {{95 }}; t-값=2.86; 시간: 0.87–0.93 s) 및 대상(그림 3B, 소포 5, 주 클러스터 I: P < 0.001, k=10, t-값 { {109}}.03; 시간: 0.90~0.96초; II: P < 0.001, k=9; t-값=−2.29; 시간: 0.79~0.84초). 이러한 대조에 대한 추가 세부 사항은 표 S8에보고되어 있으며 그림 1 및 2에 광범위하게 설명되어 있습니다. S9와 S10.

결론적으로 그림 4는 흥미로운 현상을 질적으로 보여주고 있다. 첫 번째 소리에 대한 "웨이블릿" 반응은 일차(i 부분) 및 이차 청각 피질, 뇌섬엽, 해마 영역(ii 부분) 및 대상(iii 부분)에 대해 매우 유사한 활동을 보인 반면, 다음 소리에 대한 최고점은 다른 것으로 나타났습니다. 특히 시퀀스의 세 번째 및 네 번째 항목에 대한 반응입니다. 이 경우, 2차 청각 피질, 섬엽, 해마 영역 및 대상은 1차 청각 피질 이전에 정점에 도달한 것으로 보입니다. 그러나 처음에 나타나는 것과는 달리 이는 해당 영역에서 더 빠른 응답을 나타내지 않을 수 있습니다. 실제로, 예를 들어 0.5s 주변의 피크(그림 4의 첫 번째 빨간색 사각형)를 살펴보면 첫 번째 피크(주로 2차 청각 피질, 섬엽, 해마 영역 및 대상에서 발생)가 일치해야 합니다. P300 성분은 패턴의 두 번째 소리에 해당하고, 두 번째 피크(주로 일차 청각 피질에서 발생)는 세 번째 소리에 대한 P50일 수 있습니다. 시퀀스의 다음 항목에 대해 유사한 현상이 발생했습니다(다른 빨간색 사각형으로 설명됨).
이는 일차 청각 피질의 기여가 하위 수준 프로세스를 색인화하는 첫 번째 구성 요소(예: P50 및 N100)에 대해 더 강력했지만 P300과 같은 이후 구성 요소는 주로 이차 청각과 같은 고차 영역에서 생성될 수 있음을 시사할 수 있습니다. 피질, 섬엽, 해마 부위 및 대상 피질. 현 상태에서 이것은 이 현상을 구체적이고 정량적으로 조사하는 것을 목표로 하는 향후 연구가 필요한 질적 관찰일 뿐입니다.
논의
음악 시퀀스를 사용한 이 MEG 연구에서는 청각적 시간 시퀀스 인식과 관련된 뇌의 이중 동시 처리가 밝혀졌습니다. 한편으로, 시퀀스를 형성하는 지역적, 단일 항목의 제시는 감각 피질에 의해 구동되는 빠르고 진동하는 지역적 처리와 연결되었습니다. 이 처리는 새로운 음악 시퀀스와 기억된 음악 시퀀스를 형성하는 소리를 인식하는 데 더 강력했습니다. 반면, 전체적인 전체 시간적 순서의 처리는 순차적으로 활성화되는 상위 뇌 영역의 광범위한 네트워크를 포함하는 동시적인 전역적이고 느린 처리와 관련이 있습니다. 이 경우, 뇌 활동은 기억된 서열과 새로운 서열에서 더 강했습니다.
이러한 이중 동시 처리는 시퀀스의 마지막 세 가지 톤의 표시와 관련하여 특히 두드러졌으며, 이는 인식 과정을 시작하려면 뇌에서 최소한 두세 가지 톤이 필요함을 시사합니다. 여기서 뇌는 주로 기억, 주의력, 오디션, 의사결정과 관련된 광범위한 영역 네트워크를 모집합니다. 이러한 뇌 영역은 해마(Knierim 2015), 대상회(Rolls 2019; Pando-Naude et al. 2021; Criscuolo et al. 2022), 하측두엽 피질(Conway 2018), 전두엽 덮개(Indefrey et al. 2001; Behroozmand et al. 2022)였습니다. al. 2015), insula(Uddin 2015), 1차 및 2차 청각 피질(Elhilali et al. 2004). 특히, 두 프로세스(전체 및 로컬)는 거의 동일한 뇌 영역을 포함하지만 신경 유발 반응의 다른 빈도에 의존합니다. 더욱이, 국소 처리는 감각 피질(예: 청각 피질)에 주로 의존하는 반면, 전역 처리는 대상, 하측두엽 피질 및 해마와 같은 고차원 뇌 영역의 더 넓은 모집을 제시했습니다.
놀랍게도 청각적 시간 순서 인식은 낮은 수준에서 높은 수준의 뇌 영역 체인을 재배선하는 점진적으로 느린 사건의 연쇄와 관련이 있습니다. 0.1-1Hz 대역에서 관찰된 이 증거는 뇌가 후속 활성 영역의 계층적 경로를 모집함으로써 전개되는 시간 순서에 대한 의미 있는 이해를 추적하고 점진적으로 구성한다는 것을 나타낼 수 있습니다. 반대로, 2~8Hz 대역의 활동은 시간 순서의 각 항목 이후에 약간 정점에 달하는 보완적인 프로필을 보여주었습니다. 이러한 증거는 0.1-1Hz 대역이 전체 시퀀스(전역 처리)에 대한 포괄적인 이해를 달성하는 데 관련될 수 있는 반면, 2-8Hz 대역은 단일 항목(로컬 처리)에 대해 독립적으로 정교화될 수 있음을 시사합니다. 처리). 그러나 우리의 결과는 그러한 밴드가 내부 뇌 메커니즘을 나타내는지 아니면 단순히 자극에 의한 것인지 결정적으로 알 수 없습니다. 이 중요한 질문을 해결하려면 향후 연구가 필요할 것입니다.
우리 결과의 주요 참신함은 실험 조건(M 및 N)에서 두 주파수 대역에 대해 관찰된 뇌 신호의 차등 강도와 관련이 있습니다. 실제로, 0.1-1Hz 대역은 기억된 시퀀스에 대해 더 강한 전력을 나타냈지만, 2-8Hz 대역은 새로운 시퀀스에 대해 더 큰 응답을 나타냈습니다. 이러한 발견은 뇌가 환경 정보를 예측하기 위해 내부 모델을 지속적으로 업데이트하고 있다고 가정하는 예측 코딩 이론(Friston 2012; Vuust et al. 2012; Koelsch et al. 2019)의 관점에서 볼 수 있습니다. 여기서 뇌가 시간적 순서(예: 시퀀스의 2번과 3번 톤 주변)를 인식할 때 이전에 기억된 다가오는 항목에 대해 시퀀스를 완료하는 더 나은 예측을 공식화할 수 있습니다.
따라서 실험적으로 관찰한 것처럼 이러한 항목에는 더 낮은 로컬 처리가 필요합니다. 흥미롭게도, 주로 일차 청각 피질에 국한되어 있지만 2~8Hz 밴드 활동의 신경 소스는 해마 영역, 이차 청각 피질, 뇌섬 및 대상에도 배치되었습니다. 이전에 언급한 바와 같이, 이 증거는 대략 동일한 뇌 영역이 매우 다른 기능적 프로필을 특징으로 하는 두 개의 동시 주파수 대역을 생성하여 시간 순서의 로컬 및 전체 처리를 색인화한다는 것을 시사합니다. 또한 로컬 처리에 대해 우리의 결과는 각 사운드의 정교함이 세 가지 주요 피크(구성 요소)가 있는 웨이블릿과 같은 시계열을 발생시켰다는 것을 보여줍니다. 여기서 첫 번째 구성 요소(예: P50 및 N100(Coles 및 Rugg 2008))에 의해 색인된 소리의 하위 수준 정교화는 주로 일차 청각 피질에서 시작되었습니다. 반대로, P300(Coles and Rugg 2008)과 같은 후기 구성 요소는 특히 2차 청각 피질, 섬엽, 해마 영역 및 대상과 같은 고차원 영역에서 생성되었습니다. 놀랍게도, 그러한 현상은 시간적 순서가 펼쳐지면서 더욱 분명해졌으며, 이는 단일 항목의 점진적으로 더 세련된 정교함이 뇌가 전체 시간적 순서의 의미를 이해하는 데 필수적일 수 있음을 시사합니다.
또 다른 참고로, 이전의 몇몇 연구에서는 신경 신호의 다양한 위치 측면에서 전체적 및 국소적 처리가 설명되었습니다(즉, 들어오는 자극을 정교하게 처리할 때 일차 감각 피질이 고차 뇌 영역보다 먼저 선행했습니다(Qiu 및 Von Der Heydt 2005). 우리의 연구는 동일한 뇌 영역이 두 개의 동시 주파수 대역을 사용하여 이 두 프로세스(전역 및 로컬)를 동시에 작동한다는 것을 보여 주었는데, 이는 아마도 복잡한 다중화를 암시할 수 있습니다. 청각 지각과 언어 이해에 있어서 동일한 항목이 있습니다(Giraud and Poeppel 2012).
또한 소리 정보에 대한 청각 처리 및 기억을 조사한 이전 연구 중 일부는 우리의 느린 전역 처리와 유사한 느린 유발 반응을 보고했습니다. 예를 들어, Picton(1978)은 소리에 반응하여 인간 두뇌의 청각 지속 전위에 대한 증거를 제공했습니다. 최근에는 Bidet-Caulet et al. (2007)은 두개내 EEG를 사용하여 소리 정보에 대한 선택적 주의가 2차 청각 뇌 영역에서 지속적인 유발 반응과 연관되어 있음을 보여주었습니다. 유사하게, Grimault et al. (2014)는 청각 단기 기억을 연구하면서 여러 청각 항목을 기억할 때 전두엽, 측두엽, 두정엽 영역에서 뇌 활동이 지속된다고 보고했습니다. 이러한 발견에 따라 Albouy와 동료들은 참가자들에게 청각 작업 기억 작업을 수행하도록 요청했을 때 느린 유발 반응을 보였습니다.
그들은 특히 청각 자극의 유지 및 조작과 관련하여 느리고 지속적인 뇌 반응을 보고했습니다(Albouy et al. 2013, 2017).
마지막으로, 우리의 연구 결과는 잘 알려진 뇌의 2흐름 가설(Goodale and Milner 1992; Whitwell et al. 2014)의 개념과 관련되고 확장되었습니다. 이러한 개념화는 시각 및 청각 정보의 고차원적 정교화를 위한 2가지 주요 경로를 제안했습니다. 한편으로 복부 흐름은 감각 영역(예: 시각 및 청각 피질)에서 내측 측두엽으로 이어지며, 주로 물체 인식과 관련된 기능을 처리합니다(Goodale and Milner 1992; Weiller et al. 2021). 반면에 등쪽 흐름은 감각 피질의 정보를 두정엽으로 가져와 자극의 공간적 특징을 정교하게 만듭니다(Arbib 2017).
이 가설과 일관되게, 우리의 결과는 해마 영역, 전두엽 덮개 및 하측 측두엽 피질과 같은 인식 과정과 관련된 복부 흐름의 여러 뇌 영역을 강조했습니다. 그러나 놀랍게도 우리의 결과는 적어도 세 가지 중요하고 결정적인 논평을 제공함으로써 2-스트림 가설에 대한 이전 지식을 더욱 확장했습니다. (i) 시간적 순서에 대한 뇌 인식은 단일 항목이나 동기 패턴의 식별과 공유되지 않는 독특한 공간-시간적 특징을 나타냅니다. (ii) 2-스트림 가설과 관련된 뇌 영역 외에도, 우리의 연구 결과는 청각 시간 순서 인식을 달성하기 위해 대상회(cingulate gyrus)의 특권적인 역할을 보여주었습니다. (iii) 마지막으로, 시간이 지남에 따라 전개되는 시퀀스의 인식에는 동일한 항목의 이중 동시 처리가 포함되며, 뇌는 이를 동시에 정보의 개별 조각(국소 처리)과 더 큰 전체의 기본 부분(전역 처리)으로 해석합니다. 특히, 우리의 연구는 국소 처리가 새로운 청각 정보와 매우 관련이 있는 반면, 이전에 기억된 음악 시퀀스는 뇌의 전체 처리의 강력한 관여를 통해 인식된다는 것을 보여주었습니다.
비음악적 시간적 순서(예: 숫자, 단어 및 시각적 요소의 순서) 인식의 기초가 되는 뇌 메커니즘을 연구함으로써 이 주제를 더 조사하기 위한 향후 연구가 필요합니다. 또한, 다양한 범주의 사람들 사이에서 잘 알려진 인지 능력의 차이(예: 노인 대 젊은 성인(Fernàndez-Rubio, Brattico, et al. 2022a; Fernàndez-Rubio, Olsen, et al. 2022c))를 기반으로, 음악가 대 젊은 성인 비음악가(Criscuolo et al. 2019; Bonetti, Brattico, Vuust, et al. 2021c), 건강한 개인 대 환자(Valenzuela 및 Sachdev 2006)), 향후 연구에서는 나이와 임상 조건이 뇌 메커니즘에 미치는 영향을 탐구해야 합니다. 기본 시간 시퀀스 인식.
저자 기여
개념화: LB, EB, MLK, PV; 방법론: LB, MLK, DP, GDE; 소프트웨어: LB; 분석: LB; 조사: LB, GDO; 자원: MLK, PV, EB, LB; 데이터 큐레이션: LB; 작문—원본 초안: LB; 쓰기 - 검토 및 편집: LB, SEPB, EB, DP, GDE, GDO, PV; 시각화: LB, SEPB; 감독: MLK, PV, DP, EB; 프로젝트 관리: LB, MLK, PV, EB; 자금조달 : LB, PV, MLK.

감사의 말
신경과학 실험에 도움을 주신 Riccardo Proietti, Giulio Carraturo, Mick Holt 및 Holger Friis에게 감사드립니다. 또한 심리 테스트 및 설문지 관리에 도움을 준 심리학자 Tina Birgitte Wisbech Carstensen과 논문 표시 항목에 도움을 준 Francesco Carlomagno에게 감사드립니다.
보충 자료
보충 자료는 Cerebral Cortex 온라인에서 이용 가능합니다.
자금 조달
뇌 속 음악 센터(MIB)는 덴마크 국립 연구 재단(프로젝트 번호 DNRF117)의 자금 지원을 받습니다.
LB는 Carlsberg Foundation(CF20-0239), Lundbeck Foundation(Talent Prize 2022), Center for Music in the Brain, Linacre College of the University of Oxford, Society for Education and Music Psychology(SEMPRE 창립 50주년)의 지원을 받습니다. 수상 계획).
MLK는 뇌 속의 음악 센터와 Pettit 및 Carlsberg 재단이 자금을 지원하는 Eudaimonia 및 Human Flourishing 센터의 지원을 받습니다.
GD는 보조금 협정 번호 111에 따라 유럽 연합의 Horizon 2020 연구 및 혁신 프로그램과 스페인 연구 프로젝트 PSI2016- 75688-P(AEI/FEDER, EU)의 지원을 받습니다. 720270(HBP SGA1) 및 번호. 785907(HBP SGA2) 및 카탈로니아 AGAUR 프로그램 2017 SGR 1545.
또한 저자 Giulia Donati와 학생 조교인 Riccardo Proietti 및 Giulio Carraturo에게 경제적 지원을 제공한 볼로냐 대학과 Francesco Carlomagno에게 경제적 지원을 제공한 Mensa: International High IQ Society의 이탈리아 섹션에 감사드립니다.
참고자료
알-주비 MB, 알 RM. 실루엣 계수를 계산하기 위한 효율적인 접근 방식입니다. J 컴퓨팅 과학. 2008:4(3):252–255.
2.Albouy P, Mattout J, Bouet R, Maby E, Sanchez G, Aguera PE, Daligault S, Delpuech C, Bertrand O, Caclin A 외. 선천성 무악증의 음조 지각 및 기억 장애: 장애는 청각 피질에서 시작됩니다. 뇌. 2013:136(5):1639~1661.
3.Albouy P, Weiss A, Baillet S, Zatorre RJ. 등쪽 흐름에서 세타 진동의 선택적 동반은 청각 작업 기억 성능을 인과적으로 향상시킵니다. 뉴런. 2017:94(1):193–206.
4. 아르비브 MA. Dorsal과 Ventr1982al은 언어 준비 두뇌의 진화 과정을 통해 언어를 세계와 연결합니다. J 신경언어학. 2017:43:228-253.
5. Behroozmand R, Shebek R, Hansen DR, Oya H, Robin DA, Howard MA, Greenlee JDW. 음성 생성 및 운동 제어와 관련된 감각 운동 네트워크: fMRI 연구. NeuroImage. 2015:109: 418–428.
6. Berdyyeva TK, 올슨 CR. 일련의 순서로 동작과 개체를 선택하는 동안 마카크 전두엽 피질의 4개 영역에서 신호의 순위를 매깁니다. J 신경물리학. 2010:104(1):141–159.
7. Bidet-Caulet A, Fischer C, Besle J, Aguera PE, Giard MH, Bertrand, O. 인간 청각 피질에서 동시 소리의 전기 생리학적 표현에 대한 선택적 주의 효과. J Neurosci. 2007:27(35):9252-9261.
8.Bonetti L, Brattico E, Carlomagno F, Cabral J, Stevner A, Deco G, Whybrow PC, Pearce M, Pantazis D, Kringelbach ML. 요한 세바스티안 바흐의 음악을 인식하는 동안의 시공간적 뇌 역학. bioRxiv. 2020:27.35:9252–9261.
9.Bonetti L, Brattico E, Carlomagno F, Donati G, Cabral J, Haumann NT, Deco G, Vuust P, Kringelbach ML. 전뇌 연결에서 발견된 음악적 음색의 신속한 인코딩. NeuroImage. 2021a:245:118735.
10. Bonetti L, Brattico E, Vuust P, Kliuchko M, Saarikallio S. 지능과 음악: 지능 지수가 낮을수록 강한 감각을 경험하기 위해 음악을 더 많이 사용하는 것과 관련이 있습니다. 엠피르 스터드 아트. 2021c:39(2):194–215.
For more information:1950477648nn@gmail.com