Cistanche Tubulosa의 Chalcone Synthase의 클로닝, 기능 식별 및 발현 분석
Mar 22, 2024
개요: 목표
의 기능을 연구하기 위해Cistanche tubeulosa의 칼콘 합성효소흰색, 빨간색, 보라색 꽃의 CtCHS 유전자 발현 패턴.
행동 양식CtCHS 유전자를 RT-PCR로 클로닝하고 생물정보학 분석을 수행하였다. pET-28a-CtCHS 플라스미드를 대장균(Escherichia coli)으로 옮겨 IPTG에 의한 단백질 발현을 유도했습니다. CtCHS 재조합 단백질을 기질 p-쿠마로일 CoA 및 말로닐 CoA와 함께 배양하고 생성물을 HPLC 및 MS로 검출했습니다. pCAMBIA1300-35S-GFP-CtCHS 플라스미드를 Arabidopsis thaliana의 원형질체로 옮겨 CtCHS 단백질의 세포내 위치를 관찰했습니다. qRT-PCR을 통해 세 가지 색상의 C. tubeulosa 꽃에서 CtCHS 유전자의 발현 패턴을 확인했습니다.
결과CtCHS 유전자가 복제되었습니다. 오픈리딩프레임(ORF)의 길이는 1173bp로 390개의 아미노산을 암호화하고 있으며, 단백질의 분자량은 42 8000이다.

30% 에키나코사이드와 12% 액테오사이드가 함유된 유기농 시스탄치 추출물

CtCHS에는 칼콘 합성효소에 보존된 촉매 잔기 Cys164, His303, Asn336이 포함되어 있습니다. CtCHS 단백질을 대장균에서 발현시키고 정제하여 재조합 단백질을 얻었다. CtCHS 단백질은 p-coumaroyl CoA와 말로닐 CoA를 촉매하여 나린제닌 칼콘을 생산할 수 있습니다. CtCHS 단백질은 주로 세포질에 국한되어 있습니다. CtCHS 유전자는 보라색 꽃과 빨간색 꽃에서 높게 발현되었으며, 상대적 발현 수준은 흰색 꽃에 비해 각각 8.44배와 3.21배 높았다.
결론 C. tubeulosa 꽃에서 CtCHS 유전자를 클로닝하여 단백질을 발현시켰다. CtCHS 단백질은 칼콘 합성효소 기능을 가지며, CtCHS 유전자의 발현은 어두운 꽃에서 더 높습니다. 이는 CtCHS 유전자가 C. tubeulosa의 꽃 색깔을 조절할 수 있음을 나타내며, 이는 CtCHS 꽃 색깔의 조절 메커니즘에 대한 추가 연구의 기반을 마련합니다. .
핵심 단어: Cistanche tubeulosa(Schenk) 와이트; 칼콘 합성효소; 효소 활성 분석; 세포하 위치화; 발현 분석
시스탄체 투불로사(SCHENK) WIGHT는 신장 남부[1], 신장 허티 지역[2]에 자연적으로 분포하는 Pyreal 식물 속입니다. 파이프 꽃은 약용 가치가 높습니다. 고기 줄기는 2020년 버전의 소스 중 하나입니다.중국 약전". [3] 파이프꽃 코르도누스 육줄기에 대한 연구는 늘어났지만 꽃에 대한 생물학적 연구는 상대적으로 적다. 파이프꽃의 개화시기는 4~5월이다. [4] 주로 흰색 3색이 있다. 파이프꽃은 색상이 풍부하지만 꽃 색상 조절 메커니즘은 꽃잎 조직 구조의 유형, 함량, 함량 및 분포, 색소 및 환경 요인 조절과 관련이 있는 것으로 보고되었습니다. 식물 꽃의 색소에는 주로 플라보노이드, 카로틴, 비트인의 세 가지 범주가 있습니다. 색상은 가장 광범위합니다. 플라보노이드의 유형과 함량은 다음과 같은 많은 식물의 색상에 영향을 미칩니다. Paeonia Lactiflora Pall의 세 가지 변종입니다.
흰색으로 나타나며, 색상의 주색에는 붉은색의 색이 포함되어 있으며, 아름다운 능력으로 보라색-빨간색으로 꽃을 표현하게 한다[8]. 꽃 색깔은 많은 관상용 식물의 중요한 특징이며, 분홍색 곤충을 유인하는 핵심 요소이기도 합니다[9]. 연구에 따르면 이것이 전염되는 것으로 나타났습니다. 곤충 방문 빈도가 가장 높은 곳은 진한 보라색 시스탄체 식물입니다[10]. 통꽃 시스타노사우루스 꽃에 있는 시스타노이드의 합성 유전 연구에 대한 생물학적 연구에서 통꽃 코르돈 착색 제어 메커니즘을 명확히 하고 유전 공학 기술의 색상을 개선하고 더 풍부한 색상을 촉진하며 보기를 늘리기 위한 이론적 기초를 제공하는 데 도움이 됩니다. 응용 범위를 확장합니다.
생합성 경로플라보노이드로 시작한다페닐프로파노이드 경로. 페닐알라닌은 먼저 페닐알라닌 암모니아분해효소(PAL)의 작용에 따라 신남산으로 전환되고, 신남산은 신남산에 의해 4-수산화됩니다. 효소(신남산-4-수산화효소, C4H)와 4-쿠마레이트 조효소 A 리가제(4-쿠마레이트 조효소 A 리가제, 4CL)는 반응을 촉매하여 4-쿠마로일-CoA를 생성합니다. [11]. 4-쿠마로일-CoA 1분자와 말로닐-CoA 3분자가 칼콘 합성효소(CHS)에 의해 촉매작용을 받아 나린제닌 칼콘을 생성합니다.플라보노이드 화합물.찰콘 이성화효소, 플라바논-3-수산화효소, 디하이드로플라보놀4-환원효소 등의 기본 골격은 이소플라본, 플라보놀, 안토시아닌 등과 같은 다양한 플라보노이드를 생성합니다[12]. 플라보노이드 생합성 경로의 핵심 효소인 CHS는 식물의 플라보노이드 함량을 조절하고 식물의 꽃 색깔을 조절하는 데 중요한 역할을 합니다. 예를 들어, Gentiana scabra Bunge CHS의 전사 후 유전자 침묵은 안토시아닌의 생합성을 억제하고 화관 돌출부의 특정 미백을 유발할 수 있습니다[14]. Actinidia eriantha Benth의 CHS 유전자 침묵. CHS는 꽃잎의 안토시아닌 함량을 감소시켜 붉은색 꽃잎의 색을 연하게 만든다[15]. 따라서 본 연구에서는 Cistanche Deserticola 꽃에서 CtCHS 유전자를 클로닝하고 이에 대한 생물정보학 분석, 원핵생물의 발현 및 정제, 효소 활성 분석, 세포내 위치 분석 및 3가지 색상의 꽃에 대한 발현 분석을 수행하여 CtCHS의 기능을 탐색하였다. 단백질과 CtCHS 유전자의 발현 패턴을 사용하여 CtCHS와 시스탄체 데저티콜라 꽃 색깔 사이의 관계를 예비적으로 탐색했으며, 이는 시스탄체 데저트티콜라 꽃 색깔의 조절 메커니즘 연구의 기초를 마련했습니다.
1 재료 및 도구
1.1 재료
시스탄체 투베로사 꽃은 2018년 5월 신장 호탄현 위텐 현에서 수집되었습니다. 샘플링 중에 무작위 원칙을 따랐으며 생리학적 상태가 좋고 식물 높이가 일정한 시스탄체 투베로사 꽃을 선택했습니다. 흰색, 빨간색, 보라색의 세 가지 꽃색을 지닌 Cistanche Deserticola 3종을 북경대학교 약학대학의 Tu Pengfei 교수가 채취하여 Cistanche tubeulosa (Schenk) Wight로 식별했습니다. 이를 액체질소에 급속냉동시킨 뒤 드라이아이스에 담아 베이징으로 운송했다. E. coli DH5 화학적 능력 세포는 Nanjing Novezan Biotechnology Co., Ltd.에서 구입하였고, E. coli BL21(DE3) 화학적 능력 세포는 Beijing Quanshijin Biotechnology Co., Ltd.에서 구입했습니다. pET-28a, pCAMBIA1300-35S-GFP 벡터는 Wuhan Transduction Biology Laboratory Co., Ltd.에서 구입했습니다. Malonyl-CoA는 Sigma Company에서 구입했으며, 4-coumaroyl-CoA, naringenin -chalcone은 Shanghai Yuanye Biotechnology Co., Ltd.에서 구입했으며 naringenin은 Shanghai McLean Biochemical Technology Co., Ltd.에서 구입했습니다.
1.2 악기
Nanodrop 2000C 분광광도계(Thermo Fisher Company, 미국); 구배 PCR 기기(Eppendorf Company, Germany); CFX 96 형광 정량 PCR 기기, UVP 겔 이미저, 겔 전기영동 기기, 단백질 전기영동 기기(BioRad Company, USA);EnSpire
마이크로플레이트 리더(미국 PerkinElmer Company); 항온 인큐베이터(Shanghai Jinghong Experimental Equipment Co., Ltd.); DHZ-D 대용량 전온 발진기(Taicang Experimental Equipment Factory); THZ-82수욕 항온 발진기(Jiangsu Kexi Instrument Co., Ltd.); AIRTECH 초청정 작업대(Suzhou Antai Air Technology Co., Ltd.); 고압 증기 멸균기(일본 TOMY Company); Milli Q 순수 물 기기(Millipore, 미국); LC-20고효율 액체상 크로마토그래프(Shimadzu Company, 일본); UPLC-Q-Exactive-Orbitrap 고분해능 질량 분석기(Thermo Fisher Company, USA); FV1200 레이저 공초점 현미경(일본 Olympus Company).

2 실험 방법
2.1 RNA 추출 및 cDNA 합성. Cistanche Deserticola 꽃을 액체 질소에 분쇄한 후 RNA 추출 분석을 실시했습니다.
키트(Norgen, Cat 17200)를 사용하여 총 RNA를 추출하고, NanoDrop 2000C로 RNA 농도와 품질을 검출하고, cDNA의 역전사 합성을 위해 A260/A280 비율이 1.8~2.1인 RNA 샘플을 선택했습니다. M-MLV 역전사효소(Promega, M170B)를 사용하여 적격 전체 RNA를 cDNA로 역전사했습니다. 실험 작업은 지침에 따라 수행되었습니다.
2.2 CtCHS 유전자의 클로닝
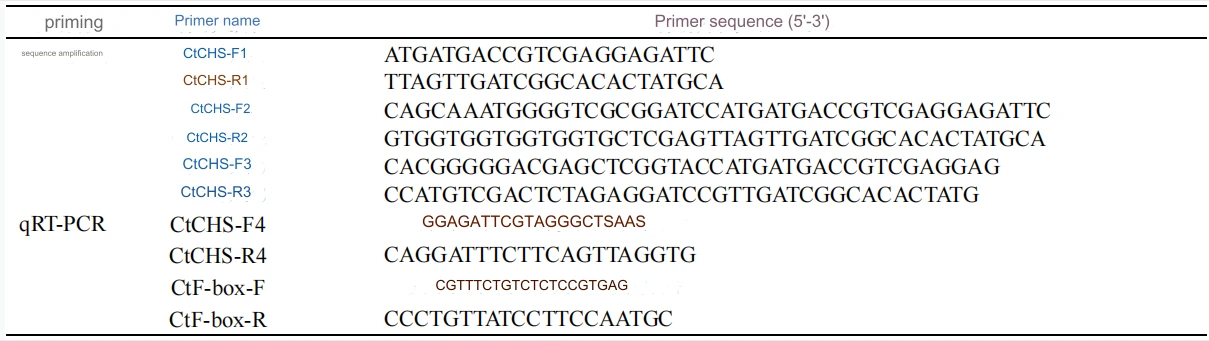
우리 연구 그룹의 Cistanche Deserticola 꽃 전사체 데이터를 기반으로 [16] 완전한 개방형 판독 프레임을 갖춘 CtCHS를 선별하고 SnapGene 소프트웨어를 사용하여 유전자 서열을 기반으로 특정 프라이머를 설계했습니다(표 1). Cistanche Deserticola 꽃 cDNA를 주형으로 사용하여 PCR 증폭을 수행했습니다. 증폭 시스템은 2×Phanta Max 완충액 25μL, dNTP Mix(10mmol/L) 1μL, 업스트림 및 다운스트림 프라이머(10μmol/L) 각각 2μL, cDNA 2μL, Phanta Max SuperFidelity
DNA 중합효소 1μL, ddH2O 17μL. 반응 조건은 다음과 같습니다: 95도에서 3분 동안 사전 변성; 95도에서 15초 동안 변성, 55도에서 15초 동안 어닐링, 72도에서 1분 동안 연장의 25주기; 72도에서 5분 동안 반응 연장. PCR 산물은 1% agarose gel 전기영동으로 검출하였고, gel 회수를 위해 DNA 정제 키트(Novizan, Cat DC301-01)를 사용한 후 회수된 DNA를 rapid cloning kit(Novizan, Cat DC301-01)로 정제하였다. C601-01). DNA 단편을 pCE2 TA/Blunt-Zero 벡터와 연결하여 Escherichia coli DH5 Competent Cell로 형질전환시킨 후 37℃에서 밤새 배양한 후 단일클론 균주를 선별하여 Sequencing을 위해 당사에 보냈다.
풀 사이즈 테이블
2.3 생물정보학 분석
ProtParam 온라인 소프트웨어를 사용하여 단백질의 물리적, 화학적 특성을 분석합니다. Prot Scale 온라인 도구를 사용하여 단백질 친수성/소수성을 분석합니다. 온라인 도구 SOPMA를 사용하여 단백질 2차 구조를 예측합니다. 온라인 분석 소프트웨어 SWISS-MODEL을 사용하여 단백질 3차 구조를 예측합니다. 온라인 소프트웨어 TMHMM을 사용하여 단백질의 막횡단 구조를 예측합니다. DNAMAN 소프트웨어를 사용하여 CtCHS의 상동성을 다른 종의 CHS 아미노산 서열과 비교합니다. MEGA-X 소프트웨어를 사용하여 이웃 결합(NJ) 및 포아송 보정을 사용하여 계통수를 구성합니다. 진화 거리는 부트스트랩 방법을 사용하여 계산되며 부트스트랩 반복 횟수는 1000회입니다.

추가 검출을 위해 UPLC-Q-Exactive-Orbitrap MS를 사용했습니다. 액상 조건은 Waters Acquity UPLC BEH Sheild RP18 컬럼(100 mm × 3.0 mm, 1.7 μm), 컬럼 온도 40 도, naringenin , 칼콘 및 나린게닌. 대조 물질의 로딩 부피는 4 μL이고, 효소 반응 생성물의 로딩 부피는 7 μL입니다. 물(A)-아세토니트릴(B)이 이동상으로 사용됩니다. 용출 구배는 0~5분, 30% B; 5~15분 , 30%~60% B; 15~20분, 60%~100% B; 20~25분, 100% B; 25~31분, 100%~30% B. 체적유량은 0.3mL/min입니다. 질량 분석 조건은 전기분무 이온원, 질소를 운반가스로, 시스가스압력 3.5MPa, 보조가스압력 1.0MPa, 스프레이압력 3500V, 모세관 온도 350도, 보조가스 가열온도 200도, 양이온 및 음이온 모드, 스캐닝이다. 이온 범위 m/z는 100-1500, 전체 MS 분해능은 35 000, dd-MS2 분해능은 17 500, (N)
CE/단계식 nce가 35, 60으로 설정되었습니다.
2.6 CtCHS 단백질의 세포하 위치화
CtCHS 서열과 심리스 클로닝 원리를 바탕으로 효소 절단 부위 Kpn Ⅰ과 BamH Ⅰ을 갖는 프라이머를 설계하고, 해당 표적 단편을 PCR로 증폭시켰다. pCAMBIA1300-35S-GFP 플라스미드를 제한 엔도뉴클레아제 Kpn Ⅰ과 BamH Ⅰ로 절단하고, 심리스 클로닝 키트(Novizan, Cat C115-01)를 통해 타겟 단편과 벡터를 연결한 후 전달하였다. E. coli DH5 수용 세포에. , 시퀀싱을 위해 단일 클론 균주를 선택하고 올바른 균주에서 플라스미드를 추출합니다. pCAMBIA1300-35S-GFP-CtCHS 및 pCAMBIA 1300-35S-GFP 플라스미드는 PEG4000을 사용하여 Arabidopsis thaliana 원형질체로 형질전환되었고, 저조도에서 8~10시간 동안 배양되었습니다. CtCHS 단백질의 세포내 위치는 레이저 공초점 현미경으로 관찰되었습니다.

2.7 CtCHS 발현 패턴 분석
CtCHS 서열을 기반으로 DNAMAN을 사용하여 F-box를 내부 참조 유전자로 사용하여 실시간 형광 정량 프라이머를 설계했습니다. 프라이머 서열은 표 1에 나와 있습니다. 다양한 색상의 Cistanche Deserticola 꽃에서 CtCHS의 상대적 발현은 실시간 형광 정량 PCR을 통해 검출되었습니다. TransStart Green qPCR SuperMix(풀 골드, AQ101-02)를 사용하여 SYBR 녹색 형광 염료 방법으로 측정, 반응 시스템: 2×TransStart Green qPCR SuperMix 5 μL, 업스트림 및 다운스트림 프라이머(10
μmol/L) {{0}}.2 μL 각각, cDNA 주형 0.5 μL, nucleotidase-free water 4.1 μL, 반응은 2단계 방법을 사용하였으며, 반응과정은 이 방법에 따랐다. Dong Xianjuan 외. [18]. 각 샘플에는 3개의 생물학적 복제물이 포함되어 있으며 실험은 3회 반복되었습니다. 실험데이터는 Excel을 이용하여 분석하였다.
CtCHS의 상대적 발현은 -ΔΔCt 방법을 사용하여 계산되었으며, GraphPad Prism 8을 사용하여 유의성 분석을 수행하고 히스토그램을 그렸습니다.