노화와 면역을 연결하는 유전자 및 경로의 기능적 보존
Mar 27, 2023
추상적인
장수와 면역력은 언뜻 보기에 다른 특성으로 보이며, 병원성 감염 후 면역 체계가 생존을 촉진한다는 사실 외에는 공통점이 많지 않습니다. 그러나 많은 증거가 면역 체계와 노화 사이의 분자 얽힌 관계를 지적합니다. 그 연관성은 동물계 전체에 잘 알려져 있지만 유전적 기반은 복잡하고 잘 이해되지 않고 있습니다. 이 문제를 해결하기 위해 인간의 면역과 노화에 관여하는 것으로 알려진 모든 유전자와 세 가지 잘 연구된 모델 유기체인 예쁜꼬마선충(Caenorhabditis elegans), 초파리 검은 오가스터(Black ogaster), 집쥐 musculus를 제시합니다. 이들 종 사이의 인간 상동성을 분석하여 진화적으로 보존된 7개의 신호 캐스케이드, 인슐린/TOR 네트워크, 그리고 노화와 면역에서 다방향 역할을 하는 3개의 MAPK, JAK/STAT, TGF- 및 Nf-κB 경로를 확인했습니다. 우리는 면역과 장수를 연결하는 이러한 경로에 대한 현재 증거와 나이에 따른 면역 체계의 유해한 잘못된 조절에 대한 역할을 검토했습니다. 이러한 경로의 표현형 효과는 종종 환경에 따라 달라지며 예를 들어 조직, 성별 및 병원성 감염 유형 간에 차이가 있다고 제안합니다. 따라서 향후 연구에서는 보다 높은 시간적, 공간적, 환경적 해상도를 탐색하여 노화를 지연시키는 적절한 방법을 찾아야 합니다.담배 발췌.
키워드:담배; 면역, 노화, 장수, 면역노화, 보호
배경
유기체는 감염된 숙주의 건강과 적합성에 많은 부정적인 영향을 미치는 다양한 병원체에 의해 지속적으로 도전을 받습니다. 따라서 병원성 감염의 신속한 해결은 해로운 결과를 제한하여 생존에 도움이 되고 적응 이점을 제공합니다. 호스트는 다양한 메커니즘을 통해 면역성을 얻습니다. 가장 중요한 것은 선천적 및 적응적 면역 시스템이 감염성 유기체에 대한 저항성을 촉진하는 두 가지 주요 경로를 나타냅니다. 면역 시스템 활성화는 일반적으로 항균 펩타이드 또는 활성 산소 종과 같은 세포 독성 분자의 발현을 유발하고 특수 면역 세포를 감염된 조직으로 모집하여 미생물 침입자를 억제하고 파괴합니다. 또한 숙주는 감염 시 자신의 생리학적 상태를 변화시켜 병원체에게 바람직하지 않은 환경을 조성합니다. 이러한 방어 메커니즘은 병원체가 있는 환경에서 생존을 지원하지만 면역 반응을 유지하고 강화하는 데는 두 가지 유형의 비용이 수반될 수 있습니다.
면역의 불리한 특성은 유기체가 노화함에 따라 특히 명백해집니다. 면역계와 염증 반응은 나이에 따른 항상성의 강한 손실에 의해 영향을 받아 면역노화(1960년대에 Roy Walford가 처음 제안한 용어)로 알려진 나이와 관련된 면역병리를 초래합니다. 정상적인 면역 기능의 감소는 병원체에 대한 감수성 증가, 백신 반응 감소, 만성 염증 또는 "염증", 상처 치유 장애, 암 발병률 증가 등 건강과 수명에 대한 여러 가지 부작용으로 나타납니다. 자기 반응성 자가항체와 같은 연령 관련 자가면역 인자의 증가도 일반적이지만, 강화된 보호 메커니즘의 동시 발생으로 인해 노인에서 자가면역 질환의 발생률이 반드시 높아지는 것은 아닙니다. 흥미롭게도 척추동물과 무척추동물을 포함한 거의 모든 종은 면역 체계, 생활사, 수명 및 생태적 지위가 매우 다양하지만 면역 노화의 영향을 받습니다. 반직관적으로, 초파리, 생쥐 및 인간에서는 항미생물 펩타이드, 사이토카인 및 보체 시스템 인자와 같은 선천 면역 및 염증의 기본이 되는 여러 유전자의 발현 수준이 증가하지만 C. 엘레강스 따라서, 기저면역력은 고령자에서 더 높지만 병원체 방어 측면에서 실현면역력은 감소합니다. 또한, 나이가 들어감에 따라 기본 면역의 증가는 염증의 유해한 전 염증 상태의 주요 원인으로 생각됩니다. 나이가 들어감에 따라 면역 세포가 고갈되면 숙주는과거에 만난 병원체에 특이적인 기억 세포와 신생 항원에 대한 방어력이 약화됩니다.
알츠하이머병, 파킨슨병, 당뇨병, 암, 죽상동맥경화증과 같은 많은 노화 관련 질병이 중요한 면역 및 염증 요소를 나타내는 것은 분명하며 이는 모델 유기체에 대한 연구에서 추가로 확인되었습니다. 서로 다른 종에서 상호 관련된 유전자와 경로를 식별하면 노화, 장수 및 면역과 관련된 표현형을 식별하는 데 도움이 될 수 있습니다. 또한 솔루션에 대한 명확한 경로를 제공합니다.시탕슈노화 방지, 항산화 및 면역력 향상에 중요한 역할을 하는 것으로 나타났습니다.

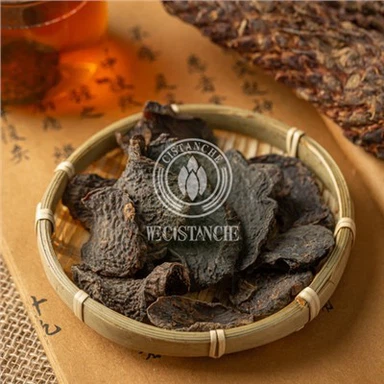
사진: Faw Cistanche
본 리뷰에서는 공공 데이터베이스 및 사내 수동 관리를 사용하여 두 무척추동물(Caenorhabditis elegans 및 ogaster melanogaster)과 두 포유류(생쥐 및 인간)에서 면역 및 노화에 영향을 미치는 것으로 알려진 유전자원을 수집했습니다. 그런 다음 인간의 직접적인 상동성을 기반으로 이들 종 중에서 보존된 유전자를 식별하고 핵심 면역 노화 경로와 연관시킵니다. 동시에 제어 변수 방법을 적용하여 역할을 탐색합니다.담배노화방지, 항산화, 면역력 향상에 마지막으로, 우리는 노화와 면역 사이의 복잡한 관계를 더 이해하고 해결하는 데 필요한 열린 질문과 실험을 간략하게 설명합니다.
IIS/TOR 네트워크는 노화 및 면역의 주요 조절기입니다.
영양에 민감한 IIS/TOR 신호 네트워크는 노화와 수명의 가장 잘 알려진 분자 결정 요인 중 하나입니다. 유전적 또는 영양적 개입을 통한 IIS 및/또는 TOR 신호의 활동 감소는 오랫동안 효모, 선충류, 곤충 및 포유류의 수명을 연장하는 것으로 나타났습니다.
벌레와 유사하게 D. melanogaster에서 인슐린 수용체 기질 유전자인 치코의 기능 상실을 통한 인슐린 신호의 하향 조절은 수명 연장과 병원성 박테리아에 대한 저항성 증가에 기여하지만 그 효과는 병원체 또는 사용된 치코 널 대립유전자에 따라 다릅니다. 놀랍게도, 치코 돌연변이체의 AMP 발현은 일반적으로 야생형 파리의 발현과 동일하거나 감소했으며, 이는 잠재적 면역과 달성된 면역 사이의 불일치를 나타냅니다. 또한 벌레와 유사하게 폭소 발현 감소는 amp가 동시에 하향 조절되기 때문에 감염 후 생존에 잠재적으로 부정적인 영향을 미칩니다.
MAPK 경로는 노화와 면역에 다양하게 영향을 미칩니다.
IIS/TOR 네트워크와 같은 ERK MAPK 경로는 증식 및 세포 과정의 중앙 조절자입니다. 따라서 그것의 활성화는 장수와 면역력을 희생시키면서 성장에 대한 자원 할당을 규제할 수 있습니다. 이러한 예상과는 달리 ERKMAPK 경로는 벌레의 수명과 면역성을 촉진하는 것으로 보입니다. ERk-MapK 활동의 손실은 C. elegans의 수명 단축으로 이어지는 것으로 나타났으며, ERK MAPK를 따라 여러 유전자 캐스케이드가 박테리아 병원체에 대한 방어를 촉진하는 것으로 나타났습니다. 흥미롭게도 이것은 C. elegans에서 ERK MAPK 경로의 활성화가 영양소의 존재 하에서 수명과 면역에 대한 IIS/TOR 신호의 해로운 영향을 길항할 수 있음을 시사합니다.담배발췌.
벌레에서 ERK MAPK 활성화는 초파리의 수명을 상당히 단축시키고 IMD/Nf-κB 면역 경로를 억제하여 세균 감염 후 생존을 감소시키는 것으로 밝혀졌습니다. 그러나 이 경로에 의해 부여되는 면역 조절은 병원균에 따라 달라질 수 있습니다.

사진: Cistanches 혜택
Nf-κB 신호는 면역과 노화 사이의 트레이드 오프를 중재합니다.
위의 면역 노화 경로는 D. melanogaster와 C. elegans 사이에 보존되어 있지만 초파리와 포유류에서 선충에 없는 면역 신호 전달의 중심 부분은 Nf-κB 전사 인자입니다. Nf-κB 신호는 선천성 및 적응성 면역에서 중심적인 역할을 하며 여러 면역 수용체의 활성화에 반응하여 병원성 감염 중에 유발됩니다. 하류에서는 전 염증 유전자, 항균 펩타이드의 발현을 유도하고 면역 세포의 활성화, 분화 및 생존을 조절합니다. 그러나 Nf-κB 신호가 노화와 장수에 미치는 영향은 불분명합니다. Droflies에서 두 개의 면역자극 패턴 인식 수용체인 Toll 및 IMD의 상류 세포내 PGRP-LE 및 막횡단 PGRP-LC의 과발현은 염증 상태를 유발하고 수명에 악영향을 미칩니다. 이에 따라 면역 억제성 PGRP 유전자의 유전자 조작은 면역 체계 활성화가 장수에 도움이 되지 않는다는 것을 의미합니다. 예상대로 IMD 및 Toll 경로 활성은 전반적인 수명에 해롭지만 부분적으로는 조직, 성별, 장내 미생물 및 유전적 개입 유형에 따라 달라질 수 있습니다. 수명에 미치는 영향은 수명에 미치는 영향에 대한 일부 연구 특이성과 함께 수명을 촉진하고 억제하는 역할을 할 수 있는 다운스트림 앰프의 표현에 따라 달라질 수 있습니다. 따라서 노화와 관련된 면역 체계 활동의 증가는 유해한 요소가 유익한 요소를 능가하기 때문에 장수에 해로울 수 있습니다. 동시에 제어 변수 방법을 사용하여 쥐가 먹는 것을 보여주었습니다.담배추출물은 항산화, 항노화 및 자가면역에 상당한 영향을 미쳤다.
초파리의 발견과 일치하여 포유류에서 Nf-κB 신호 전달 경로가 수명 단축을 희생시키면서 전 염증 반응을 자극하고 여러 연령 관련 병리와 관련이 있다는 증거가 증가하고 있습니다. 사실, 수명이 긴 왜소한 생쥐는 신경 및 기타 조직에서 염증 표지자 수준이 감소했으며, 이는 JNK 및 Nf-κB 활동 감소에 기인할 수 있으며, 이 생쥐가 나이가 들면서 만성 염증 발생률이 낮아졌다는 것을 추가로 확인했습니다. 따라서 Nf-κB 활성은 병원체 저항성과 염증에 필요하지만 일반적으로 초파리와 포유류의 수명에 해로우며 면역과 노화 사이의 보수적 균형을 나타냅니다.시탕슈면역과 노화, 또는 두 세계의 장점 사이에 균형이 잘 잡혀 있습니다.

사진: cistanche의 효과는 면역력을 향상시킵니다.
결론
이 리뷰에서는 D. Melanogaster, C. elegans, 마우스 및 인간 간의 상동 유전자 대조 및 분석과 결합하여 면역, 장수 및 노화에서 여러 특성을 갖는 것으로 알려진 유전자가 면역을 매개하는 여러 핵심 경로에 존재함을 밝힙니다. 노화 상호 작용. 우리가 확인한 가장 보존된 면역 노화 경로 중 몇 가지는 역사적으로 신진대사와 장수 또는 면역에 역할을 하는 것으로 생각되어 왔다는 점에 유의하는 것이 중요합니다. 또한담배노화 방지에 중요한 의미가 있습니다. 다당류 및 D-만니톨은 SOD를 활성화하고 리포푸신 축적을 감소시킬 수 있는 반면, 페닐레이트의 총 배당체는 생체 내에서 SOD 활성 및 비장 계수를 증가시킬 수 있습니다. 그러나 우리는 이러한 경로가 서로 상호 작용할 뿐만 아니라 많은 다른 생리적 과정에서 병원체 저항성, 수명 및 노화를 가시적으로 조절한다는 점을 강조합니다.
우리의 검토는 면역 항상성의 손실이 다른 문에서 노화의 중심 결정 요인임을 시사합니다. 그러나 면역 노화 및 기타 연령 관련 특성의 감소가 노화의 원인인지 결과인지는 해결하기 어려운 근본적인 질문으로 남아 있습니다. 면역 및 노화와 관련된 변화가 언제 어디서 발생하는지 정확히 아는 것이 이 질문에 답하는 데 큰 도움이 될 것입니다. 또한 환경적 영향(평생 질병을 유발하는 문제, 마이크로바이옴의 변화 또는 영양 포함)이 노화와 관련된 면역 변화에 어떤 영향을 미치는지 명확하지 않습니다. 지금까지 대부분의 연구는 특히 분석 조직, 시점, 표현형 및 실험 조건 측면에서 해상도가 제한적이었습니다. 단일 세포 시퀀싱과 같은 최첨단 기술이 여기에 역할을 할 수 있으며 노화 및 감염 동안 특정 세포 유형의 분자 변화를 특성화하는 데 사용할 수 있습니다. 전체 게놈 CRISPR 녹아웃 스크리닝과 결합하여 새로운 면역노화 유전자를 발견할 수 있고 면역과 노화 사이의 혼선을 더 해독할 수 있습니다. 현재 노화의 인과적 미스터리를 해결하는 데 필요한 세부 수준은 인간에게 제공되지 않을 수 있지만담배추출물은 건강한 노화와 장수를 촉진하기 위해 노화에 대한 라이프 스타일 요소와 새로운 약물 요법을 최적화할 수 있는 잠재력을 가지고 있습니다.

참조
1. Lozano-Durán R, Zipfel C. 성장과 면역 사이의 균형: 브라시노스테로이드의 역할. 동향 식물 과학. 2015;20(1):12–9.
2. Schwenke RA, Lazzaro BP, Wolfner MF. 곤충의 번식-면역 절충. Annu Rev Entomol. 2016;61:239–56.
3. Lochmiller RL, Deerenberg C. 진화 면역학의 절충: 면역 비용은 얼마입니까? 오이코스. 2000;88(1):87–98.
4. 에프로스 RB. Roy Walford와 면역학적 노화 이론. 면역 노화. 2005;2:7.
5. 사디기 아카 AA. 노화와 면역 체계: 개요. J 면역 방법. 2018;463:21–6.
6. Ventura MT, Casciaro M, Gangemi S, Buquicchio R. 면역 노화: 면역 세포 고갈과 사이토카인 상향 조절 사이. 클린 몰 알레르기. 2017;15:21.
7. Watad A, Bragazzi NL, Adawi M, Amital H, Toubi E, Porat BS 등. 노인의 자가면역: 기본 과학 및 클리닉의 통찰력 - 미니 리뷰. 노인학. 2017;63:515–23.
8. 법률 TR, Harding SV, Smith MP, Atkins TP, Titball RW. 나이는 병원성 박테리아에 의한 살상에 대한 Caenorhabditis elegans의 저항성에 영향을 미칩니다. FEMS Microbiol Lett. 2004;234(2):281–7.
9. Youngman MJ, Rogers ZN, Kim DH. p38 MAPK 신호의 감소는 예쁜꼬마선충의 면역노화의 기초가 됩니다. 플로스 제넷. 2011; 7(5):e1002082.
10. Ramsden S, Cheung YY, Seroude L. 노화 동안 Drosophila 면역 반응의 기능적 분석. 노화세포. 2008;7(2):225–36. https://도이.org/10.1111/j.1474-9726.2008.00370.x.
11. 쿠비악 M, 틴슬리 MC. Drosophila melanogaster에서 면역 노화에 성별 특정 경로. Sci Rep. 2017;7(1):10417.
12. Darby SC, Ewart DW, Giangrande PLF, Spooner RJD, Rizza CR. 영국 혈우병 인구에서 AIDS의 생존과 발달을 위한 HIV-1 감염 연령의 중요성. 랜싯. 1996;347(9015):1573–9.
13. Starr ME, Steele AM, Saito M, Hacker BJ, Evers BM, Saito H 등 패혈증의 동물 모델에 대한 장기 재현성이 개선된 새로운 맹장 슬러리 준비 프로토콜. 플로스 원. 2014;9(12):e115705.
14. Xin L, Jiang TT, Kinder JM, Ertelt JM, Way SS. 가속된 노화 Lmna(Dhe) 마우스에서 복제된 노화에 따른 감염 감수성과 면역 노화. 노화세포. 2015;14(6):1122–6.
15. Seroude L, Brummel T, Kapahi P, Benzer S. Drosophila melanogaster의 노화 동안 유전자 발현의 시공간 분석. 노화세포. 2002;1(1):47–56.
16. Pletcher SD, Macdonald SJ, Marguerie R, Certa U, Stearns SC, Goldstein DB 등 노화 및 칼로리 제한 Drosophila melanogaster의 게놈 전체 전사 프로파일. Curr Biol. 2002;12(9):712–23.
17. Lee CK, Weindruch R, Prolla TA. 생쥐에서 노화된 뇌의 유전자 발현 프로파일. 냇 제넷. 2000;25(3):294–7.
18. Park SK, Kim K, Page GP, Allison DB, Weindruch R, Prolla TA. 여러 마우스 계통의 노화에 대한 유전자 발현 프로파일링: 노화 바이오마커 식별 및 식이 항산화제의 영향. 노화세포. 2009;8(4): 484–95. https://doi.org/10.1111/j.1474-9726.2009.00496.x.
19. Jia K, Cui C, Gao Y, Zhou Y, Cui Q. 유전자형 조직 발현 프로젝트(GTEx)에서 파생된 노화 관련 유전자 분석. 세포 사멸 발견 2018;4:26.
20. Horn L, Leips J, Starz-Gaiano M. 성인 Drosophila hemocytes에서 식세포 능력은 나이가 들면서 감소합니다. 노화세포. 2014;13:719–28.
21. Kannarkat GT, 보스 JM, Tansey MG. 파킨슨병에서 선천면역과 적응면역의 역할. J 파킨슨 디스. 2013;3(4):493–514.
22. Isobe K, Nishio N, Hasegawa T. 노화 관련 질병의 면역학적 측면. World J Biol Chem. 2017;8(2):129–37.
23. Heppner FL, Ransohoff RM, Becher B. 면역 공격: 알츠하이머병에서 염증의 역할. Nat Rev Neurosci. 2015;16(6):358–72.
24. Franceschi C, Garagnani P, Parini P, Giuliani C, Santoro A. 염증: 노화 관련 질병에 대한 새로운 면역 대사 관점. Nat 레브 엔도크리놀. 2018;14(10):576–90. https://doi.org/10.1038/s41574-018-0059-4.