Cistanche Tubulosa 유래 자당 합성효소의 유전자 클로닝, 기능 식별, 구조 및 발현 분석
Sep 06, 2024
추상적인:자당 합성효소는 다양한 대사 과정에서 생리활성 글리코실 공여체 역할을 하는 우리딘 이인산(UDP)-포도당의 생산을 촉매함으로써 식물의 당 대사 경로에서 중요한 역할을 합니다. 이 연구에서는 CtSus라는 자당 합성효소 유전자가 복제되었습니다.시스탄체 튜불로사, 풍부한 것으로 알려진 전통 중국 의학다양한 배당체 함량, 전사체 분석 결과를 기반으로 합니다. CtSus의 개방형 판독 프레임은 805개의 아미노산을 인코딩하는 2 418bp 길이였습니다. 서열 분석을 통해 CtSus 단백질의 N-말단 및 C-말단 영역 모두에서 식물 수크로스 신타제 계열과 연관된 보존된 도메인이 밝혀졌습니다. 계통발생 분석에 따르면 CtSus는 다음과 밀접한 진화 관계를 공유합니다.자당 합성효소같은 목(order) 내의 다른 식물로부터. CtSus의 기능적 식별은 특성화된 글리코실트랜스퍼라제 효소인 UGT71BD1과의 전체 세포 촉매작용 커플링을 통해 수행되었습니다. 결과는 CtSus의 도입이 UGT71BD1에 의해 촉매되는 글리코실화의 전환율을 크게 향상시켰다는 것을 보여주었습니다. Escherichia coli에서 CtSus의 가용성 발현은 pCold™ TF 발현 벡터를 사용하여 추가로 달성되었습니다. 시험관 내 효소 분석은 자당과 UDP의 존재 하에서 UDP-포도당의 형성을 촉매하는 CtSus의 활성을 나타냅니다. 실시간 정량적 중합효소연쇄반응 결과, C. tubeulosa의 서로 다른 부분에서 CtSus 유전자의 발현 패턴과 가뭄 스트레스 하에서 C. tubeulosa의 현탁 세포 배양이 각각 페닐에탄올 배당체에서 관찰된 축적 패턴과 상관관계가 있음을 보여주었습니다. 또한, 단백질 구조 예측과 분자 도킹 결과를 바탕으로 주요 아미노산과 효소와 기질 사이의 상호 작용을 탐구했습니다. 전반적으로, 우리의 연구 결과는 C. tubeulosa에서 글리코시드 생성물의 생합성 동안 활성 글리코실 공여체 UDP-글루코스의 공급을 담당하는 수크로스 합성효소 CtSus를 확인하고 또한 글리코시드 생성물 생산을 위한 엔지니어링 균주 구성에 활용될 수 있는 유전자 요소를 제공했습니다.
핵심 단어: 시스탄체 튜불로사; 자당 합성효소; 배당체; UDP-포도당; 효소 촉매작용

DICHEN CISTANCHE, 위티안(YUTIAN), 호탄(HOTAN), 신장(XINJIANG)에 기지를 건설하다
Wecistanche의 지원 서비스 - 중국 최대의 cistanche 수출업체:
이메일:wallence.suen@wecistanche.com
Whatsapp/전화:+86 15292862950
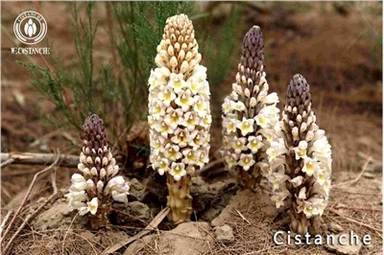
Cistanche tubeulosa (Schenk) R. 와이트Orobanchaceae과 Cistanche 속의 다년생 초본 기생 식물입니다. 신장과 내몽골이 원산지인 희귀하고 귀한 한약재입니다. 성질은 달고 짠맛이 있으며 따뜻한 성질을 가지고 있다.신장양토닝, 에센스와 혈액에 유익한, 장을 촉촉하게 하고변비 완화. "로 알려져 있습니다.사막 인삼" [1]. 현대 연구에 따르면시스탄체 튜불로사포함다양한 화학성분~와 같은페닐에타노이드 배당체, 이리도이드 에테르 테르펜및 그 배당체, 리그난 및 그 배당체, 올리고당 에스테르, 다당류, 폴리올, 올리고당, 스테롤 및 그 배당체, 모노테르페노이드 배당체, 설탕, 아미노산 및 휘발성 오일 [2,3], 특히 배당체 화합물이 가장 중요한 활성 성분입니다. 그 중 페닐에타노이드 배당체 화합물은 원의약물질 중 함량이 가장 높으며 신경보호, 항노화 등 광범위한 약리활성을 갖고 있다[4]. 위에서 언급한 글리코시드 화합물의 생합성에는 다음과 같이 촉매되는 여러 단계의 글리코실화 반응이 포함됩니다.식물의 글리코실트랜스퍼라제, 그리고활성 글리코실 공여체 제공이 과정에서 필수적입니다. 유기체의 일반적인 활성 당 기증자에는 우리딘 이인산(UDP), 티미딘 이인산(TDP) 및 구아노신 이인산(GDP)이 포함됩니다. 그중 UDP-포도당은 식물에서 가장 흔한 활성 글리코실 공여체입니다. 이는 글루코실전이효소에 의해 직접 인식되어 글루코실 전달 반응을 촉매할 수 있을 뿐만 아니라 다른 유형의 글리코실 공여체 합성에 참여하는 전구체로 사용될 수도 있습니다. 예를 들어, UDP-포도당은 4,6-dehydratase, 3,5-isomerase 및 4-reductase[5]의 촉매작용 하에서 UDP-rhamnose를 생성하는 기질로 사용될 수 있습니다. UDP-글루코스는 UDP-글루코스 탈수소효소 및 UDP-자일로스 합성효소를 통해 UDP-자일로스 합성을 촉매하는 기질로 사용될 수 있습니다. UDP-자일로스는 UDP-자일로스 에피머라제에 의해 추가로 촉매되어 UDP-아라비노스를 생성할 수 있습니다[6]. UDP-포도당과 UDP-갈락토스는 부분입체이성질체이며 에피머라제를 통해 서로 전환될 수 있습니다[7,8]. 따라서 UDP-글루코스의 합성은 식물의 활성 글리코실 공여체 공급과 2차 대사산물의 글리코실화 변형에 중요한 영향을 미칩니다.
식물에서 UDP-글루코스의 합성은 합성효소 경로, 포스포릴라제 경로 및 키나제 경로를 통해 달성될 수 있습니다. 그 중 수크로스 합성효소는 UDP와 수크로스 사이의 반응을 직접적으로 촉매하여 UDP-포도당과 과당을 생성할 수 있을 뿐만 아니라 역반응도 가능하다[9]. 넓은 의미에서, 수크로스 합성효소는 글리코실전이효소-4 서브패밀리에 속하며, 여기에는 수크로스 합성 포스파타제, 트레할로스 합성효소 및 트레할로스 포스포릴라제와 같은 다양한 글리코실전이효소가 포함됩니다[10]. 자당 합성효소는 밀 배아에서 처음으로 확인되었습니다[11]. 그 이후로 연구자들은 녹두(Vigna radiata), 쌀(Oryza sativa), 옥수수(Zea mays), 대두(Glycine max) 및 복숭아(Amygdalus persica)와 같은 다양한 식물에서 수백 개의 자당 합성 효소 유전자를 확인했습니다. 이들은 자당 수송 및 분포, 전분 합성, 셀룰로오스 합성 및 세포벽 구성, 생물적 및 비생물적 스트레스 등을 포함하여 식물의 다양한 대사 과정에 관여하며 식물 탄소원 할당에서 중요한 조절 역할을 합니다. 또한, 생리학적 기능 연구를 바탕으로 연구자들은 획득한 자당 합성효소를 배당체 화합물의 효소적 합성을 위한 유전자 요소로 사용하여 이상적인 결과를 얻었습니다. 예를 들어, Masada et al. [13] Arabidopsis thaliana의 수크로스 합성 효소 유전자 AtSus-1와 Catharanthus roseus의 글리코실트랜스퍼라제 유전자 CaUGT2를 시험관 내에서 공동 발현했으며 원포트 이중 효소 시스템을 사용하여 커큐민의 글리코실화 반응을 촉매했습니다. 커큐민배당체 생산량이 7배 증가합니다. 동시에, 사용된 UDP-포도당 기증자의 양은 초기 양의 10분의 1에 불과했습니다.
Bungaruanget al. [14]는 대두의 자당 합성효소 GmSuSy와 쌀의 글리코실전이효소 OsUGT를 사용하여 결합 촉매 시스템을 구축했습니다. 그들은 단지 소량의 UDP(1.0 mmol·L-1)와 수크로스를 첨가함으로써 노토파긴의 글리코실화 변형을 달성했습니다. OsUGT의 단일 효소 촉매작용과 비교하여 글리코실화 생성물의 생산은 μmol·L-1에서 mol·L-1로 3배 증가했습니다.
Cistanche tubeulosa에 있는 글리코시드 화합물의 풍부함과 다양성은 2차 대사산물의 글리코실화 변형과 관련된 강력한 자당 합성효소를 함유해야 함을 시사하지만, 이 효소는 Cistanche 속의 식물에서는 보고된 바가 없습니다. 본 논문에서는 약전에 수록된 약재인 Cistanche tubeulosa를 재료로 사용하였다. 전사체 분석과 다양한 부분의 비교 전사체 분석을 통해 분자생물학 기술을 사용하여 자당 합성효소 유전자 CtSus를 채굴하고 식별했습니다. CtSus의 기능과 CtSus의 상관관계를 조사하기 위해 생물정보학 분석, 전세포 생물변환, 원핵세포 발현 및 정제, 시험관 내 효소 촉매 활성 분석, Cistanche tubeulosa 및 식물 조직 배양 시스템의 여러 부분에서의 유전자 발현 분석을 수행했습니다. Cistanche tubeulosa에서 배당체 화합물의 생합성은 Cistanche tubeulosa에서 배당체 화합물의 생합성 경로 연구의 기초를 마련합니다.
재료 및 방법
재료 신선한 Cistanche tubeulosa 식물은 중국 신강의 Hotan City에서 수집되었으며 Peking University의 Tu Pengfei 교수가 생물학적 식별을 수행했습니다. Cistanche tubeulosa 현탁 세포 배양 시스템은 우리 연구 그룹에 의해 초기 단계에 확립되었습니다[15]. E. coliFast-T1은 Nanjing Novozymes Biotech Co., Ltd.에서 구입했습니다. E. coli BL21(DE3)은 Beijing Quanshijin Biotechnology Co., Ltd.에서 구입했습니다. pCold™ I 및 pCold™ TF 벡터는 Bio-Tech (Beijing) Co., Ltd.에서 구입했습니다. UDP-글루코스 대조군은 Xi'an Qiyue Biotechnology Co., Ltd.에서 구입하였고, aesculin 및 resveratrol 기질은 Shanghai Yuanye Biotechnology Co., Ltd.에서 구입했습니다.

DICHEN CISTANCHE, 신장 허탄에 기지를 건설하다
RNA 추출 및 cDNA 합성 OMEGA RNA Plant Kit(Cat R6827-01, Omega Bio-Tek)의 지침에 따라 RNA를 추출했습니다. Agarose gel 전기영동과 Nanodrop 2000 분광광도계를 사용하여 RNA의 순도, 농도 및 무결성을 감지했습니다. 적격 RNA 샘플을 역전사 키트 TransScript® OneStep gDNA Removal 및 cDNA Synesis SuperMix(Cat AT311-02, Beijing Quanshijin Biotechnology Co., Ltd.)를 사용하여 역전사하여 cDNA의 첫 번째 사슬을 합성했습니다.
수크로스 합성효소 유전자 채굴 및 CtSus 유전자 클로닝 기능적으로 확인된 Arabidopsis thaliana 수크로스 합성효소 AtSus1(GenBank 접근 번호: AED92894.1)[16]의 아미노산 서열을 주형으로 사용했습니다. 수크로스 합성효소 유전자는 전사체 유전자 주석, FPKM(유전자 발현 풍부도) 분석 및 비교 전사체 데이터 분석과 결합된 국소 Blastp 서열 정렬을 통해 C. tubeulosa의 전사체 데이터로부터 스크리닝되었습니다. C. tubeulosa의 2세대 전사체 데이터가 제공하는 후보 유전자 서열 정보를 기반으로 특정 프라이머를 설계했습니다(표 1). C. tubeulosa cDNA를 주형으로 사용하였고, high-fidelity PCR 효소(Cat P505-d1, Nanjing Novozymes Biotech Co., Ltd.)를 사용하여 목적 유전자의 PCR 증폭을 수행하였다. PCR 증폭산물은 FastPure Gel DNA Extraction Mini Kit(Cat DC201-01, Nanjing Novozymes Biotech Co., Ltd.)를 사용하여 정제한 후 fast cloning kit(Cat C112-01)에 따라 클로닝하였다. Nanjing Novogene Biotech Co., Ltd.)를 작동 지침에 따라 pCE2 TA/Blunt-Zero 클로닝 벡터에 연결하고 Fast-T1 수용 세포에 옮겨 37도에서 밤새 배양했습니다. 플라스미드를 추출하여 서열 식별을 위해 Beijing Liuhe BGI Genomics Co., Ltd.에 제출했습니다.
풀 사이즈 테이블 qPCR: 실시간 정량적 중합효소연쇄 반응

Cistanche tubeulosa의 자당 합성효소 CtSus의 생물정보학 분석
온라인 소프트웨어 ProtParam(https://web.expasy.org/protparam/)을 사용하여 단백질의 물리화학적 특성을 분석했습니다. 온라인 소프트웨어 TMHMM(https://services.healthtech.dtu.dk/services/TMHMM{{0}}.0/)을 사용하여 단백질의 막횡단 구조를 예측했습니다. 온라인 소프트웨어 SOPMA(https://npsa-rabi.ibcp.fr/cgi-bin/npsa_automat.pl?page=npsa_sopma.html)를 사용하여 단백질의 2차 구조를 예측하고; 온라인 소프트웨어 SMART(http://smart.embl.de/)를 사용하여 단백질 아미노산 서열의 보존된 도메인을 예측했습니다. 소프트웨어 DANMAN을 사용하여 CtSus의 아미노산 서열을 다른 종의 자당 합성효소의 아미노산 서열과 비교했습니다. 계통수는 MEGA11 소프트웨어를 사용하여 이웃 결합 방법을 사용하여 군집 분석을 수행하고 부트스트랩 반복을 1,000회 수행하여 구축했습니다.
Cistanche tubeulosa의 여러 부분과 가뭄 스트레스 하에서 CtSus의 발현 분석
CtSus 및 내부 참조 유전자 DNAj에 대한 실시간 형광 정량 PCR 프라이머는 DNAMAN 소프트웨어를 사용하여 설계되었습니다[17](표 1). Cistanche tubeulosa의 여러 부분과 가뭄 스트레스 하에서 Cistanche tubeulosa의 현탁 세포에서 CtSus 유전자의 상대적 발현 수준을 실시간 형광 정량 PCR로 분석했습니다. 실시간 형광 정량 PCR 분석은 TransStart® Top Green qPCR SuperMix Kit(Cat AQ131-01, Beijing Quanshijin Biotechnology Co., Ltd.)를 사용하여 수행되었습니다. 증폭 프로그램은 2단계 방법을 채택했습니다: 30초 동안 94도; 5초 동안 94도, 30초 동안 60도, 40주기 동안 반복; 이는 Bio-Rad CFX Connect™ 실시간 PCR 검출 시스템(Bio-Rad Laboratory, Hercules, CA, USA)에서 실행되었습니다. 2-ΔΔCT 방법은 다양한 실험 그룹에서 CtSus 유전자의 상대적 발현을 분석하는 데 사용되었습니다. GraphPadPrism 9는 유의성 분석과 막대 그래프 그리기에 사용되었습니다.
원핵 발현 벡터의 구축 및 CtSus 유전자의 이종 발현 유전자 시퀀싱 결과를 바탕으로 PCR 증폭을 위해 벡터 상동성 암과 제한 부위(표 1)를 포함하는 특정 프라이머를 설계했습니다. ClonExpress Ultra One Step Cloning Kit(CatC115-01)를 사용하여 심리스 클로닝 기술을 사용하여 표적 유전자 CtSus를 pET-28a, pET-24b, pCold™ I 및 pCold™ TF 발현 벡터로 구축했습니다. , Nanjing Novogene Biotech Co., Ltd.). 성공적으로 구축된 재조합 발현 벡터의 플라스미드를 추출하고 대장균 발현 능력 세포인 Transetta(DE3)에 형질전환시켰습니다. 세포를 50 µg·mL-1 카나마이신 설페이트(발현 벡터로 pET-28a 및 pET-24b 포함) 또는 1{{ 22}}0 µg·mL-1 암피실린(발현 벡터로 pCold™ I 및 pCold™ TF 사용) 및 50 ug·mL-1 클로람페니콜(각각 37도 및 200 r·min에서){{ 15}} 박테리아 용액의 A600 값이 0에 도달할 때까지 흔들면서.4-0.6. 단백질 발현을 유도하기 위해 0.5 mmol·L-1의 최종 농도로 이소프로필-베타-D티오갈락토피라노시드(IPTG)를 추가합니다. 23도(발현 벡터로 pET{26}}a 및 pET-24b 사용) 또는 15도(발현 벡터로 pCold™ I 및 pCold™ TF 사용), 180도의 항온 진탕기에서 배양합니다. min-1 16시간(발현 벡터로 pET28a 및 pET{33}}b 사용) 또는 24시간(발현 벡터로 pCold™ I 및 pCold™ TF 사용) 동안 원심분리하여 박테리아를 수집합니다.
용해 완충액(20 mmol·L-1 NaH2PO4-Na2HPO4, 0.5 mol·L-1 NaCl, 20 mmol·L{{10} } 이미다졸, 3% 글리세롤, 100 mmol·L-1 페닐메틸설포닐 플루오라이드, 1 mg·mL-1 라이소자임, pH 7.4)을 첨가하고 세포를 8분간 파쇄한 후 원심분리하였다. 상층액과 침전물을 각각 취하였다. 상청액을 Ni Sepharose 6 Fast Flow Filler가 충진된 HisTrap FF Afaffinity 컬럼(Cat 17531901, Cytiva)에 흡착시켜 His 태그가 포함된 목적 단백질을 흡착시켰다. 다양한 농도의 이미다졸로 용출시킨 후, 각 분획을 SDS-PAGE(나트륨 도데실 설페이트-폴리아크릴아미드 겔 전기영동) 검출을 위해 채취했습니다. 목적 단백질이 포함된 분획물을 모아 원심분리로 농축한 후 한외여과관(Millipore)으로 탈염시킨 후 완충액[50 mmol·L-1 Tris-HCl(pH 7.5) 함유, 0.2 mol·L{{ 30}}NaCl, 1 mmol·L-1 디티오트레이톨, 3% 글리세롤] 후속 시험관 내 효소 촉매 반응을 위한 것입니다.
CtSus 전세포 촉매작용 앞서 연구그룹에서 규명한 pCold™ I-CtSus 플라스미드와 글리코실트랜스퍼라제 UGT71BD1의 발현 플라스미드 pET-28a-UGT71BD1[18]을 동시에 발현 능력이 있는 플라스미드로 전환시켰다. 대장균 트란세타(DE3). CtSus 및 UGT71BD1 유전자를 모두 함유하는 양성 재조합 세균을 선별하여 50 ug·mL-1 황산 카나마이신, 100 ug를 함유하는 LB 배지(성장배지)에 접종하였다. ·mL-1 암피실린 및 50 ug·mL-1 클로람페니콜을 1:100(V/V) 비율로. 박테리아 용액의 A600 값이 0.4-0.6이 될 때까지 37도에서 배양한 후 최종 농도가 1 mmol·L-1이 되도록 IPTG를 첨가하였다. 배양은 15도, 180r·min-1에서 24시간 동안 계속되었다. 배양물을 4도, 4 000r·min-1에서 원심분리했습니다. 세포를 수집합니다. 채취한 세포를 세균 1g당 배양배지 40mL의 비율로 M9배지(발효배지)에 접종하고, 75μmol·L-1자당과 25μmol·L-1아에스쿨레틴(1)을 첨가한다. 또는 레스베라트롤(2) 기질을 반응 그룹에 추가합니다. 24시간 동안 계속 진탕 배양하고, 4000×g, 4도에서 30분 동안 원심분리하고, 메탄올을 첨가하여 초음파로 침전물을 깨뜨린 다음, 상층액에 2배 부피의 메탄올을 첨가하고, 4000×g, 4도에서 30분 동안 원심분리하고, 상청액을 취하여 결합하고, 용매를 감압 하에서 증발시키고, 메탄올에 다시 용해시키고, 0.22μm 필터막을 통해 여과하고, Agilent 1260 고성능 액체 크로마토그래피를 사용하여 반응 생성물을 검출합니다. CAPCELL PAK C18 COLUMN(250mm×4.6mm, 5μm)을 분석컬럼으로 사용하였고, 이동상으로 0.1% 포름산수(A)와 메탄올(B)을 사용하였으며, 용출구배는 다음과 같았다. }}분, 30%-90% B; 25-27분, 90%-100% B; 27-33분, 100% B. 질량 분석 매개변수는 양이온 및 음이온 모드와 자동 다단계 MS1, MS2 및 MS3 전체 스캔이었습니다.

CtSus in vitro 효소 촉매 활성 검출 상기 HisTrap FF 컬럼 친화성 크로마토그래피를 통해 얻은 재조합 단백질에 Xa 인자를 이용하여 말단 태그 제거를 실시하였다. 효소 소화 시스템은 다음과 같았다: 재조합 단백질을 1 mg·mL-1의 농도로 조정하고, 20mmol·L-1 트리스-HCl(pH 8.0), 100mmol·L-1 NaCl 및 2mmol·L-1
CaCl2 23도에서 6시간 동안. 반응 시스템은 100 μL이었습니다. 효소 소화 시스템의 생성물은 HisTrap FF 친화성 크로마토그래피에 의해 2차 단백질 분리를 거쳐 후속 시험관 내 효소 촉매 반응을 위한 태그 제거와 함께 표적 단백질을 얻었습니다. 효소 반응계는 다음과 같다: 10mmol·L-1 UDP, 100mmol·L-1 수크로스, 50mmol·L-1 MgCl2, 60ug CtSus 단백질, Tris-HCl(pH 7.0) 100 μL를 보충한 후 30도 수조에서 6시간 동안 반응시킨 후 후처리 방법과 HPLC 분석 방법을 참고문헌 [19]에 따라 수행하였다.
CtSus 단백질 AlphaFold2의 3차원 구조 예측 및 분자 도킹 분석은 CtSus 단백질의 3차원 구조를 예측하는 데 사용되었습니다[20]. AutoDock Tools 1.5.6 소프트웨어를 사용하여 리간드 분자를 수소화하고 충전했습니다. 기질 결합 포켓은 주형 단백질 AtSus1(PDBID 3S28)과의 정렬을 통해 얻어졌습니다. 공동 주위의 아미노산 잔기의 측쇄는 유연하게 설정되었습니다.
그리드 박스는 40 × 40 × 40 Å3으로 설정하였고, 그리드 간격은 0.375 Å로 설정하였습니다. 분자 도킹은 AutoDock Vina에서 수행되었습니다[21]. PyMOL 2.0 소프트웨어를 사용하여 가장 좋은 친화력(kcat·mol-1)으로 모델을 시각화했습니다.
).

통계 분석 GraphPad Prism 9를 통계 분석에 사용했습니다. 실험 데이터는 평균±표준편차로 표현되었다. 두 그룹 간의 비교에는 t 테스트를 사용했고, 여러 그룹 간의 비교에는 일원 분산 분석을 사용했습니다. P < 0.05일 때 그 차이는 통계적으로 유의한 것으로 간주되었습니다.