연산호 공생 미생물 Salinispora Arenicola로부터 세포 보호 및 노화 방지 효과를 나타내는 추출물의 분리 2부
Jul 31, 2023
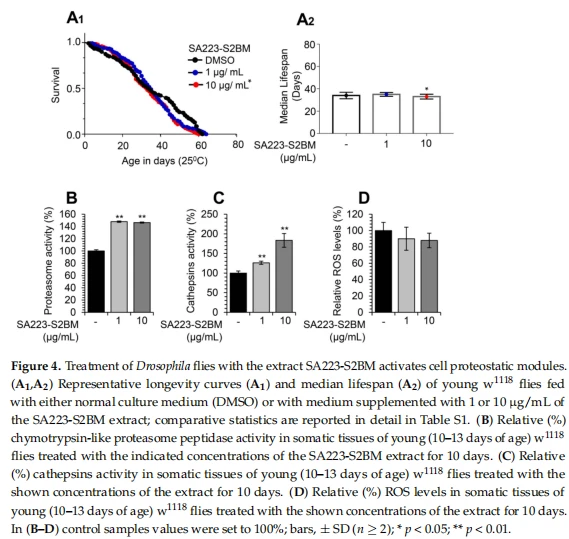
3.3. 추출물 SA223-S2BM으로 파리를 처리하면 세포 단백질 분해 모듈 활동이 유도됩니다.
세포 기반 분석에서 SA223-S2BM 추출물의 관찰된 생체 활성을 고려하여 모델 유기체 D. melanogaster, 특히 w1118 Drosophila 파리에서 proteostatic 모듈의 활성에 대한 생체 내 효과를 조사하고자 했습니다. w1118은 안구 색소침착 경로의 필수 유전자인 white 유전자에 null 돌연변이를 가지고 있는 형질전환 초파리 균주로, 편리한 유전적 형질전환을 위한 isogenic background를 가지고 있어 적절한 control로 자주 사용된다. 우리는 추출물이 1 μg/mL의 농도에서 파리의 최대 수명 또는 건강 수명에 영향을 미치지 않는 반면, 10 μg/mL의 농도에서 파리의 중간 수명을 약간 감소시키는 것을 발견했습니다(그림 4A1, A2).
Cistanche의 배당체는 또한 심장 및 간 조직에서 SOD의 활성을 증가시킬 수 있으며 각 조직에서 리포푸신 및 MDA의 함량을 크게 감소시켜 다양한 활성 산소 라디칼(OH-, H₂O₂ 등)을 효과적으로 제거하고 이로 인한 DNA 손상으로부터 보호합니다. OH-라디칼에 의해. Cistanche phenylethanoid glycosides는 자유 라디칼의 강력한 소거 능력, 비타민 C보다 높은 환원 능력, 정자 현탁액에서 SOD의 활동을 개선하고 MDA의 함량을 감소시키며 정자 막 기능에 대한 특정 보호 효과가 있습니다. Cistanche 다당류는 D-갈락토스에 의해 유발된 실험적으로 노화된 쥐의 적혈구 및 폐 조직에서 SOD 및 GSH-Px의 활성을 향상시킬 수 있을 뿐만 아니라 폐 및 혈장의 MDA 및 콜라겐 함량을 감소시키고 엘라스틴 함량을 증가시킬 수 있습니다. DPPH에 대한 우수한 소거 효과, 노화된 쥐의 저산소증 시간 연장, 혈청 내 SOD 활성 개선, 실험적으로 노화된 쥐의 폐의 생리학적 퇴행 지연 피부 노화 질환을 예방하고 치료하는 약물이 될 가능성이 있습니다. 동시에 Cistanche의 echinacoside는 DPPH 자유 라디칼을 제거하는 상당한 능력이 있으며 활성 산소 종을 제거하고 자유 라디칼로 인한 콜라겐 분해를 방지하는 능력이 있으며 티민 자유 라디칼 음이온 손상에 대한 우수한 복구 효과도 있습니다.
Cistanche가 산화 방지제를 위해 작동합니까를 클릭하십시오.
【자세한 정보:george.deng@wecistanche.com / WhatApp:8613632399501】
그럼에도 불구하고, 인간 세포주에서의 우리의 연구 결과에 따르면 어린 w1118 초파리에 추출물을 투여하면 프로테아좀 키모트립신 유사(그림 4B)와 리소좀 카텝신(그림 4C) 효소 활성이 증가했습니다. 또한, 도 4D에 도시된 바와 같이, 추출물은 파리의 조직 ROS 수준을 감소시키는 경향이 있었다.
3.4. 추출물 SA223-S2BM은 항멜라닌 생성 및 항엘라스타제 특성을 나타냅니다.
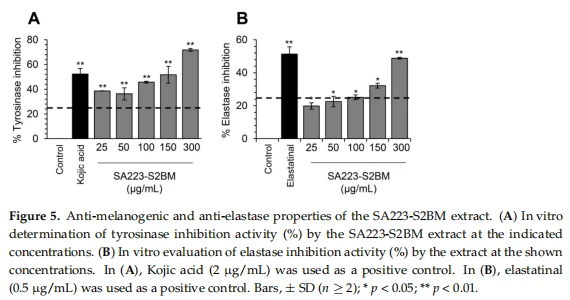
Tyrosinase와 elastase는 피부 노화와 관련된 주요 효소이며 이들의 억제제는 코스메슈티컬 산업에서 매우 중요합니다. 따라서 SA223-S2BM 추출물이 이들 효소의 활성에 영향을 미치는지 in vitro spectrophotometric assay를 통해 조사하였다. 흥미롭게도 우리는 추출물이 상업적으로 이용 가능한 티로시나아제 억제제 코직산과 유사한 용량 의존적 티로시나아제 억제 능력을 보여 상당한 항멜라닌 생성 특성을 발휘한다는 것을 발견했습니다(그림 5A). 우리는 또한 추출물이 알려진 엘라스타제 억제제, 즉 멜라스타틴(방선균에 의해 생성됨)과 비교하여 항-엘라스타제 활성을 나타내는 것을 관찰했습니다(그림 5B).
3.5. 추출물 SA223-S2BM을 사용한 인간 세포 배양은 항산화 반응을 활성화하고 산화 및 유전 독성 스트레스로부터 세포를 보호합니다.
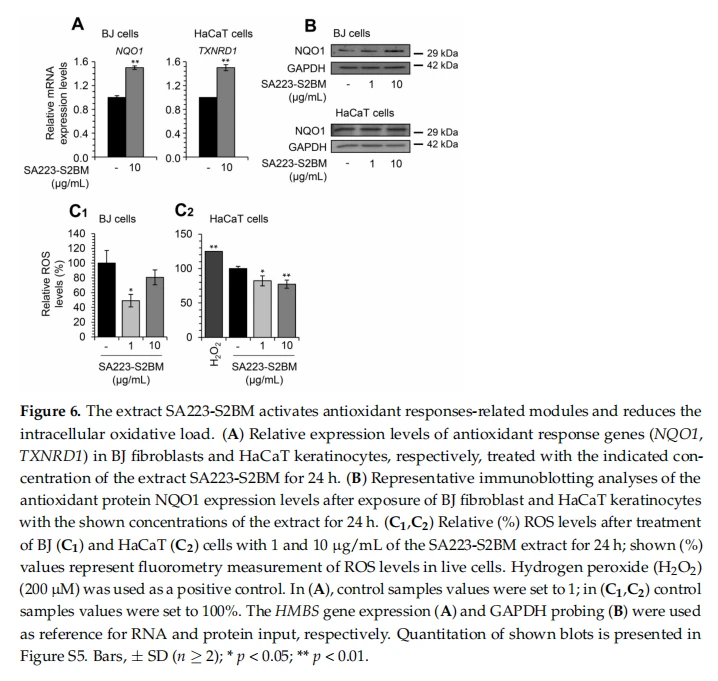
그런 다음 SA223-S2BM 추출물이 세포 항산화 모듈에 미치는 영향을 조사했습니다. 우리는 추출물과 함께 BJ 및 HaCaT 세포의 단기(24시간) 배양이 각각 NQO1 및 TXNRD1 유전자로 명명된 NRF2 전사 표적의 상향 조절을 초래한다는 것을 관찰했습니다(10 μg/mL의 농도에서)(그림 6A). 또한 면역블롯팅 분석을 통해 24시간 동안 추출물에 노출된 후 용량 의존적으로 BJ 세포와 HaCaT 세포의 NQO1 단백질 발현 수준이 10 μg/mL의 농도로 증가하는 것을 관찰했습니다(그림 6B).
또한 추출물이 세포 ROS 수준에 영향을 미치는지 조사하고자 했습니다. 세포를 24시간 동안 추출물로 처리하고 세포내 ROS 수준을 형광 측정법으로 평가했습니다. 그림 6C1 및 C2에서 볼 수 있듯이 추출물은 BJ 섬유아세포와 HaCaT 각질세포 모두에서 ROS 수준을 유의하게 감소시켰습니다.
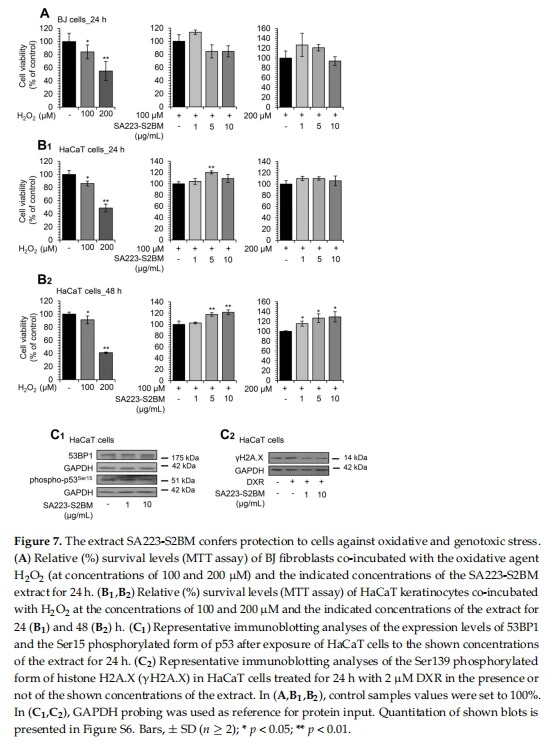
이어서 SA223-S2BM 추출물이 산화 스트레스 매개 독성에 대해 세포 보호 역할을 할 수 있는지 조사했습니다. 따라서, BJ 섬유아세포와 HaCaT 각질세포를 다양한 농도의 추출물과 산화제 H2O2와 함께 배양하고, 배양 24시간 또는 48시간 후에 생존율을 측정하였다. H2O2는 세포독성 효과가 있는 것으로 잘 알려져 있으며[51], 양성 대조군으로 사용되었습니다. BJ 세포를 24시간 배양한 후 추출물(1 μg/mL 농도)이 H2O2(100 μM)로 인한 독성으로부터 세포를 보호하는 경향이 있음을 관찰했습니다. 세포를 200 μM H2O2와 추출물(1 및 5 μg/mL)로 공동 처리한 후에도 유사한 결과가 나타났습니다(그림 7A). 이를 뒷받침하기 위해, 우리는 추출물이 24시간(그림 7B1) 및 48시간 배양 후(그림 7B2) H2O2(100 및 200 μM)의 연구된 농도로 인해 산화 스트레스 매개 독성으로부터 HaCaT 세포를 크게 구출했음을 발견했습니다. .
또한, 우리는 10 μg/mL의 농도에서 24시간 동안 추출물로 HaCaT 각질 세포를 처리하면 용량 의존적으로 Ser15에서 p53 인산화 수준뿐만 아니라 53BP1 단백질 발현 수준이 감소하는 것을 관찰했습니다(그림 7C1); 두 단백질 모두 DNA 손상 및 유전독성 스트레스의 마커입니다[52,53]. 유전 독성 스트레스에 대한 추출물의 보호 효과는 HaCaT 세포를 화학 요법 약물 독소루비신(DXR)과 함께 배양한 후 면역 블로팅 분석을 통해 확인되었습니다. 구체적으로, SA223-S2BM 추출물 및 2μM DXR과 함께 HaCaT 세포를 공동 배양하면 DXR 유도 H2A.X가 억제되어 용량 의존적으로 인산화 수준이 증가하는 것으로 나타났습니다(그림 7C2).
4. 토론
노화는 분자, 세포, 조직 및 유기체 수준에서 발생하는 손상의 축적 및 기능 상실과 관련된 과정으로, 질병 및 사망에 대한 취약성 증가와 관련이 있습니다[14]. 세포 노화는 다양한 손상 자극에 대한 반응으로 영구적이고 비가역적인 세포 주기 정지 상태이며, 무엇보다도 독특한 분비 기능, 거대분자 손상 및 변경된 대사가 특징입니다[54,55]. 노화 세포는 나이가 들어감에 따라 축적되어 노화 관련 병리의 발달에 기여합니다[56,57].
PN 구성 요소의 활성화가 노화 진행 속도를 늦출 수 있다는 것은 잘 알려져 있으며, 이는 이러한 모듈이 노화 및 연령 관련 병리에 대한 잠재적인 치료 목표가 될 수 있음을 나타냅니다[58,59]. 현재 연구에서 우리는 SA223-S2BM 추출물이 proteostasis 모듈 및 항산화 반응에 미치는 영향에 대한 세포 기반 및 생체 내 모델을 조사했습니다(Graphical Abstract 참조). 이 추출물은 Micromonosporaceae과에 속하는 의무 해양 방선균인 연산호의 공생 미생물인 S. arenicola에서 분리되었습니다[60]. 우리는 SA223-S2BM 추출물이 인간 세포와 Drosophila 파리 모두에서 proteostatic 모듈을 활성화한다는 것을 발견했습니다.
또한 SA223-S2BM 추출물은 항산화 모듈의 발현을 유도하고, 피부 섬유아세포 및 불멸화 케라티노사이트의 세포내 산화 부하를 감소시켰으며, 산화 및 유전독성 스트레스에 대한 보호를 부여했습니다. 세포 노화 및 생체 내 노화는 산화 스트레스 증가, 게놈 및 단백질 불안정성 증가, 세포 복구 메커니즘 및 단백질 분해 경로의 활성 감소로 특징지어집니다[14]. 따라서 이 추출물은 잠재적인 세포 보호 및/또는 노화 방지 특성을 가진 분자를 식별하기 위한 소스로 사용될 수 있습니다.
여러 연구에서 유전, 영양 및/또는 약리학적 개입을 통해 건강 수명과 수명이 각각 개선되고 연장될 수 있음이 나타났습니다[1]. 실제로 칼로리 제한은 산화 스트레스에 대한 저항성을 높이고, 거대 분자 손상을 줄이고, 다양한 모델 유기체의 수명을 늘립니다[61]. 그러나 유전적 개입이나 칼로리 제한이 인간에게 적용될 수 없기 때문에 잠재적으로 건강 및/또는 수명을 증가시킬 수 있는 NP(추출물 또는 분리된 화합물)의 식별에 많은 연구가 진행되었습니다. 이를 뒷받침하기 위해 식물, 해양 생물 및 미생물과 같은 다양한 출처에서 분리된 다양한 NPs가 in vitro 및 in vivo 모두에서 항노화 효과를 발휘하는 것으로 보고되었습니다[1,62].

현재까지 많은 해양 나노입자는 항종양, 항증식, 광보호 또는 항생제와 같은 광범위한 생물활성을 발휘하는 것으로 나타났습니다. 따라서 지난 몇 년 동안 해양 NP에서 약물 발견이 기반을 다졌습니다[63]. 실제로, 여러 해양 유래 약물이 이미 시장에 출시되었거나 임상 시험 중에 있습니다[31]. 극소수의 해양 NP가 PN 네트워크의 핵심 구성 요소를 조절하는 잠재력에 대해 연구되었으며 일부는 UPP를 직접 활성화하고 노화 방지 특성을 발휘하는 것으로 밝혀졌습니다. 예를 들어, 아스타잔틴은 거대조류, 미세조류, 갑각류와 같은 해양 생물에 존재하는 크산토필 카로티노이드(xanthophyll carotenoid)로 in vitro 및 in vivo 모두에서 항산화 활성이 있는 것으로 알려져 있으며, 확장되면서 노화 방지 특성을 발휘하는 것으로 밝혀졌습니다. C. elegans와 D. melanogaster의 수명 [64].
Tyrosinase와 elastase는 피부 악화와 관련된 두 가지 주요 효소이므로 이들의 활성을 억제하는 것이 피부 노화에 대한 유망한 보호 방법입니다[65]. 예를 들어 커큐민과 같은 식물에서 파생된 여러 NP는 이미 연구되었으며 이러한 효소의 활성을 효과적으로 억제하는 것으로 밝혀졌습니다[66]. 여기서 SA223-S2BM 추출물이 tyrosinase와 elastase 효소의 활성을 효율적으로 억제함을 확인하였다. 따라서 이 추출물은 코스메슈티컬 제품의 분리에 사용할 수 있습니다. 이를 뒷받침하기 위해 티로시나제 및 엘라스타제에 대한 활성으로 인해 많은 수의 해양 유래 분자가 코스메슈티컬 산업에서 이미 사용되고 있습니다[67,68].
노화 방지 활성을 발휘하는 가용 NP의 수가 매우 적기 때문에 [1] 해양 생태계와 같이 덜 탐사된 생태계에 대한 추가 조사가 필요합니다. 해양 환경은 거대한 생물 다양성을 포함하는 독특한 자원을 나타냅니다[30]. 가혹한 화학적 및 물리적 조건은 다양한 질병에 대한 약물 개발에 영감을 주는 유망한 템플릿 역할을 하는 구조적으로 고유한 기능을 가진 광범위한 생체 활성 NP를 생산하는 중요한 동인입니다[31,32]. 이것은 해양 스폰지 Scopalina hapalia의 미생물 다양성을 조사한 최근 metagenomic 분석에서 분명합니다. 결과는 이러한 미생물이 연령 관련 분자 표적에 대한 생체 활성 화합물을 생산하여 노화 방지 특성을 가질 가능성을 강조했습니다. [36]. 그러나 해양 신약 개발은 구조 결정 및 공급 문제와 같은 몇 가지 주요 과제를 처리해야 합니다[31].
생체 활성 NP를 제공하는 해양 생태계의 증가된 잠재력은 이전에 S. arenicola에서 생체 활성 제품을 분리하여 확인했습니다. 그 중 가장 흥미로운 것은 강력한 프로테아좀 억제제인 Salinosporamide A(Marizomib)로, 발견된 지 불과 3년 만에 다발성 골수종 치료에 대한 임상 1상 시험에 진입했습니다[31,69,70]. 또한 인간 선암종 세포에서 세포독성을 유발하는 항생제 Arenimycin[71]과 항암 표적[72]인 오르니틴 데카르복실라아제를 억제하는 saliniketal A 및 saliniketal B도 S. arenicola에서 분리되었습니다.
5. 결론
이러한 고무적인 결과에도 불구하고 SA223-S2BM 추출물의 생리활성 분자는 아직 알려지지 않았으므로 추가 조사가 필요합니다. 향후 연구를 통해 이 추출물의 화학적 조성과 이 연구에 나타난 추출물의 특성을 담당하는 생리활성 화합물이 밝혀질 것입니다. 따라서 우리는 SA223-S2BM 추출물(해양 메소포틱 산호 생태계의 방선균에서 얻음)을 건강한 노화를 촉진하는 세포 보호 메커니즘의 효과적인 활성제로 제안합니다.
보충 자료: 다음 지원 정보는 웹사이트에서 다운로드할 수 있습니다. 그림 S1: 티로시나제 및 엘라스타제 억제 활동의 시험관 내 평가. (A) (백분율) 150 µg/mL 농도에서 SA223-S2BAE 추출물에 의한 Tyrosinase 억제 활성. (B) (백분율) 100 µg/mL 농도에서 SA223-S2LAE 추출물에 의한 엘라스타제 억제 활성. (A)에서 코지산(2 μg/mL)을 양성 대조군으로 사용했습니다. (B)에서는 멜라스타틴(0.5 μg/mL)을 양성 대조군으로 사용했습니다. 막대, ± SD(n 2 이상); *, p < 0.05. 그림 S2: 단백질 발현 수준의 전체 블롯 및 정량 분석(그림 2에 표시된 면역 블롯). 그림 S3: 단백질 발현 수준의 전체 블롯 및 정량 분석(그림 3에 표시된 면역 블롯). 그림 S4: 단백질 발현 수준의 전체 블롯 및 정량 분석(그림 3에 표시된 면역 블롯). 그림 S5: 단백질 발현 수준의 전체 블롯 및 정량 분석(그림 6에 표시된 면역 블롯). 그림 S6: 단백질 발현 수준의 전체 블롯 및 정량 분석(그림 7에 표시된 면역 블롯). 표 S1: 수명 실험 요약. 표 S2: 분석된 유전자의 전체 이름.
저자 기여:연구의 IPT 개념화, 설계 및 감독; XPL, ADS, E.-DP 및 MSM은 세포 및 Drosophila 분석을 수행하고 데이터를 해석했습니다. GLG, PL, YB 및 JO는 산호 수집, 계통 분석, 균주 분리/동정 및 추출물 생산을 수행했습니다. XPL, ADS, E.-DP, MSM 및 IPT가 원고를 작성하고 편집했습니다. 모든 저자는 원고의 출판된 버전을 읽고 이에 동의했습니다.
펀딩: 이 작업은 EU 보조금 TASCMAR(EU-H2020/634674)에 의해 부분적으로 지원되었습니다.
기관 검토 위원회 성명서:적용되지 않습니다.
정보에 입각한 동의서:적용되지 않습니다.
데이터 가용성 진술:데이터는 합당한 요청 시 해당 작성자에게 제공됩니다.

감사의 말: 우리는 모든 TASCMAR 참가자들의 훌륭한 협력에 감사드립니다. 또한 Sam Rothberg R/V 사용과 승무원의 전문적인 지원에 대해 Eilat의 해양 과학 대학 간 연구소(IUI)에 감사드립니다. ROV를 운영해 주신 EcoOcean 직원들에게 감사드립니다. 우리는 M. Weis와 R. Liberman이 현장 조사에 도움을 준 것을 인정합니다.
이해 상충:저자는 이해 상충을 선언하지 않습니다.
참조
1. Argyropoulou, A.; Aligiannis, N.; Trougakos, IP; Skaltsounis, A.-L. 노화 방지 작용을 하는 천연 화합물. Nat. 찌르다. 2013, 30, 1412–1437. [교차 참조]
2. CE 리에라; Merkwirth, C.; De Magalhaes-Filho, CD; Dillin, A. 수명을 결정하는 신호 네트워크. 안누. Biochem 목사. 2016, 85, 35–64. [CrossRef] [펍메드]
3. 팬, H.; Finkel, T. 수명을 조절하는 주요 단백질 및 경로. J. Biol. 화학. 2017, 292, 6452–6460. [CrossRef] [펍메드]
4. Trougakos, IP; 세스티, F.; Tsakiri, E.; Gorgoulis, VG 비효소적 번역 후 단백질 변형 및 발암에서 단백분해 네트워크 조절 완화. J. 프로테옴. 2013, 92, 274–298. [교차 참조]
5. Niforou, K.; Cheimonidou, C.; Trougakos, IP 산화 환원 불균형 동안 분자 샤페론 및 단백질 분해 조절. 레독스 바이오. 2014, 2, 323–332. [CrossRef] [펍메드]
6. Tsakiri, EN; Trougakos, IP The Amazing Ubiquitin-Proteasome System: Structural Components and Implication in Aging. 국제 셀 몰 목사. 비올. 2015, 314, 171–237. [CrossRef] [펍메드]
7. 살라, AJ; 보트, LC; Morimoto, RI Shaping proteostasis at the cell, tissue, and organismal level. J. Cell Biol. 2017, 216, 1231–1241. [CrossRef] [펍메드]
8. Kaushik, S.; Cuervo, AM Proteostasis 및 노화. Nat. 중간 2015, 21, 1406–1415. [교차 참조]
9. 클라이프스, CL; Jayaraj, GG; Hartl, FU 노화 및 질병에서 세포 단백분해의 경로. J. Cell Biol. 2017, 217, 51–63. [교차 참조]
10. Labbadia, J.; Morimoto, RI The Biology of Proteostasis in Aging and Disease. 안누. Biochem 목사. 2015, 84, 435–464. [교차 참조]
11. 발친, D.; Hayer-Hartl, M.; Hartl, FU 단백질 접힘 및 품질 관리의 생체 내 측면. 과학 2016, 353, aac4354. [CrossRef] [펍메드]
12. 힙, MS; Kasturi, P.; Hartl, FU proteostasis 네트워크와 노화의 감소. Nat. 목사 몰. 세포비올. 2019, 20, 421–435. [CrossRef] [펍메드]
13. Sridhar, S.; Botbol, Y.; 마시안, F.; Cuervo, AM Autophagy 및 질병: 항상 문제의 양면. J. 파톨. 2011, 226, 255–273. [CrossRef] [펍메드]
14. 로페즈-오틴, C.; 메사추세츠주 블라스코; 패트리지, L.; 세라노, M.; Kroemer, G. 노화의 특징. 셀 2013, 153, 1194–1217. [CrossRef] [펍메드]
15. 발치, WE; 모리모토, RI; 딜린, A.; Kelly, JW 질병 개입을 위한 단백질 분해 효소 적응. 과학 2008, 319, 916–919. [교차 참조]
16. 힘, ET; 모리모토, RI; 딜린, A.; 켈리, JW; Balch, WE Proteostasis Deficiency 질병에 대한 생물학적 및 화학적 접근. 안누. Biochem 목사. 2009, 78, 959–991. [교차 참조]
17. Calamini, B.; Morimoto, 단백질 형태의 질병에 대한 치료 표적으로서의 RI 단백질 항상성. 현재 맨 위. 중간 화학. 2013, 12, 2623–2640. [CrossRef] [펍메드]
18. 스클리루, AD; Papanagnou, E.-D.; Fokialakis, N.; Proteostatic 모듈의 활성화를 통한 Trougakos, IP Cancer chemoprevention. 암 레트. 2018, 413, 110–121. [교차 참조]
19. 장 S.; Duan, E. 피부 노화와의 싸움: 벤치에서 침대 옆으로 가는 길. 세포 이식. 2018, 27, 729–738. [교차 참조]
20. 야신, ZAM; 이브라힘, F.; 라시드, NN; 라지프, MFM; 유소프, R.; Yasin, FIZAM 피부 노화 방지 자원으로서 일부 식물 추출물의 중요성: 리뷰. 현재 제약 생명공학. 2018, 18, 864–876. [교차 참조]
21. 배하보, YSC; Park, HY Tyrosinase: 피부 색소 침착의 중심 조절 단백질. J. 조사. 더마톨. 2012, 132, 2678–2680. [교차 참조]
22. Pillaiyar, T.; 마니캄, M.; Namasivayam, V. 피부 미백제: 티로시나제 억제제의 약용 화학 관점. J. Enzym. 억제. 중간 화학. 2017, 32, 403–425. [CrossRef] [펍메드]
23. Qu, Y.; Zhan, Q.; Du, S.; Ding, Y.; Fang, B.; Du, W.; 우, Q.; Yu, H.; 리, 엘.; Huang, W. 티로시나아제의 촉매 기반 특이 검출 및 억제 및 그 적용. J. Pharm. 항문. 2020, 10, 414–425. [교차 참조]
24. Decorte, BL 신약 개발에서 천연 제품에 대한 과소 탐색된 기회. J. Med. 화학. 2016, 59, 9295–9304. [CrossRef] [펍메드]
25. Beutler, JA Natural Products as a Foundation for Drug Discovery. 현재 프로토콜 파마콜. 2019, 86, 9.11.1–9.11.21. [교차 참조]
26. 양찬성; 장 W.; 동X; Fu, C.; Yuan, J.; 쉬, M.; 리앙, Z.; Qiu, C.; Xu, C. 노화 및 노화 관련 질병에 대한 천연 제품 솔루션. 파마콜. 그. 2020, 216, 107673. [CrossRef] [PubMed]
27. 로드리게스, T.; 레커, D.; 슈나이더, P.; Schneider, G. 약물 설계를 위한 천연 제품에 의존. Nat. 화학. 2016, 8, 531–541. [CrossRef] [펍메드]
28. 블런트, JW; 캐롤, 아칸소; 콥, BR; 데이비스, RA; Keyzers, RA; Prinsep, MR 해양 천연 제품. Nat. 찌르다. 2018, 35, 8–53. [교차 참조]
29. Christensen, S. 사회를 바꾼 천연 제품. 생물의약품 2021, 9, 472. [CrossRef]
30. 몬타세르, R.; Luesch, H. 해양 천연 제품: 신약의 새로운 물결? 퓨처메드 화학. 2011, 3, 1475–1489. [교차 참조]
31. 리앙, X.; 루오, D.; Luesch, H. 해양 천연 제품의 치료 잠재력 탐색을 발전시킵니다. 파마콜. 해상도 2019, 147, 104373. [교차 참조]
32. 상, VT; 날짜, TTH; 빈, LB; 쿠엉, LCV; Oanh, PTT; 하, H.; 김용화; 안, HLT; Yang, SY 산호 및 산호 관련 미생물: 잠재적으로 생체 활성이 있는 천연 제품의 다산 공급원. 3월 마약 2019, 17, 468. [CrossRef] [PubMed]
33. 타무라, K.; Nei, M. 인간과 침팬지의 미토콘드리아 DNA 제어 영역에서 뉴클레오티드 치환 수 추정. 몰. 비올. 진화 1993, 10, 512–526. [교차 참조]
34. Kumar, S.; Stecher, G.; 리, 엠.; 크냐즈, C.; Tamura, K. MEGA X: 컴퓨팅 플랫폼 전반에 걸친 분자 진화 유전학 분석. 몰. 비올. 진화 2018, 35, 1547–1549. [교차 참조]
35. 르 고프, G.; Adelin, E.; 코르티알, S.; 서비, C.; Ouazzani, J. 한천 지원 발효에 고체상 추출 적용. 바이오프로세스 바이오시스트. 공학 2012, 36, 1285–1290. [교차 참조]

36. 하세인, CS; Fouillaud, M.; 르 고프, G.; Sklirou, AD; 보이어, JB; Trougakos, IP; Jerabek, M.; 비그논, J.; De Voogd, 뉴저지; Ouazzani, J.; 외. 해양 스폰지 Scopalina Chapala와 관련된 미생물: 노화 과정을 늦추는 생체 활성 분자의 저장소. 미생물 2020, 8, 1262. [CrossRef] [PubMed]
37. 캄포스, PE; Herbette, G.; 첸도, C.; Clerc, P.; 틴틸리에, F.; 드 Voogd, 뉴저지; Papanagnou, E.-D.; Trougakos, IP; Jerabek, M.; 비그논, J.; 외. Mayotte Marine Sponge Haliclona sp.의 새로운 장쇄 고산소 폴리아세틸렌 3월 Drugs 2020, 18, 350. [CrossRef] [PubMed]
38. 니코우, T.; 리아키, V.; Stathopoulos, P.; Sklirou, AD; Tsakiri, EN; Jakschitz, T.; 본, G.; Trougakos, IP; 할라발라키, M.; Skaltsounis, LA EVOO 폴리페놀의 비교 조사 및 oleocanthal 및 oleoresin의 건강한 노화 촉진 특성 탐색. 식품화학 독성. 2019, 125, 403–412. [교차 참조]
39. Tsakiri, EN; Sykiotis, GP; 파파시데리, IS; Gorgoulis, VG; Bohmann, D.; Trougakos, IP 노화 또는 산화 스트레스 동안 Drosophila의 생식 대 체세포 조직에서 프로테아좀 기능의 차등 조절. FASEB J. 2013, 27, 2407–2420. [CrossRef] [펍메드]
40. Gumeni, S.; Evangelakou, Z.; Tsakiri, E.; Scorrano, L.; Trougakos, IP 단백질 및 전이 모듈의 기능적 배선은 불균형한 미토콘드리아 역학 동안 일시적인 유기체 생존을 보장합니다. 레독스 바이오. 2019, 24, 101219. [CrossRef] [PubMed]
41. Ransy, C.; Vaz, C.; 롬베스, A.; Bouillaud, F. 산화 스트레스를 유발하는 H2O2의 사용, 카탈라아제 문제. 국제 J.Mol. 과학. 2020, 21, 9149. [교차 참조]
42. 스클리루, AD; Gaboriaud-Kolar, N.; Papassideri, I.; Skaltsounis, 앨라배마; Glycogen synthase kinase-3 억제제인 IP 6-bromo-indirubin-30 -oxime(6BIO)인 Trougakos는 세포 보호 세포 모듈을 활성화하고 인간 섬유아세포에서 세포 노화로 인한 생체 분자 손상을 억제합니다. 과학. 2017, 7, 11713. [교차 참조]
43. 스클리루, AD; Ralli, M.; Dominguez, M.; Papassideri, I.; Skaltsounis, A.-L.; Trougakos, IP Hexapeptide-11는 인간 이배체 섬유아세포에서 단백질 정체 네트워크의 새로운 조절자입니다. 레독스 바이오. 2015, 5, 205–215. [교차 참조]
44. Rasband, WS ImageJ US; 1.48v/자바 1.6.0-20(32-비트); 미국 국립 보건원: Bethesda, MD, USA, 2014.
45. Papanagnou, E.-D.; Terpos, E.; Kastritis, E.; 파파시데리, IS; 치실로니스, OE; 매사추세츠 주 디모풀로스; Trougakos, IP 다발성 골수종 환자의 치료적 프로테아좀 억제제에 대한 분자 반응은 기증자, 세포 유형 및 약물 의존적입니다. Oncotarget 2018, 9, 17797–17809. [교차 참조]
46. Tsakiri, EN; Gumeni, S.; Vougas, K.; 펜딘, D.; Papassideri, I.; 다가, A.; Gorgoulis, V.; Juhasz, G.; Scorrano, L.; Trougakos, IP Proteasome 기능 장애는 미토콘드리아 융합 또는 autophagy를 강화하여 완화할 수 있는 과도한 프로테옴 불안정성과 전이 손실을 유도합니다. Autophagy 2019, 15, 1757–1773. [CrossRef] [펍메드]
47. Tsakiri, EN; Gaboriaud-Kolar, N.; KK 일리아키; Tchoumtchoua, J.; Papanagnou, E.-D.; Chatzigeorgiou, S.; 탈라스, KD; Mikros, E.; 할라발라키, M.; Skaltsounis, 앨라배마; 외. 인디루빈 파생물 6-브로모인디루빈-30 -옥심은 단백질 단백질 모듈을 활성화하고 세포 생체 에너지 경로를 재프로그래밍하며 노화 방지 효과를 발휘합니다. 항산화. 산화 환원 신호. 2017, 27, 1027–1047. [교차 참조]
48. 사카르, S.; Ravikumar, B.; 플로토, RA; Rubinsztein, DC Rapamycin 및 mTOR 독립적인 자가포식 유도제는 폴리글루타민 확장 헌팅틴의 독성 및 관련 단백병증을 완화합니다. 세포 죽음은 다릅니다. 2009, 16, 46–56. [CrossRef] [펍메드]
49. Benayahu, Y. 인도-태평양의 Octocorals. Mesophotic 산호 생태계에서; Loya, Y., Puglise, K., Bridge, T., Eds.; 세계의 산호초; 스프링거: 참, 스위스, 2019년; 12권, 709-728쪽.
50. N. Millán-Aguiñaga; 차바리아, KL; Ugalde, JA; Letzel, A.-C.; 라우즈, G.; Jensen, PR Phylogenomic Insight into Salinispora (박테리아, 악티노박테리아) 종 지정. 과학. 2017, 7, 3564. [교차참조]
51. Kruszewski, M.; Szumiel, I. 뮤린 L5178Y 서브라인에서 과산화수소의 세포 독성 및 돌연변이 유발 효과. 액타 바이오킴. 폴. 1993, 40, 42–45. [교차 참조]
52. Campisi, J.; d'Adda di Fagagna, F. Cellular senescence: 좋은 세포에 나쁜 일이 일어날 때. Nat. 목사 몰. 세포비올. 2007, 8, 729–740. [CrossRef] [펍메드]
53. Ashraf, R.; 하미둘라, HM; Pandey, P.; Maheshwari, M.; 싱, LR; 시디퀴, MQ; 콘와르, R.; Sashidhara, KV; Sarkar, J. Coumarin-chalcone 하이브리드는 마이너 그루브 결합으로 DNA 손상을 유발하고 번역 후 변형을 통해 p53을 안정화합니다. 과학. 2017, 7, 45287. [교차 참조]
54. Hernandez-Segura, A.; 네메, J.; Demaria, M. 세포 노화의 특징. 트랜드 셀 바이오. 2018, 28, 436–453. [교차 참조]
55. 고르굴리스, V.; 아담스 PD; 알리몬티, A.; 베넷, DC; Bischof, O.; 주교, C.; Campisi, J.; Collado, M.; Evangelou, K.; Ferbeyre, G.; 외. 세포 노화: 경로 정의 정의. 셀 2019, 179, 813–827. [교차 참조]
56. Bielak-Zmijewska, A.; Mosieniak, G. 노화, 노화 관련 질병 및 장수의 세포 노화. 현재 바스크. 파마콜. 2013, 12, 698–706. [교차 참조]
57. 디 미코, R.; Krizhanovsky, V.; 베이커, D.; D'Adda Di Fagagna, F. 노화의 세포 노화: 메커니즘에서 치료 기회까지. Nat. 목사 몰. 세포비올. 2021, 22, 75–95. [교차 참조]
58. 테일러, R.; Dillin, A. Proteostasis Collapse의 사건으로서의 노화. 콜드 스프링 하브. 관점. 비올. 2011, 3, a004440. [교차 참조]
59. RI 모리모토; Cuervo, AM Proteostasis 및 건강과 질병의 노화 단백질체. J. Gerontol. Ser. 종기. 과학. 중간 과학. 2014, 69, S33–S38. [교차 참조]
60. 말도나도, LA; 페니칼, W.; 젠슨, PR; 카우프만, 캘리포니아; 민서, TJ; 워드, AC; 불, AT; Goodfellow, M. Salinispora arenicola gen. 11월, sp. 11월 및 Salinispora tropica sp. nov., Micromono-Cyperaceae과에 속하는 절대 해양 방선균. 국제 J. Syst. 진화 미생물. 2005, 55, 1759–1766. [교차 참조]
61. 폰타나, L.; 패트리지, L.; Longo, VD 식이 제한, 성장 인자 및 노화: 효모에서 인간까지. 과학 2010, 328, 321–326. [교차 참조]
62. Wedel, S.; 마놀라, M.; Cavinato, M.; Trougakos, IP; Jansen-Dürr, P. 건강한 노화를 촉진하기 위해 천연 제품에 의한 단백질 품질 관리 메커니즘을 목표로 합니다. 분자 2018, 23, 1219. [CrossRef]
63. 몰린스키, TF; 달리세이, DS; 리벤스, SL; Saludes, JP 해양 천연물로부터 의약품 개발. Nat. 마약 Discov 목사. 2008, 8, 69–85. [교차 참조]
64. 바실로풀루, M.; Ioannou, E.; Roussis, V.; Chondrogianni, N. 해양 천연물에 의한 유비퀴틴-프로테아좀 시스템의 조절. 레독스 바이오. 2021, 41, 101897. [CrossRef] [PubMed]
65. 로이어, M.; 프라도, M.; García-Pérez, ME; Diouf, PN; Stevanovic, T. 캐나다 삼림 종에서 추출한 폴리페놀 수피 추출물의 기능 식품, 영양 화장품 및 화장품 잠재력에 대한 연구. PharmaNutrition 2013, 1, 158–167. [교차 참조]
66. 툰디스, R.; 로이조, MR; Bonesi, M.; Menichini, F. 피부 노화에 대한 천연 화합물의 잠재적 역할. 현재 중간 화학. 2015, 22, 1515–1538. [CrossRef] [펍메드]
67. 마틴스, A.; 비에이라, H.; Gaspar, H.; Santos, S. 제약 및 코스메슈티컬 산업에서 해양 천연 제품 판매: 성공을 위한 팁. 3월 Drugs 2014, 12, 1066–1101. [교차 참조]
68. Corinaldesi, C.; 바론, G.; 마르첼리니, F.; Dell'Anno, A.; Danovaro, R. Marine Microbial-Derived Molecules and their potential use in Cosmeceutical 및 Cosmetic Products. 3월 Drugs 2017, 15, 118. [CrossRef]
69. 펠링, RH; 뷰캐넌, GO; 민서, TJ; 카우프만, 캘리포니아; 젠슨, PR; Fenical, W. Salinosporamide A: 새로운 속 Salinospora의 해양 박테리아인 새로운 미생물 공급원의 세포독성이 높은 프로테아좀 억제제. 앙쥬. 화학. 국제 에드. 2003, 42, 355–357. [교차 참조]
70. Niewerth, D.; Jansen, G.; Riethoff, LFV; van Meerloo, J.; 케일, AJ; 무어, 학사; 아사라프, YG; Anderl, JL; Zweegman, S.; 카스퍼스, GJL; 외. 해양 Salinispora tropica Proteasome 억제제 Salinosporamide A(Marizomib)에 대한 항백혈병 활성 및 약물 내성 기전. 몰. 파마콜. 2014, 86, 12–19. [CrossRef] [펍메드]
71. 아솔카르, RN; 커클랜드, 테네시; 젠슨, PR; Fenical, W. Arenimycin, 해양 방선균 Salinispora arenicola의 리팜핀 및 메티실린 내성 황색포도상구균에 효과적인 항생제. J. 항생제. 2010, 63, 37–39. [교차 참조]
72. 윌리엄스, PG; Asolkar, RN; Kondratyuk, T.; 페주토, JM; 젠슨, PR; Fenical, W. Saliniketals A 및 B, 해양 방선균 Salinispora arenicola의 Bicyclic Polyketides. J. Nat. 찌르다. 2006, 70, 83–88. [교차 참조]
【자세한 정보:george.deng@wecistanche.com / WhatApp:8613632399501】