Kv1.3 억제는 미세아교세포 칼슘 신호 전달의 방해를 통해 신경염증을 약화시킵니다
Jul 07, 2023
추상적인
지난 5년 동안 칼륨 채널 KV1.3의 억제제는 허혈성 뇌졸중, 알츠하이머병, 파킨슨병 및 외상성 뇌 손상의 설치류 모델에서 신경염증을 감소시키는 것으로 나타났습니다. 전신 수준에서 이러한 유익한 작용은 미세아교세포 활성화의 감소와 전염증성 사이토카인 및 산화질소 생산의 억제에 의해 매개됩니다.
그러나 KV1.3 차단제가 전 염증성 미세 아교 세포 기능에 대한 억제 작용에 대한 분자 메커니즘은 KV1.3 채널이 전압 개폐 칼륨 채널에서 예상되는 것처럼 막 전위를 조절할뿐만 아니라 최근 우리 그룹이 입증 할 때까지 알려지지 않았습니다. , 위험 신호 ATP에 의해 생성된 탈분극에 저항하여 미세아교세포를 활성화하여 P2X4 수용체를 통한 칼슘 유입을 조절하는 데 중요한 역할을 합니다. 우리는 여기서 미세아교세포 신호전달에서 KV1.3의 역할을 검토하고 T 세포에서의 역할과 유사하게 KV1.3 채널이 미세아교세포에서 매장 운영 칼슘 유입을 조절한다는 것을 보여줍니다.
칼륨 채널 KV1.3은 면역 세포에서 널리 발현되는 이온 채널로, 세포막 전위, 세포 이동 및 면역 세포 기능 조절에 중요한 역할을 합니다. 최근 연구에 따르면 칼륨 채널 KV1.3을 억제하는 화합물이 신체의 면역력을 높이는 데 도움이 될 수 있습니다.
면역 체계를 조절하는 것은 건강을 유지하는 데 중요한 부분입니다. 그러나 자가면역질환, 암, 전염병과 같은 많은 질병은 면역 체계의 기능 장애를 초래합니다. 따라서 연구자들은 면역력을 높이는 방법을 찾고 있습니다. 최근 연구에 따르면 칼륨 채널 KV1.3의 억제제가 유망한 옵션일 수 있습니다.
면역 세포에서 칼륨 채널 KV1.3은 막 전위를 조절하여 세포 기능에 영향을 미칩니다. 이 연구는 칼륨 채널 KV1.3을 억제함으로써 T 세포의 이동을 줄이고 더 나아가 이들이 건강한 세포를 공격하는 것을 방지함으로써 불필요한 파괴로부터 면역 체계를 보호할 수 있음을 발견했습니다.
또한 일부 실험에서는 칼륨 채널 KV1.3을 억제하면 면역 체계의 다른 측면도 촉진할 수 있음을 발견했습니다. 예를 들어 연구에 따르면 이 채널을 억제하면 면역 세포의 질과 양이 향상되어 병원체 및 기타 외부 위협에 대한 신체의 저항력이 증가할 수 있습니다. 따라서 칼륨 채널 KV1.3의 억제는 면역력을 향상시키는 효과적인 방법일 수 있습니다.
결론적으로, 현재 연구는 칼륨 채널 KV1.3의 억제가 면역 체계의 기능을 개선하고 신체의 전반적인 면역을 증가시키는 유망한 접근 방식일 수 있음을 시사합니다. 그러나 이러한 발견이 유망하지만 이 접근법 사용의 안전성과 타당성을 결정하기 위해서는 추가 연구가 필요합니다. 이러한 관점에서 우리는 면역력을 향상시켜야 합니다. Cistanche는 면역력을 크게 향상시킬 수 있습니다. 고기 회에는 면역 체계를 자극할 수 있는 다당류, 두 개의 버섯, 황리와 같은 다양한 생물학적 활성 성분이 포함되어 있습니다. 다양한 유형의 세포, 면역 활동을 증가시킵니다.

소개
전압 개폐 칼륨 채널 KV1.3은 원래 T 세포에서 기술되었으며[1] 이후 다발성 경화증, 류마티스 관절염 및 건선과 같은 T 세포 매개 자가면역 질환을 치료하기 위한 표적으로 추구되었습니다[2-4]. 보다 최근에 KV1.3은 미세아교세포 활성화를 조절함으로써 소위 "신경염증"을 감소시키기 위한 매력적인 약리학적 표적으로 부상했습니다. 허혈성 뇌졸중의 마우스 및 쥐 모델에서 KV1.3 차단제는 경색 영역을 줄이고 신경학적 결함을 개선하는 것으로 나타났습니다[5,6]. 알츠하이머병의 트랜스제닉 마우스 모델에서 KV1.3 차단은 대뇌 아밀로이드 부하를 감소시키고 해마 신경 가소성을 강화하며 행동 결함을 개선했습니다[7].
유사하게, 파킨슨병의 여러 동물 모델에서 소분자 KV1.3 차단제 PAP-1의 투여는 도파민성 뉴런의 퇴행을 억제하고 행동 결과를 개선했습니다[8]. KV1.3 억제 또는 유전적 결실은 외상성 뇌 손상[9], 수술 후 인지 저하[10] 및 방사선 유발 뇌 손상[11] 후 백질 병리를 개선하는 것으로 추가로 나타났습니다. 이러한 신경 질환의 모든 동물 모델에서 증가된 KV1.3 발현이 병리학 관련 미세아교세포에서 관찰되었고 KV1.3 차단제로 치료하면 동물의 뇌에서 미세아교세포 활성화가 감소하고 염증성 사이토카인 수준이 감소했습니다.
질병 관련 증가된 KV1.3 발현은 알츠하이머병에서 아밀로이드 플라크를 둘러싼 미세아교세포에서 허혈성 뇌졸중[5,12] 후 경색된 영역의 미세아교세포에 대한 사후 인간 뇌에서도 강력한 KV 1.3 발현이 발견되었기 때문에 인간에게 번역되는 것으로 보입니다. 7,13], 파킨슨병의 전전두엽 피질과 흑색질의 미세아교세포[8]. 종합하면, 인간 및 동물 모델에서의 이러한 고무적인 발견은 미세아교세포 KV1.3 채널이 뇌에서 유해한 염증 반응을 감소시키기 위한 치료 표적임을 강력하게 시사합니다. 그러나 KV1.3 차단제는 어떻게 작동합니까? 미세아교세포에서 전압 개폐 칼륨 채널을 차단하고 아마도 뇌에 침투하는 단핵구 유래 대식세포도 어떻게 염증성 사이토카인 생성과 염증 매개 조직 손상을 줄이는가?
KV1.3 차단제가 소교세포 기능에 미치는 영향
배양된 신생아 마우스 및 쥐 미세아교세포뿐만 아니라 마우스 뇌 또는 쥐 뇌에서 조직 인쇄된 미세아교세포로부터 급성 분리된 미세아교세포는 시험관 내 자극 또는 생체 내에서 실질적으로 증가하는 전체 세포 패치-클램프에 의해 KV1.3 전류를 발현하는 것으로 나타났습니다. TLR-4 리간드 리포폴리사카라이드(LPS)를 사용한 뇌실내 주사[14-18]. 그람 음성 세포벽 구성 요소 LPS를 사용한 자극은 세균 감염과 관련된 일반적인 염증을 시뮬레이션하는 소교세포의 "고전적으로" 활성화된 "M1-유사" 상태를 유도하는 데 널리 사용됩니다[19,20]. 신경면역학 분야에서 LPS 자극 미세아교세포는 M1/M2 용어 사용을 피하기 위해 극성화를 유도하는 데 사용되는 자극을 기반으로 이상적으로는 M(LPS) 미세아교세포로 불려야 합니다. 매력.
LPS로 자극한 후 증가된 KV1.3 발현은 Western blotting, 면역조직화학 및 전체 세포 패치 클램프로 측정된 증가된 전류 밀도에 의해 mRNA 수준과 단백질 수준에서 관찰될 수 있습니다[15-18]. Kv1.3 발현의 유사하지만 약간 덜 강한 증가는 배양된 신생아 미세아교세포가 올리고머 아밀로이드-(AO) 또는 -시누클레인[7,8], 알츠하이머병 또는 파킨슨병에서 잘못 접히고 응집되는 두 단백질로 자극될 때 발생합니다. 각각의 질병과 관련된 소교 세포 반응의 체외 모델을 만드는 데 자주 사용됩니다.
이러한 유형의 체외 시스템에서 KV1.3 억제 또는 유전적 결실은 미세아교세포 활성화 후 24- 또는 48-시간에 측정된 여러 염증 매개체의 발현 및 생성을 감소시킵니다. 약 20년 전 Lyanne Schlichter의 실험실은 KV1.3 억제제가 포르볼 에스테르로 자극된 호흡 파열[22]과 배양된 신생아 쥐 미세아교세포에서 NO 생성을 억제하여 트랜스웰 배양 시스템에서 미세아교세포 매개 신경 세포 살상을 감소시킨다고 보고했습니다[16].

KV1.3 및 KCa3.1 차단제의 효과를 널리 사용되는 미세아교세포 억제제 미노사이클린과 차별적으로 편광된 신생아 마우스 미세아교세포에 비교한 우리 연구실[17]의 최근 연구에서 우리는 Kv1.3 억제가 발현 및 생성을 감소시키는 것을 관찰했습니다. 염증 관련 사이토카인 IL-1 및 TNF-를 24시간 및 28시간에 제거하고 염증 관련 효소인 cyclooxygenase2(COX-2) 및 유도성 산화질소 합성 효소(iNOS)의 상향 조절을 방지했습니다. 후자의 효과는 아마도 LPS 자극 후 24시간 및 48시간에 KV1.3 억제제로 처리된 미세아교세포에서 관찰된 감소된 NO 생성의 원인일 것입니다. 이전 연구와 유사하게, 우리는 또한 KV1.3 억제제가 미세아교세포가 활성화된 지 3일 후 저산소증/혈당증의 1-시간을 통해 기관형 해마 슬라이스 배양에서 미세아교세포 매개 신경 세포 살해를 방지하여 허혈성 뇌졸중을 시뮬레이션하는 것을 관찰했습니다[5] 또는 올리고머 아밀로이드로 치료하여 AD에서 미세아교세포 활성화를 시뮬레이션합니다[7].
CD11b 또는 Iba-1에 대해 미세아교세포를 염색하고 형광 강도를 평가함으로써 명확하게 나타날 수 있는 현상인 AO 유도 미세아교세포 활성화를 감소시키는 것 외에도 KV1.3 억제제 PAP-1는 또한 예방하는 것으로 밝혀졌습니다. 해마 슬라이스에서 장기 강화(LPT)의 O-유도, 미세아교세포-매개 손상 및 배양된 마우스 미세아교세포[7]에서 IL-1, TNF- 및 NO의 A O-유도 생성을 감소시키기 위해, 매우 유사함 LPS 자극 미세아교세포가 있는 KV1.3 억제제에 대해 발견된 것입니다[17,18]. 야생형 및 KV1.3-/- 마우스의 배양된 신생아 마우스 미세아교세포를 집합체 -synuclein(SynAgg)으로 자극한 실험에서 패턴 인식 수용체 TLR2 및 CD36[23]에 대한 결합을 통해 미세아교세포를 활성화합니다. PAP-1로 3 억제 및 채널의 유전적 결실은 IL-1, IL-6, IL-12 및 TNF- 생산을 감소시켰고 24세에 NLRP3 인플라마좀 단백질 상향조절을 방지했습니다. 미세아교세포 자극 후 몇 시간 후[8]. 반대로, 소교 세포주에서 KV 1.3의 과발현은 자극 후 24시간에 SynAgg 유도된 IL-1, TNF-, IL-6 및 IL-12의 발현 또는 분비를 증가시켰다[8].
다른 그룹의 다양한 연구에서 KV1.3 차단제가 유사한 자극 또는 다른 염증성 병리와 관련된 자극을 사용할 때 전 염증성 소교 세포 기능을 감소시키는 것으로 확인되었습니다. 예를 들어, HIV 관련 신경인지 장애를 시뮬레이션하기 위해 HIV Tat 단백질 또는 당단백질 120(gp120)으로 활성화된 배양된 쥐 미세아교세포에서1- siRNA로 KV1.3 억제 또는 녹다운이 IL-1을 감소시키는 것으로 밝혀졌습니다. , TNF- 및 NO 생성 및 신경독성 억제[24,25]. 배양된 미세아교 세포의 허혈성 뇌졸중 및 산소/포도당 결핍 모델 사용 Ma et al. KV1.3 억제가 미세아교세포 표현형을 전염증성 M1-like에서 M2-like 반응으로 이동시키고 NLRP3 inflammasome 활성화를 감소시킨다고 보고했습니다[5,6]. 파킨슨병 모델에서 [8].
Rangaraju는 KV1.3 차단 펩타이드 ShK-223의 존재 및 부재 하에 LPS로 전신 처리된 마우스의 뇌에서 CNS 침윤 대식세포 및 뇌 상주 미세아교세포로 구성된 새로 분리된 CD11b 플러스 세포를 사용하여 외. KV 1.3 억제가 IL-1과 같은 염증성 사이토카인의 발현을 감소시킨다는 것을 확인했지만 KV1.3 억제는 또한 TAP1의 발현을 감소시키고 CD11b와 CD45low 미세아교세포에서 EHD1의 상향조절을 방지한다는 것을 보여주었습니다[26]. TAP1과 EDH1은 모두 MHC 클래스-I 조립 및 세포 표면으로의 인신매매에 관여하는 단백질입니다. 따라서 저자는 다음으로 ShK-223 처리가 MHC 클래스-1 발현에 미치는 영향을 조사했습니다. 미세아교세포는 KV 1.3- 의존적 과정으로, KV1.3 억제가 CD8과 세포독성 T 세포에 대한 항원 제시를 감소시킬 수 있음을 시사합니다.
신경 염증성 및 신경 퇴행성 질환 마우스 모델의 미세아 교세포 전사 데이터 세트에 적용된 후속 가중 공동 발현 네트워크 분석에서 동일한 그룹은 KV1.3을 Tlr2, Ptgs2, Il12b, Il1b, CD44, NFκB, Stat1 및 RelA [27]. ShK-223로 KV1.3을 차단하면 질병 관련 미세아교세포에서 항염증 유전자의 발현이 증가하는 것으로 이 염증 유발 신호를 전환할 수 있습니다. 이와 관련하여 흥미로운 점은 Kv1.3 억제제가 항염증 사이토카인 IL{-4 및 IL-10로 자극된 배양 미세아교 세포의 이동을 추가로 증가시키기 위해 다른 연구에서 보고되었다는 것입니다[28] 마이크로비드[26]의 미세아교세포 식균 작용에 영향을 미치지 않거나 심지어 아밀로이드-[7]의 식균 작용을 증가시킵니다.

종합하면, 미세아교세포가 KV1.3을 발현하고 KV1.3 차단제가 전염증성 신경독성 미세아교세포 기능을 억제하고 심지어 미세아교세포를 보다 신경보호적인 표현형으로 전환할 수 있다는 충분한 증거가 있습니다. 우리는 배양된 미세아교세포 또는 슬라이스 배양으로 얻은 데이터를 요약하는 데 주로 집중했습니다. 왜냐하면 이러한 환원주의 시스템에서는 녹아웃, 녹다운 또는 약리학적 차단이 미세아교세포 KV1.3 채널의 억제를 통해 직접적으로 영향을 미치고 간접적으로 영향을 미치지 않는다는 데 의심의 여지가 없기 때문입니다. KV1.3을 발현하는 T 세포, B 세포, 수지상 세포 또는 단핵구의 KV1.3 채널[29], 따라서 KV1.3 차단제의 생체 내 효과 또는 KV1.3-/-로 만든 결과에 기여할 수 있습니다. 생쥐. 그러나 우리는 여기에서 면역조직화학에 의해 설치류와 인간의 미세아교세포에 대한 KV1.3 발현을 보여주는 수많은 연구 외에도 Kettenmann 실험실과 우리 그룹이 반복적으로 활성화된 미세아교세포에 대한 KV1.3 발현 증가가 단지 조직 배양 현상 및 Kv1.3 전류는 급성 절편의 미세아교세포[30,31] 및 5xFAD 마우스의 뇌[7] 또는 중대뇌동맥 폐색 후 경색 부위[5, 12], 허혈성 뇌졸중 모델.
KV1.3 억제 또는 조절 Kv1.3 발현에 의해 영향을 받는 신호 전달 경로
KV1.3 차단제에 의해 영향을 받아 24시간 또는 48시간 후에 전 염증성 미세아교세포 기능의 유익한 감소를 생성하는 신호 경로(그림 1)를 조사한 연구는 다소 상충되는 결과를 가져왔으며, 이는 KV1.3 차단제의 효과가 의존적임을 시사합니다. 자극과 아마도 종에. 동안 Fordyce 외. KV1.3 차단제는 LPS 처리된 신생아 쥐 미세아교세포에서 p38MAPK 인산화에 영향을 미치지 않는다고 보고했습니다[16], 마우스 미세아교세포를 사용한 여러 다른 연구에서는 KV1.3 차단제가 LPS, AO, SynAgg 또는 HIV-1 당단백질 120[7,8,24]. 소교 세포주에서 BV2 KV1.3은 또한 STAT1의 S727 인산화를 조절하는 것으로 나타났습니다[26]. 흥미롭게도, KV1.3 차단제가 T 세포에서 가장 잘 연구된 KV1.3 차단제 효과 중 하나인 NFAT 전위를 억제하는지 여부[2,32,33]는 지금까지 소교세포에서 조사되지 않았습니다.
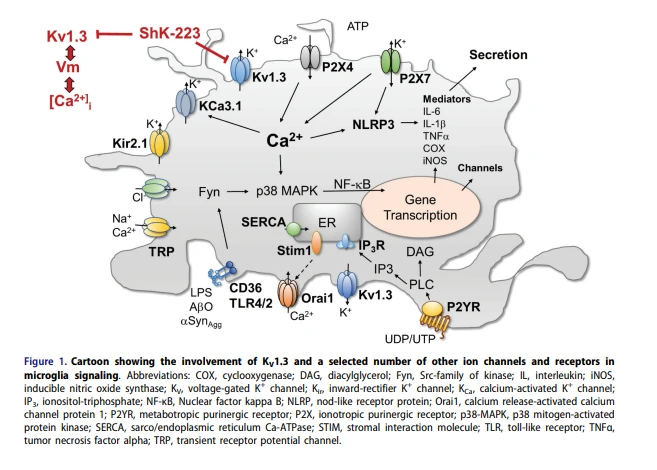
LPS, AO 또는 SynAgg로 미세아교 세포를 자극한 후 KV1.3 발현의 증가는 KV1.3 억제에 의해 영향을 받는 많은 동일한 신호 캐스케이드를 포함하는 것으로 보이며 KV1.3 차단제는 일반적으로 Kv1.3 발현의 증가를 방지합니다. KV1.3 프로모터는 여러 NF-κB 및 SP1 결합 부위를 포함하고 NF-κB 또는 p38MAPK의 억제제는 독립적으로 미세아교세포에서 SynAgg 자극 Kv1.3 상향 조절을 감소시켜[8], p38MAPK 및 고전적인 NF-κB 경로 모두 KV1.3의 전사 조절을 중재합니다(그림 1). Src 계열 키나아제 Fyn은 NF-κB 전사 인자의 구성 요소인 p65[34]의 핵 전좌를 조절하고 PKC 이소형 PKCδ를 인산화함으로써 NF-κB 전사 인자의 상류에서 작용합니다. Sarkaret al. Fyn 녹아웃은 배양된 미세아교세포에서 KV1.3 전류 밀도의 증가를 유도하는 LPS와 SynAgg 모두를 감소시킨다고 보고했습니다. 이는 미세아교세포를 Fyn 억제제 사라카티닙으로 치료하거나 PKCδ 결핍으로 모방할 수 있는 효과로, Fyn/PKCδ 키나아제 신호 전달이 캐스케이드는 염증 자극에 대한 반응으로 KV1.3 상향 조절을 매개하는 데 관여합니다[8]. Duolink 근접 결찰 분석에서 입증된 바와 같이 Fyn은 Kv1.3과 직접 상호작용하고 Y135에서 채널을 인산화하여 활성을 증가시킵니다.
Kv1.3은 막 전위를 조절하고 탈분극에 저항합니다.'
KV1.3 차단제의 생체 내 신경 염증 및 소교 신호 캐스케이드 및 시험 관내 염증 매개체 발현 및 분비에 대한 KV1.3 차단제의 개선 효과가 위에 설명되어 있음에도 불구하고 KV1.3 차단제가 소교 기능에 미치는 영향에 대한 근본적인 분자 메커니즘은 오랫동안 불분명했습니다. 우리 연구실을 포함한 많은 조사자들은 KV1.3이 미세아교 세포에서 T 세포에서 수행하는 것과 동일한 기능, 즉 막 전위 및 칼슘 유입을 조절한다고 간단하게 가정했습니다[29,32,33].
T 세포에서 KV1.3 억제는 막 탈분극을 유발하고 T 세포 수용체 자극 후 칼슘 방출 활성화 칼슘 채널(CRAC)을 통해 칼슘 유입을 감소시킵니다[33,35,36]. CRAC 채널을 통한 칼슘 유입은 사이토카인 IL-2 [29,33]의 전사를 유발하는 칼슘/칼모듈린 의존성 전사 인자 NFAT[29]의 탈인산화 및 후속적인 핵 전위에 결정적으로 필요합니다. IL-2은 합성 시 활성화된 T 세포에서 방출되며 자가분비 및 주변분비 방식으로 T 세포 클론 확장을 자극합니다. CRAC 채널을 통해 칼슘 유입을 유지하는 데 필요한 균형 잡힌 칼륨 유출을 억제함으로써 KV1.3 차단제는 T 세포 활성화를 방해하고 NFAT 탈인산화 및 핵 전위를 방지하여 [32] T 세포 증식을 감소시키고 염증성 사이토카인 생성 및 분비를 48시간에 감소시킵니다. [5,33,35,36].
그러나 T 세포와 달리 내부 정류기 Kir2.1[17,37,38]과 2개의 기공 칼륨 채널 THIK-1(K2P 13.1)[39]를 발현하는 미세아교세포에서는 테스트된 적이 없습니다. KV1.3 차단제가 동일한 분자 효과를 갖는지 또는 KV1.3의 역할이 이러한 다른 칼륨 채널에 의해 인계되는지 여부입니다. 이에 따라 최근 연구에서 우리 그룹은 휴식 막 전위를 유지하고 탈분극에 저항하는 데 있어 KV1.3의 근본적인 중요성을 먼저 재검토하여 이 문제를 해결했습니다[40]. 예상대로, CHO 세포에서 KV1.3의 과발현은 이들 세포의 전형적으로 매우 탈분극화된 휴지 막 전위를 -20mV에서 -50mV로 낮추는 반면, ShK-223로 KV1.3을 억제하면 탈분극화된 미세아교세포가 본질적으로 유지됩니다. Kir2.1을 주로 발현하는 미분화 미세아교세포에서 평균 약 -90mV, KV1.3 및 Kir2.1 전류 밀도가 낮은 LPS 자극 미세아교세포에서 약 -65mV인 보다 과분극화된 휴식 막 전위[40].
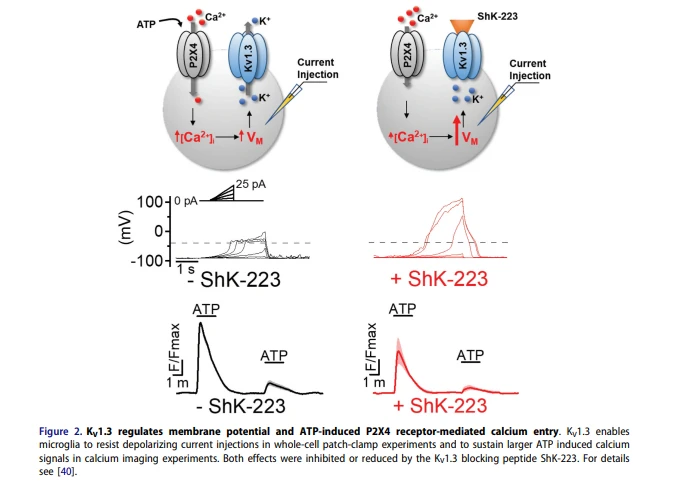
따라서 KV1.3은 확실히 미세아교세포에서 휴식 막 전위를 조절하는 데 기여하지만(그림 2), Kv1.3의 더 중요한 역할과 활성화된 미세아교세포에서 Kv1.3 발현이 증가하는 이유는 극단적이고 장기간 지속되는 채널을 상쇄하는 능력 때문이라고 생각합니다. 현재 주입 실험에 의해 밝혀진 바와 같이 미세아교세포 건강 및 생리학에 잠재적으로 부정적인 영향을 미칠 수 있는 막 탈분극. 25pA의 전류 주입은 차단제가 없을 때 -30mV 이상으로 미세아교세포를 발현하는 KV 1.3을 탈분극시킬 수 없지만, KV 1.3 차단제로 전처리된 미세아교세포는 동일한 25pA 전류 주입에 반응하여 +50mV의 전위로 탈분극됩니다[40] , KV1.3이 과도한 막 탈분극을 방지하기 위해 채널의 활성화 역치 전위에 가까운 막 전위를 "클램프"할 수 있음을 시사합니다(그림 2).
미세아교세포 생리학에서 이 능력이 중요한 상황은 미세아교세포가 세포외 ATP, 손상된 뉴런에서 세포질 ATP 또는 시냅스 소포를 포함하는 ATP의 방출로 인해 높은 마이크로몰 범위의 농도에 도달할 수 있는 위험 신호인 세포외 ATP에 노출될 때입니다[41], P2X 수용체 채널을 활성화하여 강렬한 탈분극을 유발합니다[42]. 우리 자신의 손에서 미분화 및 LPS 자극 미세아교세포에 대해 수행된 현재 클램프 실험은 미세아교세포에서 발현된 P2X 수용체 중에서 주로 P2X4를 활성화하는 100 μM ATP에 대한 급성 노출이 미분화 미세아교세포에서 더 현저한 탈분극을 유도한다는 것을 보여주었습니다. -40mV 이상에서 탈분극되지 않은 KV1.3높은 LPS로 자극된 미세아교세포보다 과분극된 휴식 막 전위. KV1.3 차단제는 ATP 유도 탈분극에 저항하는 이 능력을 손상시켰고 소교세포는 존재 시 탈분극되었습니다[40].
KV1.3은 미세 아교 세포에서 P2X4 수용체 매개 칼슘 유입을 조절합니다
칼슘 이미징 실험은 ATP 유도 P2X4- 매개 탈분극에 저항하는 KV1.3 채널의 이러한 능력이 Ca2와 100 μM ATP로 자극된 P2X4 수용체를 통한 미세아교세포 진입을 향상시킨다는 것을 밝혔습니다[40]. 예를 들어, 우리는 KV1.3 차단제 ShK-223 및 PAP-1가 높은 KV1.3 전류 밀도를 나타내는 LPS로 분화된 미세아교세포에서 P2X4 수용체를 통한 ATP 유도 Ca2 및 유입을 감소시키는 것을 관찰했습니다. LPS 자극이 배양된 미세아교세포에서 P2X4 수용체 발현을 하향 조절하더라도 자극되지 않은 미세아교세포보다 훨씬 강력합니다. 대조적으로, KV1.3 봉쇄는 매우 낮은 수준의 KV1.3을 발현하는 IL-4 자극 미세아교세포에서 ATP 유도 칼슘 과도 현상에 영향을 미치지 않았습니다. 흥미롭게도, LPS는 또한 생체 내 미세아교세포에서 KV1.3을 증가시키고 P2X4 발현을 감소시키는 반면, KV1.3 및 P2X4 발현은 마우스의 경색된 뇌 반구로부터 급성으로 분리된 미세아교세포에 대한 우리 연구실에서 보여준 바와 같이 허혈성 뇌졸중의 설정에서 동시에 증가합니다. 면역 조직 화학 또는 qPCR [5,12,43-46]에 의해 설치류 및 인간 미세 아교 세포에 대한 다른 그룹에 의해 허혈성 뇌졸중에 노출되었습니다. 이는 허혈성 뇌졸중 이후 KV1.3이 위험 신호 ATP에 의해 개시된 더 복잡한 퓨린성 미세아교세포 칼슘 신호를 시험관 내보다 더 강력하게 조절할 수 있음을 시사합니다. 뇌의 경색 부위에 있는 ATP 및 기타 신경 파편은 미세아교세포를 활성화하여 24~72시간 내에 더 많은 염증 매개체를 지속적으로 생성 및 방출하여 반음영에서 더 많은 신경세포를 손상시키고 죽임으로써 경색의 염증 확장으로 이어집니다.
2-5일 이내에 경색 경계의 미세아교세포에서 관찰되는 증가된 KV1.3 발현[5]은 아마도 활성화된 미세아교세포가 P2X4 수용체의 수 증가를 통해 더 강한 칼슘 신호를 유지하여 더 많은 염증 매개체를 생성하여 더 많은 뉴런을 손상시킬 수 있게 하는 것으로 추정됩니다. 그리고 더 많은 미세아교세포를 활성화합니다. 이 가설은 KV1.3 차단제 PAP-1가 미세아교세포 활성화와 IL-1 및 IFN-의 뇌 수준을 감소시켜 약 40% 더 작은 경색 영역과 개선된 신경학적 결손을 초래한다는 발견과 일치합니다. 허혈성 뇌졸중 [5]의 마우스 및 쥐 모델 모두에서 점수를 얻습니다. 미세아교세포를 탈분극함으로써 Kv1.3 차단제는 손상된 뉴런에서 방출된 ATP에 의해 유발된 P2X4 수용체를 통한 칼슘 유입을 감소시키고 따라서 NLRP3 인플라마좀, NF-κB 및 기타 전사 인자의 추가 칼슘 의존적 활성화를 약화시켜 염증 매개체 생성을 감소시킵니다(그림 1). 및 감소된 병리학.
KV1.3에 의해 조절되는 소교세포의 다른 칼슘 유입 경로는 무엇입니까?
KV1.3 봉쇄가 P2X4 수용체를 통한 ATP 유발 칼슘 유입을 분명히 감소시켰고[40] 따라서 미세아교세포에서 이 칼슘 유입 경로의 중요한 조절자를 구성하지만(그림 2), 이것이 유일한 KV1.3 또는 ATP 의존성 칼슘 신호는 아닙니다. 미세 아교 세포의 과정. P2X 수용체 채널 외에도 미세아교세포는 대사성 P2Y 퓨린성 수용체를 발현하며 ATP 또는 UTP에 의한 활성화에 따라 내부 저장소에서 칼슘 방출을 유도할 수 있고[47] 상대적으로 작은 세포 내 칼슘 저장소가 고갈된 후 저장소 작동 Ca2 플러스 항목(SOCE)을 활성화할 수 있습니다. 미세아교세포에서 [38]. 따라서 추가 SOCE가 우리가 이미지화한 ATP 유도 Ca2 플러스 신호에 기여하고 KV1.3 차단 효과 중 일부가 추가로 SOCE를 감소시킴으로써 매개되었을 가능성이 있습니다.
이것은 T 세포에서 KV1.3 차단제에 대한 "고전적인" 분자 메커니즘이 T 세포 수용체 활성화에 따른 CRAC 채널을 통한 SOCE의 감소이고 이어서 감소된 전사 인자 활성화 및 사이토카인 생성 및 방출[29,33, 36,48]. 쥐와 쥐의 미세아교세포는 CRAC 전류[49,50]에 전형적인 생물물리학적 특성을 가진 전류를 나타내고 CRAC 채널, Orai 및 STIM[51,52]의 분자 구성 요소를 발현하는 것으로 반복적으로 보고되었습니다. 또한 Orai1, STIM1 및 STIM2의 유전적 결실이 CRAC 전류 및/또는 SOCE를 감소시키고 배양된 마우스 미세아교세포에서 이동 및 식균작용을 억제한다는 증거가 있으며[52], 소분자 CRAC 채널 차단제 CM-EX-137는 최근 외상성 뇌 손상 마우스 모델에서 미세아교세포 활성화 및 병변 크기를 감소시키는 것으로 보고되었습니다[53].
KV1.3 채널의 봉쇄는 LPS로 자극된 소교 세포에서 매장 운영 칼슘 유입을 약화시킵니다.
P2X4 매개 칼슘 유입 조절에서 KV1.3의 역할에 대한 이전 논문의 후속 실험으로, 우리는 여기에서 KV1.3 차단제 ShK-223가 LPS 분화 미세아교세포에서 SOCE를 감소시키는지 구체적으로 질문했습니다. , 동일한 자극 조건에서 가장 높은 KV1.3 전류 밀도와 ATP 유도 칼슘 신호에 대한 KV1.3 억제의 가장 큰 효과를 관찰했습니다[40]. 유리 세포내 칼슘 농도([Ca2 + ]i)의 변화를 추적하기 위해 비율계량 칼슘 지표 Fura-2를 사용하여 LPS로 분화된 미세아교세포가 60 nM과 370 nM, 평균 150 ± 8.8 nM(n=50; 그림 3a,c,g), 이는 이전 보고서[54]와 일치합니다. SOCE를 유도하기 위해, 세포내 칼슘 저장고는 먼저 세포질 세망 Ca2 + -ATPase의 차단제인 탑시가르긴(Tg)으로 고갈되었으며, 명목상 Ca2 + - 없는 목욕 용액에 적용되었습니다.
Removal of extracellular calcium produced a roughly 25 nM decrease in [Ca2+] I (Figure 3a) indicating the presence of a calcium influx at rest. Subsequent application of Tg (1 μM) elicited small amplitude (>25 nM) 상점에서 수동 칼슘 동원으로 인한 [Ca2 + ] I의 비동기식 상승. 욕 용액으로의 칼슘의 재첨가는 SOCE에 의해 유발된 휴식 수준 이상으로 [Ca2 + ] I의 급격한 상승을 이끌어 냈습니다. Ca2 + - 없는 욕 용액의 [Ca2 + ] I 수준과 칼슘 재첨가 후 최대 [Ca2 + ] I 상승 사이의 차이로 측정된 SOCE 유도된 [Ca2 + ] I 과도 현상("피크 SOCE")의 크기는 다양했습니다. 120nM에서 최대값을 표시하고 최대 1800nM까지 꼬리를 표시하는 최대 SOCE 분포를 가진 개별 세포 사이에서 유의하게 나타납니다(그림 1b). SOCE 강도의 이러한 이질성은 SOCE 동안 칼슘 유입의 원동력을 제공하는 휴지 막 전위의 변화로 인해 발생할 수 있습니다. LPS로 분화된 미세아교세포의 휴식 막 전위는 개별 세포에서 -90 mV와 -40 mV 사이에서 변화하는 것으로 밝혀졌으며 [40,55] 따라서 SOCE에서 관찰된 차이를 설명할 수 있습니다.

이전 연구에서는 휴지기 [Ca2 + ] I의 상승이 P2Y 수용체 작용제 UTP 또는 보체 인자 5a와 같은 외부 자극의 능력 감소와 관련되어 LPS 활성화 미세아교세포에서 [Ca2 + ] I 과도 현상을 유발한다고 보고했습니다[54]. 우리의 연구에서 휴지기 [Ca2 + ]i 수준과 최대 SOCE 값은 모두 개별 세포마다 다르기 때문에 휴지기 [Ca2 + ]i의 변화가 최대 SOCE 값의 이질성을 설명할 수 있는지 여부를 조사했습니다. 최대 SOCE 값과 휴식 [Ca2 + ] I를 플로팅하면 피크 SOCE와 휴식 [Ca2 + ] I 사이에 양의 상관관계가 있음이 밝혀졌습니다(그림 3c). 피크 SOCE에 대한 컷오프 값이 600nM인 두 그룹으로 데이터를 분할했을 때, 각 그룹의 휴지 [Ca2 + ] I와 피크 SOCE 사이의 관계는 전체 모집단에서보다 강했으며, 이는 적어도 두 개의 세포가 존재함을 나타냅니다. SOCE의 크기와 휴지기 [Ca2 + ] I와 최대 SOCE 사이의 상관관계 강도가 서로 다릅니다. 따라서, LPS 처리된 세포의 집단 내에서, 휴지기 [Ca2 + ]i의 상승은 이전에 제안된 바와 같이 [Ca2 + ] I 과도현상으로 외부 자극에 반응하는 활성화된 미세아교세포의 능력 감소와 인과적으로 연결되지 않습니다. 호프만 외. 우리의 데이터는 KV1.3, Kir2.1 및 THIK-1를 포함한 다양한 채널에 의해 제어되는 막 전위 수준과 같은 일반적인 영향이 휴지기 [Ca2 plus ] I 및 본 연구에서 관찰된 피크 SOCE. 예를 들어, 과분극 채널의 과발현 또는 기능적 상향 조절은 막을 과분극화하고 대사적으로 활성화된 일시적 수용체 전위(Transient Receptor Potential, TRP) 채널 및 저장고갈 후 활성화된 저장 작동 채널과 같은 구성적으로 활성인 칼슘 투과성 채널을 통해 칼슘 유입을 위한 추진력을 증가시킬 수 있습니다. CRAC 채널과 같은
Pre-incubation of cells with the KV1.3 inhibitor ShK-223 did not significantly affect resting [Ca2+] I (Figure 3d,g), but eliminated peak SOCE responses larger than 300 nM and shifted the maximum of the distribution of peak SOCE values from 130 nM (Figure 3b, control) to 70 nM (Figure 3e, ShK223). The difference between the values of peak SOCE in control cells and cells preincubated with ShK-223 was significant (Figure 3h). The relationship between resting [Ca2+] I and peak SOCE still displayed a mild positive correlation (figure 3f). Taken together, our data indicate that similarly to T lymphocytes, blockade of KV1.3 channels significantly reduces SOCE in LPS differentiated microglia. The extent of the inhibition varied among cells with a greater effect on cells expressing large magnitude (>300nM) SOCE. 높고 낮은 피크 SOCE를 갖는 셀의 특정 특성은 아직 결정되지 않았습니다.
생리학적 조건에서 SOCE는 G-단백질 결합 P2Y 수용체의 활성화에 따른 고갈을 저장하기 위해 후속적으로 트리거될 수 있으며 ATP와 같은 일반적인 퓨린 작동제에 의해 유도된 P2Y 및 P2X 수용체의 활성화 동안 결합된 [Ca2 + ] I 상승에 기여합니다. SOCE의 크기는 LPS로 분화된 세포 사이에서 크게 달라지는데, 이는 저장 운영 채널의 차등 발현과 KV1.3과 같은 막 전위를 제어하는 채널의 독특한 조합의 함수일 수 있습니다. ShK-223에 의한 피크 SOCE의 감소는 KV1.3 채널이 SOCE의 강력한 조절자임을 나타내고 KV1.3 차단제가 칼슘 의존성 전사 후 칼슘 신호 및 후속 기능적 반응(예: 사이토카인 생산)을 약화시키는 추가 메커니즘을 밝혀냅니다. 미세아교세포에서 인자 활성화.

결론
말초 면역계의 세포, 특히 기억 T 세포 및 단핵구 유래 대식세포에 대한 기여의 영향을 분류하는 것은 확실히 어려운 일이지만, CNS의 염증에 대한 KV1.3 차단제의 유익한 효과를 만드는 것은 KV1.3은 막전위 조절, 탈분극 방지, 소교 세포 활성화 및 염증 매개체 생성으로 이어지는 칼슘 신호 전달 사건 조절에 중요한 역할을 한다는 것이 분명합니다. 우리는 치료적 관점에서 여러 면역계 세포 유형에서 KV1.3을 억제하는 것이 아마도 바람직하다고 제안하고 싶습니다. 그러나 KV1.3 억제제의 주요 세포 표적이 무엇인지, 치료제가 CNS 질환에서 최적의 개선 효과를 발휘하기 위해 뇌 침투성이 필요한지 여부를 명확히 하는 것은 지적으로 매우 만족스럽고 치료법 개발에 도움이 될 것입니다. 이러한 질문은 이상적으로 알츠하이머 및 파킨슨병의 동물 모델에서 말초 제한 펩티드 KV1.3 억제제 또는 항-KV1.3 항체[58,59]와 함께 뇌 침투 소분자를 테스트함으로써 약리학적으로 해결되어야 합니다. 신경염증에서 KV1.3의 역할에 대한 보다 자세한 이해를 얻기 위해 미세아교세포, 단핵구 유래 대식세포 및 다른 T 세포 하위 집합에서 조건부 KV1.3 결실의 효과를 약물 치료의 효과와 비교하는 것은 매우 유익할 것입니다. 및 KV1.3 억제제의 세포 표적. 그러나 우리는 세포 수준에서 KV1.3의 근본적인 역할은 항상 T 세포에서 처음 기술된 것, 즉 막 전위 및 칼슘 유입의 조절과 그에 따른 칼슘 의존성 전사 인자의 활성화일 것이라고 믿습니다. 때때로 이 점에서 충분히 강조되지 않는 것은 아마도 절반 활성화 전압 및 상대적으로 느린 비활성화와 같은 KV1.3의 생물물리학적 특성[60,61]이 채널이 막 탈분극에 저항하도록 완벽하게 "자격을 부여"하여 KV1을 활성화한다는 것입니다. .3 T 세포에서 30년 전에 기술된 것처럼 SOCE를 조절할 뿐만 아니라 P2X 수용체 매개 칼슘 유입도 조절합니다.
공시문
잠재적인 이해 상충은 저자에 의해 보고되지 않았습니다.
펀딩
이 작품은 국립 신경 질환 및 뇌졸중 연구소(National Institute of Neurological Disease and Stroke Award) NS100294(HW에)와 UC 데이비스 의과대학 연구 파트너십 보조금(AFF에)의 지원을 받았습니다.
참조
[1] DeCoursey TE, Chandy KG, Gupta S, 외. 인간 T 림프구의 Voltage-gated K plus 채널: 세포 분열의 역할? 자연. 1984;307(5950):465–468.
[2] Beeton C, Wulff H, Standifer NE, 외. Kv1.3 채널은 T 세포 매개 자가면역 질환의 치료 표적입니다. Proc Natl Acad Sci USA. 2006;103(46):17414–17419.
[3] Tarcha EJ, Chi V, Munoz-Elias EJ, 외. 자가면역 질환의 T 세포 매개체를 억제하는 특정 Kv1.3 채널 억제제인 펩타이드 ShK-186의 지속적인 약리학적 반응. J Pharmacol 특급 Ther. 2012;342(3):642–653.
[4] Chandy KG, 노턴 RS. 자가면역 질환에 대한 치료제로서 T 세포에서 Kv1.3 채널의 펩티드 차단제. Curr Opin Chem Biol. 2017;38:97–107.
[5] Chen YJ, Nguyen HM, Maezawa I, 외. 칼륨 채널 Kv1.3의 억제는 허혈성 뇌졸중에서 경색 및 염증을 감소시킵니다. 앤 클린 Transl Neurol. 2018;5(2):147–161.
[6] Ma DC, Zhang NN, Zhang YN 등. Kv1.3 채널 차단은 M1/M2 표현형을 재구성하고 미세아교세포에서 NLRP3 인플라마솜의 활성화를 손상시켜 대뇌 허혈/재관류 손상을 완화합니다. 특급 뉴롤. 2020;332:113399.
[7] Maezawa I, Nguyen HM, Di Lucente J, 외. 알츠하이머병에 대한 잠재적인 미세아교세포 표적 치료제로서의 Kv1.3 억제: 전임상 개념 증명. 뇌. 2018;141(2):596–612.
[8] Sarkar S, Nguyen HM, Malovic E, 외. Kv1.3은 파킨슨병에서 신경염증 및 신경변성을 조절합니다. 제이클린 인베스트 2020;130(8):4195–4212.
[9] Reeves TM, Trimmer PA, Colley BS 등. 외상성 뇌 손상 후 백질 병리를 줄이기 위해 Kv1.3 채널을 대상으로 합니다. 특급 뉴롤. 2016;283(PtA):188–203.
[10] Lai IK, Valdearcos M, Morioka K, 외. Kv1.3 칼륨 채널을 차단하면 생쥐의 상처 치유를 손상시키지 않으면서 수술 후 신경염증 및 인지 저하를 예방할 수 있습니다. Br J Anaesth. 2020;125 (3):298–307.
[11] Peng Y, Lu K, Li Z, 외. Kv1.3 채널 차단은 방사선 유발 뇌 손상을 완화합니다. 신경종양. 2014;16(4):528–539.
[12] Chen YJ, Nguyen HM, Maezawa I, 외. 칼륨 채널 KCa3.1은 허혈/재관류 뇌졸중과 관련된 신경 염증에 대한 약리학적 표적을 구성합니다. J 뇌혈류 Metab. 2016;36(12):2146–2161.
[13] Rangaraju S, Gearing M, Jin LW 등. 칼륨 채널 Kv1.3은 인간 알츠하이머병에서 미세아교세포에 의해 고도로 발현됩니다. J 알츠하이머 장애 2015;44(3):797–808.
[14] Norenberg W, Gebicke-Haerter PJ, Illes P. 배양된 쥐 미세아교세포에서 염증 자극은 새로운 K 플러스 외부 전류를 유도합니다. 신경학 Lett. 1992;147 (2):171–174.
[15] Kotecha SA, Schlichter LC. 내인성 해마 미세아교세포의 Kv1.5에서 Kv1.3으로의 전환 및 증식에서의 역할. J Neurosci. 1999;19(24):10680–10693. [16] Fordyce CB, Jagasia R, Zhu X 등. Microglia Kv1.3 채널은 뉴런을 죽이는 능력에 기여합니다. J Neurosci. 2005;25(31):7139–7149.
[17] Nguyen HM, Grossinger EM, Horiuchi M, 외. 차동 Kv1.3, KCa3.1 및 Kir2.1 식은 "고전적으로" 및 "대체적으로" 활성화된 미세아교세포에서 발현됩니다. 아교세포. 2017;65(1):106–121.
For more information:1950477648nn@gmail.com