새로운 재조합 뉴캐슬병 바이러스 기반 Ovo 백신이 모체 면역을 우회하여 조기 악성 챌린지로부터 완전한 보호 제공 2부
Mar 16, 2023
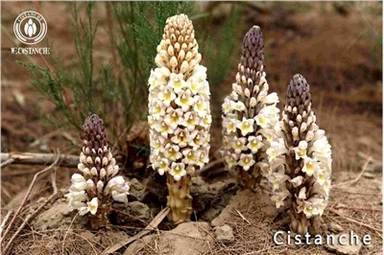
인간의 면역력 향상을 위해서는 건강과 직결되기 때문에 다방면에서 주의를 기울여야 합니다. 다이어트 측면에서 Cistanche식이 보조제를 권장합니다. Cistanche의 활성 성분은 다당류, 배당체, 알칼로이드, 플라보노이드 등입니다. 인간 면역 체계의 기능을 향상시킬 수 있으므로 신체의 저항력을 향상시키고 바이러스 및 종양과 싸우는 데 도움이 됩니다. 구체적인 효과는 다음과 같습니다.
1. 면역력 향상: Cistanche에 포함된 다당류는 인체의 면역 기능을 향상시키고 T 세포, 자연 살해 세포 및 대식 세포와 같은 면역 세포의 수와 기능을 증가시킬 수 있습니다.
2. 항 피로: Cistanche는 육체적 피로를 개선하고 체력과 지구력을 향상시키며 근육통 및 기타 불편 증상을 완화하는 데 도움이 될 수 있습니다.
3. 항산화 능력 향상: Cistanche deserticola의 플라보노이드는 항산화 효과가 높아 활성산소로 인한 세포 손상을 완화할 수 있으며 신체 건강을 보호하는 데 큰 도움이 됩니다.
4. 신진대사 촉진: Cistanche의 알칼로이드는 인간의 신진대사를 촉진하고 신체가 영양소를 더 잘 흡수하도록 돕고 세포 복구 및 재생을 돕습니다.
요컨대 Cistanche는 인간의 면역력을 향상시키고 건강을 유지하는 데 많은 이점이 있습니다. 그러나이 과정은 최상의 결과를 얻기 위해 건강한 식단과 합리적인 운동과 함께 장기적인 지속성을 요구합니다.

4. 토론
상업적인 양떼에서 백신 접종 프로그램이 광범위하게 사용되고 있음에도 불구하고, 독성 뉴캐슬병 바이러스는 전 세계적으로 계속해서 질병 발생을 일으키고 있습니다[11]. 유행의 빈번한 발생과 현재 이용 가능한 백신의 완전한 효능 부족은 아마도 백신 생성을 위한 대안적 접근법의 개발이 필요함을 나타냅니다. 여기서, 모체 면역이 높은 18-일된 상업용 계란의 체내 백신접종을 위한 안티센스 조류 IL4 삽입물 및 백본 바이러스를 포함하는 두 가지 재조합 NDV 벡터화 실험 백신의 면역원성 및 도전에 대한 보호 효능 vNDV로 평가되었습니다. 이러한 재조합 백신은 모체 면역을 효율적으로 극복하고 강력한 백신 접종 후 면역 반응을 이끌어 냈습니다. 실험용 백신은 vNDV로 초기 챌린지 후 100% 보호를 제공했습니다. 주목할 점은 닭에서 기존의 ND 백신으로 널리 사용되는 살아있는 LaSota 저독성 바이러스가 부화 후 살아남은 난자 백신을 접종한 새에서 초기 vNDV 공격 후 체액성 면역 반응을 유도하고 임상 질병으로부터 보호했다는 것입니다.
그러나 LaSota로 체내 백신 접종 후 부화 후 사망률은 LS-105.5 그룹에서 100%, LS-104.5 그룹에서 43%로 매우 높았습니다. 또한 백신을 접종하지 않은 대조군과 비교했을 때 체중에 유의한 차이가 있었고, 챌린지 후 이환율은 낮지만 8.4%였습니다. 높은 사망률과 체중 차이로 인해 이 백신은 오보 백신에 적용할 수 없습니다. 이러한 부작용은 산업 가금류 환경으로 확장할 때 상당한 경제적 손실을 초래할 것이기 때문입니다.
18 DOE에서 난내 투여된 재조합 ZJ1*L 및 ZJ1*L-IL4R 백신은 모체 유래 항-NDV 항체의 존재 하에 강력한 체액성 면역 반응을 효율적으로 유도하였다. 대부분의 백신 그룹에서 백신 접종 후 HI 항체의 역가는 부화 시 모계 면역 역가에 도달했거나 초과한 반면 대조군의 역가는 35% 감소했습니다. 모체 면역을 극복하는 ND 백신의 능력은 매우 중요합니다. 새의 백신 효능은 백신을 중화시켜 예방접종의 효과를 감소시키는 모체 유래 항체의 수준과 관련이 있기 때문입니다[18,47-49]. 모체 항체의 존재는 ND 백신을 근육내, 피하, 비강 경로를 통해 식수 및 에어로졸로 투여할 때 능동 면역의 발달을 방해하는 것으로 알려져 있습니다[9,12,18,50]. 모체 면역이 있는 닭에 결막 및 비강 경로를 통해 투여한 후 생 ND 백신의 보호 효율은 아마도 이러한 백신에 의해 유도된 국소 면역의 발달로 인해 다른 경로에 비해 덜 영향을 받았습니다[18,51].
불활성화 백신에 의해 유도된 면역은 특히 고용량을 사용할 때 모체 항체의 존재에 의해 덜 영향을 받지만[52], 이러한 백신의 한계는 점막 면역을 유도할 수 없다는 것입니다. 또한 조류 인플루엔자 단백질을 발현하는 재조합 NDV 벡터 기반 백신의 효능은 기존의 항-ND 및 항-AIV 항체가 있는 조류에 백신을 투여했을 때 감소한 것으로 입증되었습니다[53-55]. 이 연구에서, 실험용 rNDV 백신으로 백신접종된 조류에서 HI-항체 역가의 증가에 의해 제안된 바와 같이, 높은 모체 항체 수준의 존재에도 불구하고 강력한 숙주 체액성 면역 반응이 생성되었다.
재조합 ND 백신은 초기 독성 NDV 도전으로부터 보호됩니다. ZJ1*L, ZJ1*L-IL4R 또는 LS-IL4R로 백신을 접종한 모든 그룹의 새가 100% 생존한 반면, 대조군의 이환율과 사망률은 각각 80%와 33% 이상이었습니다. Hatch 및 BHI 대조군의 새는 악성 ZJ1 NDV로 챌린지되었을 때 완전히 보호되지 않았으며, rNDV 백신 그룹과 비교하여 챌린지 후 체중이 낮고 높은 수준의 이환율 및 폐사율을 나타냈습니다. log2 3 이상의 항체 역가는 일반적으로 보호적인 것으로 간주되지만[56,57], 본 연구에서 대조군 조류(13DPH에서 항체 역가 log2 4.5)에서 관찰된 높은 이환율과 사망률은 암시적입니다. 추가적인 면역 인자가 치명적인 공격으로부터 새를 보호하는 역할을 해야 한다는 것입니다. 점막 면역이 없는 경우, 모체 유래 항체만이 보호 컷오프 이상의 역가에서도 임상 질환 및 사망으로부터 완전한 보호를 제공하지 못할 수 있습니다. in-ovo 백신 접종 경로는 호흡기 및 소화관의 점막 표면에 바이러스 항원을 제공하여 점막 면역의 발달을 돕는다고 보고되었습니다[58].

이는 재조합 실험 백신으로 백신 접종된 새의 백신 접종 후 역가가 높을 뿐만 아니라 이들 그룹에서 관찰된 100% 생존을 부분적으로 설명할 수 있습니다. 이 가설을 뒷받침하기 위해서는 난자 백신을 접종한 새의 점막 면역 수준을 평가하기 위한 추가 연구가 필요합니다. rHVT-ND 백신은 완전한 보호를 제공하지 않았으며 상대적으로 높은 비율의 이환율(83.3%)과 사망률(33.4%)이 관찰되었습니다. 일부 rHVT-ND 백신으로 완전한 면역에 도달하기까지 최대 4주가 걸린다고 보고되었기 때문에 이것은 놀라운 일이 아닙니다[31,59]. 이 지연된 면역성은 벡터의 느린 생체 내 복제에 기인합니다[19]. 부화 후 항-NDV 모계 항체가 급격히 감소함에 따라[1,60], rHVT-ND 백신에 의해 유도된 보호 면역의 이 느린 발달은 닭이 vNDV 감염에 취약한 노출 창을 제시할 수 있습니다. Hatch, BHI 및 rHVT-ND 그룹에서 관찰된 임상 징후(주로 신경학적)는 모체 항체에 의해 제공될 가능성이 있는 차선의 보호를 나타냅니다.
rNDV 백신 접종 그룹에서 챌린지 전 및 챌린지 후 HI 항체 역가의 상당한 변화가 없다는 것은 이 새에서 챌린지 바이러스의 낮은 복제 및 효과적인 중화 면역이 rNDV 백신에 의해 유도되었음을 암시합니다. ZJ1*L, ZJ1*L-IL4R 및 LS-IL4R 백신 그룹 역가는 모두 시험감염 역가와 비교하여 하나의 로그 차이 내에 있었습니다. Hatch, BHI 및 rHVT-ND 대조군과 비교하여 백신접종된 그룹에서 시험감염 바이러스의 감소된 복제 효능은 rNDV 백신으로 접종된 시험감염된 조류에서 검출된 적은 양의 바이러스 RNA에 의해 추가로 뒷받침됩니다. 이는 체액성 면역이 중요한 보호 역할을 하지만 이러한 재조합 ND 백신과 함께 감작된 세포 매개 면역과 관련된 선천적 점막 면역이 공격 바이러스를 중화시키는 역할을 할 가능성이 있음을 강력히 시사합니다. 이 점을 강조하기 위해, rNDV 실험용 백신으로 예방접종된 새는 2 DPC 및 4 DPC에서 바이러스 RNA가 상당히 적게 검출되었습니다. 실제로, 2 DPC 및 4 DPC에서 DV 실험적으로 백신을 접종한 새의 25% 내지 50%는 샘플에서 바이러스 RNA를 검출할 수 없었다.
대조적으로, 도전 전과 비교하여 HI 항체 역가가 두 배로 증가한 대조 Hatch, BHI 및 rHVT-ND 그룹에서 유의한 도전 후 혈청전환이 관찰되었으며, 이는 도전 바이러스의 높은 복제를 시사한다. 따라서, 대조군 조류로부터 2 DPC 및 4 DPC에서 경구 경로를 통해 많은 양의 바이러스가 배출되는 것이 관찰되었다. 또한, 모든 rNDV 백신 접종 그룹의 챌린지 후 체중은 Hatch, BHI 및 rHVT-ND 대조군과 비교하여 균일하고 상당히 높았습니다.
유의미한 차이는 아니지만, LS-IL4R 백신에 의해 유발된 시험전 항체의 역가는 ZJ1*L-IL4R 백신에 의해 유발된 것보다 1 로그 더 낮았습니다. 이전에 항-NDV-항체가 상동 바이러스를 보다 효율적으로 중화한다고 보고되었습니다[16,17,61]. 따라서 사전 챌린지 HI 항체 역가의 차이는 ZJ1*L-IL4R 백신과 비교하여 모체 항체에 의한 LS-IL4R 백신의 보다 효율적인 불활성화의 결과일 가능성이 있습니다(LaSota는 부모를 예방접종하기 위해 사용됨).
IL4R 삽입물을 함유하는 rNDV 백신으로 18 DOE에서 백신접종된 그룹의 부화 후 생존율은 유의하게 다르지는 않았지만 용량 의존적이었다. rNDV 실험용 백신으로 백신 접종된 그룹에서 일부 부화 후 폐사율이 관찰되었지만, 사망률은 백신 용량이 감소함에 따라 감소했습니다. LS-IL4R 103.5 그룹에서 부화 후 생존율은 rHVT-ND 대조군만큼 높았다. 일부 백신 그룹의 부화 후 체중은 8 및 13 DPH에서 상당히 낮았습니다. 그러나, ZJ1*L-IL4R 104.5 및 105.5 및 LS-IL4R 103.5 그룹의 체중은 대조군에 비해 약간만 그리고 미미하게 낮았다. 이러한 최소한의 부화 후 부작용은 추가로 백신 용량을 줄임으로써 완화될 수 있습니다. LS-IL4R 백신은 낮은 103.5 용량에서 초기 독성 공격 후 100% 생존을 제공했으며, 이를 사용하는 재조합 ZJ1*L-IL4R 백신의 보호 효능 평가와 더 낮은 용량이 보증됩니다. 더욱이, 재조합 백신은 추가적인 외래 유전자를 삽입함으로써 더욱 약화될 수 있다[62].
저독성 ZJ1*L 및 LS 균주에 안티센스 조류 사이토카인 IL4를 삽입하면 백본과 재조합 실험 구조물 사이의 부화 후 사망률과 부화 후 체중의 차이에서 분명한 것처럼 이러한 바이러스를 더욱 약화시켰습니다. 독성이 낮은 NDV의 게놈에 외래 유전자를 삽입하면 부작용 없이 바이러스를 약화시키는 것으로 나타났습니다(예: 재조합 바이러스가 더 독성이 있거나 병원성이 되지 않음)[62,63]. 악성 NDV에 의한 인터페론-감마(IFN )의 발현은 바이러스를 약화시키고 SPF 닭의 이환율과 폐사율을 감소시켰습니다[40]. 대식세포 활성화를 조절하고 바이러스 복제를 억제하는 치킨 IFN은 NDV[26]를 포함한 다양한 조류 병원체[39]에 대한 보호를 개선하고 면역 반응을 강화하는 것으로 나타났습니다. 특정 폭스바이러스에 IL4를 삽입하면 병독성 증가와 같은 위험한 기능 획득이 관찰되었습니다[64]. 대조적으로, 우리의 연구는 벡터의 병독성 감소를 나타내며, 이는 바이러스 벡터와 이들이 유발하는 감염과 관련된 주요 경로 사이의 차이를 강조합니다.
사이토카인을 발현하는 조류 백신이 보호 면역을 향상시키는 것으로 제안되었지만[12], 아직 상업적으로 이용 가능한 백신 제품은 없습니다. 사이토카인은 여러 피드백 루프가 있는 균형 잡힌 면역 반응 시스템의 구성 요소입니다[19]. 특정 사이토카인의 상향 또는 하향 조절에 의해 이 시스템의 균형을 수정하면 면역 반응을 원하는 방향으로 유도할 수 있지만[39], 인터루킨, 케모카인 및 인터페론의 광범위한 스펙트럼을 정량화하기 위한 추가 연구가 필요합니다. 사이토카인 삽입물을 포함하는 백신의 전반적인 영향.
SPF 대조군의 결과는 유도된 체액성 면역, 발산, 악성 NDV에 의한 초기 감염으로부터의 생존에서 관찰된 차이가 이러한 상업용 알 부화 조류의 모체 항체 역가에 의해서만 영향을 받는 것으로 보이지 않음을 보여줍니다. Hatch, BHI 및 rHVT-ND 그룹에서 현저한 이환율, 사망률 및 혈청 전환이 있었고 현저한 임상 징후가 있는 반면, 백신을 접종한 SPF 그룹은 100% 생존하고 이환율이 없으며 챌린지 후 혈청 전환이 최소화되었습니다.

이러한 발견은 실험적으로 백신 접종을 받은 그룹에서 관찰된 보호가 난내 면역(rNDV 백신을 사용한 백신 접종)과 연결되어 있고 모체 유래 항체의 존재 또는 역가와 연결되어 있지 않다는 결론을 뒷받침하는 것으로 보입니다. 또한, 모든 백신 접종된 새에서 관찰된 활성 바이러스 발산은 투여된 새로운 백신의 성공적인 흡수를 입증합니다.
요약하면, 백신 투여의 인오보 방법의 전 세계적 사용과 가금류 산업에 대한 여러 가지 이점으로 인해[19-21], 인오보 NDV 기반 백신의 개발은 미래에 이를 제어할 수 있는 큰 가능성을 가지고 있습니다. 질병. 우리의 결과는 모체 면역을 우회할 수 있는 백신의 개발이 빠르면 부화 후 2주(모체 항체의 붕괴와 일치)에 항체 역가로 표시되는 강력한 면역 반응을 이끌어내고 임상 질병으로부터 완전한 보호를 제공하며 현저하게 감소됨을 보여줍니다. 악성 도전 후 바이러스 발산.
이것은 높은 부화 후 생존율과 초기 독성 감염 후 임상 징후로부터 완전한 보호를 제공하는 생 ND 백신의 체내 사용을 설명하는 첫 번째 보고서입니다. 이 새로운 백신은 역유전학 및 더 많은 유전자 삽입을 통해 더 낮은 용량과 추가 감쇠로 추가 테스트를 위한 훌륭한 후보입니다. 저렴한 비용과 편리한 생산, 보관 및 운송으로 인해 그러한 생 rNDV 백신은 현재의 ovo ND 백신에 대한 효율적인 대안을 제시할 수 있습니다.
보충 자료:
보충 그림 S1: (A) 재조합 구조의 도식적 표현 및 (B) 연구의 도식 및 (C) 표 표현, 보충 그림 S2: 실험용 배아 국가의 18일에 상업용 계란을 접종한 후 부화 후 닭의 생존 in ovo NDV 백신 및 대조군, 보충 그림 S3: (A) 부화 후 생존, (B) 평균 부화 후 백신 발산 역가, (C) 챌린지 전 및 후 HI 항체 역가, (D) 챌린지 후 생존 , 및 (E)는 배아 18일째에 SPF 알을 실험적 인 오보 백신으로 접종하고 부화 후 14일째에 악성 뉴캐슬병 바이러스로 챌린지한 후 챌린지 후 바이러스 발산 역가를 의미한다. SPF 계란에 계란당 ZJ1*L-IL4R 103.5 및 ZJ1*L 103.5 EID50을 접종했습니다.

저자 기여:
개념화, KMD, TLT, DW-C., TLO, QY, VCM, RMGJ, DLS 및 CLA; 방법론, KMD, TLT, CLA 및 DLS; 공식 분석, KMD, TLT, TLO 및 DW-C.; 조사, KMD, TLT, QY, DLS 및 CLA; 자원, 자금 조달 및 프로젝트 관리, DLS 및 CLA; 쓰기 - 원본 초안 준비, KMD 및 TLT; 쓰기—검토 및 편집, 모든 저자. 모든 저자는 이 원고를 검토하고 수정했으며 원고의 최종 버전을 읽고 동의했습니다. 모든 저자는 원고의 출판된 버전을 읽고 이에 동의했습니다.
자금 조달:
이 연구는 미국 농무부, ARS CRIS 프로젝트 6612-32000-072-00D의 자금 지원을 받았습니다.
기관 검토 위원회 성명서:
모든 동물 실험은 2017년 11월 20일에 승인된 동물 사용 제안 Afonso USNPRC-2020-020에 따라 USNPRC의 기관 동물 관리 및 사용 위원회의 규정에 따라 승인 및 수행되었습니다.
정보에 입각한 동의서:
적용되지 않습니다.
감사의 말:
실험용 백신의 예비 평가에 도움을 주신 Leonardo Susta에게 감사드립니다. 또한 동물 연구에 도움을 준 Roger Brock과 Keith Crawford와 원고에 대한 유용한 의견을 주신 R. Gayman Helman에게도 감사드립니다. 또한 이 연구를 위해 상업용 계란을 친절하게 기부해 주신 Hy-Line Rockside에 감사드립니다. 이 간행물에 언급된 상표명 또는 상업용 제품은 특정 정보를 제공하기 위한 것이며 미국 농무부의 추천 또는 보증을 의미하지 않습니다. USDA는 기회 균등 제공자이자 고용주입니다.
이해 상충:
저자는 이해 상충을 선언하지 않습니다.

참조
1. 수아레즈, DL; 밀러, PJ; 코흐, G.; Mundt, E.; 라우텐슐라인, S. 뉴캐슬병, 기타 조류 파라믹소바이러스 및 조류 메타뉴모바이러스 감염. 가금류 질병, 13판; Swayne, DE, Ed.; Wiley-Blackwell: 미국 뉴저지주 호보켄, 2013년; 89~138쪽. [교차 참조]
2. 바이러스 분류에 관한 국제 위원회. 바이러스 분류: 2018 릴리스.
3. Amarasinghe, GK; 메사추세츠주 에일론; 바오, Y.; 바슬러, CF; 바바리, S.; 블라스델, KR; 브리즈, T.; 브라운, 펜실베니아; Bukreyev, A.; BalkemaBuschmann, A.; 외. Mononegavirales목의 분류: 업데이트 2019. Arch. 비롤. 2019, 164, 1967–1980. [교차 참조]
4. 램, RA; 공원, GD Paramyxoviridae. In Fields Virology, 6판; Knipe, DM, Howley, PM, Eds.; Lippincott, Williams & Wilkins: 필라델피아, 펜실베니아, 미국, 2013년; 957-995쪽.
5. Czeglédi, A.; Ujvári, D.; Somogyi, E.; Wehmann, E.; 베르너, O.; Lomniczi, B. 조류 파라믹소바이러스 혈청형 1(뉴캐슬병 바이러스)의 세 번째 게놈 크기 범주 및 진화적 의미. 바이러스 해상도 2006, 120, 36–48. [CrossRef] [펍메드]
6. 세계은행 TAFS 포럼. 세계 가축 질병 아틀라스. 전 세계 동물 건강 데이터의 정량적 분석(2006–2009); 국제부흥개발은행: 미국 워싱턴 DC, 2011.
7. 디미트로프, KM; Ramey, AM; Qiu, X.; Bahl, J.; Afonso, CL 조류 파라믹소바이러스 1(뉴캐슬병 바이러스)의 시간적, 지리적 및 숙주 분포. 감염. 그 가죽. 진화 2016, 39, 22–34. [CrossRef] [펍메드]
8. 메이어스, J.; 맨스필드, KL; Brown, IH 가금류의 뉴캐슬병 위험 완화 및 통제에 있어 예방접종의 역할. 백신 2017, 35, 5974–5980. [CrossRef] [펍메드]
9. 디미트로프, KM; 아폰소, CL; 유Q; Miller, PJ 뉴캐슬병 백신 - 해결된 문제 또는 지속적인 도전? 수의사. 미생물. 2017, 206, 126–136. [CrossRef] [펍메드]
10. Senne, DA; 킹, 디제이; Kapczynski, DR 예방접종에 의한 뉴캐슬병 통제. 데브. 비올. 2004, 119, 165–170. [펍메드]
11. OIE. 세계 동물 건강 정보 데이터베이스(WAHIS 인터페이스) - 버전 1.
12. 갑옷, 북한; García, M. Viral-Vectored Recombinant Vaccines의 현재 및 미래 응용. The Poultry Informed Professional; 인구 보건학과, 조지아 대학교: 미국 조지아주 아테네, 2014년; 1~9쪽.
13. Alexander, DJ Newcastle 질병 바이러스 - 조류 Paramyxovirus. 뉴캐슬병에서; Kluwer Academic 출판사: Boston, MA, USA, 1988; 11~22쪽.
14. 알렉산더, DJ; 맨벨, RJ; 로윙스, JP; 프로스트, KM; 콜린스, 미시시피; 러셀, PH; Smith, JE 단일 클론 항체를 사용하여 조류 파라믹소바이러스 1형(뉴캐슬병 바이러스) 분리에서 검출된 항원 다양성 및 유사성. 조류 파톨. 1997, 26, 399–418. [교차 참조]
15. 밀러, PJ; 킹, 디제이; 아폰소, CL; Suarez, DL 백신 제제에 사용되는 다양한 유전자형의 뉴캐슬병 바이러스 균주 간의 항원성 차이는 악성 공격 후 바이러스 발산에 영향을 미칩니다. Vaccine 2007, 25, 7238–7246. [교차 참조]
16. 밀러, PJ; 에스테베즈, C.; 유Q; 수아레즈, DL; King, DJ 야생형 및 재조합 바이러스로 제조된 불활성화 및 생 뉴캐슬병 백신을 사용한 백신접종 후 바이러스 발산의 비교. 조류 디스. 2009, 53, 39–49. [교차 참조]
17. 샤오, S.; 나약, B.; 사무엘, A.; 팔두라이, A.; Kanabagatte Basavarajappa, M.; Prajitno, TY; 바로토, EE; 콜린스, PL; Samal, SK Generation은 현재 유행하고 있는 독성이 매우 강한 인도네시아 균주를 기반으로 하는 효과적이고 안정적이며 약독화된 뉴캐슬병 바이러스 백신의 역유전학에 의해 개발되었습니다. PLoS ONE 2012, 7, e52751. [교차 참조]
18. 캅친스키, DR; 마틴, A.; 하다드, EE; King, DJ 모체 항체 양성 닭에 항체-항원 복합 백신을 인 오보에 적용한 후 뉴캐슬병 바이러스의 세 가지 매우 독성이 강한 변종에 대한 임상 질병으로부터 보호. 조류 디스. 2012, 56, 555–560. [CrossRef] [펍메드]
19. Schat, K. 과거로 돌아가기: 벡터 백신이 미래를 나타내는가? 코넬 대학교: 미국 뉴욕주 이타카, 2015년; 1~12쪽.
20. 펜실베이니아 주 존스턴; 리우, H.; 오코넬, T.; 펠프스, P.; 블랜드, M.; Tyczkowski, J.; 켐퍼, A.; 하딩, T.; Avakian, A.; Haddad, E.; 외. ovo 기술의 애플리케이션. 새끼. 과학. 1997, 76, 165–178. [CrossRef] [펍메드]
21. 윌리엄스, CJ; Zedek, AS in ovo 응용 기술의 현장 비교 평가. 새끼. 과학. 2010, 89, 189–193. [교차 참조]
22. 웬, 지.; 리, 엘.; 유Q; Wang, H.; Luo, Q.; 장 티.; 장로; 장 W.; Shao, H. 닭을 위한 인오보 백신으로서 내열성 뉴캐슬병 바이러스 균주 TS09-C의 평가. PLoS ONE 2017, 12, e0172812. [교차 참조]
23. 아바키안, AP; 포스튼, RM; 콩, FK; 반 캄펜, KR; Tang, DC 가금류의 자동 대량 면역화: 비복제 인간 아데노바이러스 벡터화 in ovo 백신에 대한 전망. Expert Rev. Vaccines 2007, 6, 457–465. [교차 참조]
24. 웨이크넬, 추신수; 브라이언, T.; 쉐퍼, J.; Avakian, A.; 윌리엄스, C.; Whitfill, C. 칠면조/SB-1 효능 및 바이러스혈증의 헤르페스바이러스에 대한 in ovo 백신 전달 경로의 효과. 조류. 디스. 2002, 46, 274–280. [교차 참조]
25. Karaca, K.; 샤르마, JM; 윈슬로, BJ; Junker, DE; 레디, S.; Cochran, M.; McMillen, J. 닭 유형 I IFN 및 뉴캐슬 질병 바이러스 HN 및 F 유전자를 공동 발현하는 재조합 계두 바이러스: 재조합 바이러스의 난내 또는 부화 후 투여에 따른 닭의 보호 효능 및 체액 반응에 대한 IFN의 영향. Vaccine 1998, 16, 1496–1503. [교차 참조]
26. Rautenschlein, S.; 샤르마, JM; 윈슬로, BJ; McMillen, J.; 정커, D.; Cochran, M. 어쥬번트로서 인터페론을 함유하는 재조합 계두 바이러스 작제물로 뉴캐슬병 감염에 대한 칠면조의 배아 백신접종. Vaccine 1999, 18, 426–433. [교차 참조]
27. 미국 농무부, 동식물 건강 검사국. 면허를 받은 시설의 수의학적 생물학적 제품, 수의학 생물학 센터: Ames, IA, USA, 2019; 1~39쪽.
28. 에사키, M.; 고도이, A.; 로젠버거, JK; 로젠버거, SC; Gardin, Y.; 야스다, A.; Dorsey, KM 칠면조 헤르페스바이러스 벡터 뉴캐슬병 백신에 의한 보호 및 항체 반응. 조류 디스. 2013, 57, 750–755. [교차 참조]
29. Palya, V.; 키스, I.; Tatar-Kis, T.; 마토, T.; Felfoldi, B.; Gardin, Y. 뉴캐슬병에 대한 백신 접종의 발전: 재조합 HVT NDV는 높은 임상 보호를 제공하고 백신 반응이 없는 상태에서 도전 바이러스 발산을 줄입니다. 조류 디스. 2012, 56, 282–287. [교차 참조]
30. 토로, H.; 탕, DC; 수아레즈, DL; 장제이; Shi, Z. 비복제 아데노바이러스 벡터화 백신으로 조류 인플루엔자에 대한 닭 보호. Vaccine 2008, 26, 2640–2646. [교차 참조]
31. 슐츠-체리, S.; Dybing, JK; 데이비스, NL; 윌리엄슨, C.; 수아레즈, DL; 존스턴, R.; Perdue, 알파바이러스 레플리콘 시스템에 의해 발현되는 ML 인플루엔자 바이러스(A/HK/156/97) 헤마글루티닌은 홍콩에서 유래한 H5N1 바이러스에 의한 치명적인 감염으로부터 닭을 보호합니다. 바이러스학 2000, 278, 55–59. [교차 참조]
32. Mebatsion, T.; Verstegen, S.; 데 반, LT; 로머 오버도퍼, A.; Schrier, CC 낮은 수준의 V 단백질 발현을 갖는 재조합 뉴캐슬병 바이러스는 면역원성이고 닭 배아에 대한 병원성이 부족합니다. J. 비롤. 2001, 75, 420–428. [교차 참조]
33. 스틸, J.; 버마키나, SV; 토마스, C.; Spackman, E.; Garcia-Sastre, A.; 스웨인, 델라웨어; Palese, P. 조류 인플루엔자 바이러스 및 뉴캐슬병 바이러스에 대한 조합 인오보 백신. Vaccine 2008, 26, 522–531. [교차 참조]
34. 아마드, J.; Sharma, JM 뉴캐슬병으로부터 닭을 보호하기 위해 난내 투여된 변형된 생 바이러스 백신의 평가. 오전. J. Vet. 해상도 1992, 53, 1999–2004. [펍메드]
35. Ge, J.; 왕, X.; Tian, M.; 웬, Z.; Feng, Q.; 치, X.; 가오, H.; 왕, X.; Bu, Z. Novel in-ovo 키메라 재조합 뉴캐슬병 백신은 뉴캐슬병과 전염성 점액낭병 모두를 예방합니다. 백신 2014, 32, 1514–1521. [CrossRef] [펍메드]
36. 램프, K.; Topfstedt, E.; Wackerlin, R.; 호퍼, D.; 질러, M.; Mettenleiter, TC; 그룬드, C.; Romer-Oberdorfer, A. in ovo 백신접종 후 상이한 재조합 뉴캐슬병 바이러스 클론 30 변이체의 병원성 및 면역원성. 조류 디스. 2012, 56, 208–217. [CrossRef] [펍메드]
37. 딜라베리스, D.; 첸, C.; 카이저, P.; Russell, PH 뉴캐슬병 바이러스에 대한 in ovo 백신의 안전성과 면역원성은 두 종류의 닭에서 다릅니다. Vaccine 2007, 25, 3792–3799. [CrossRef] [펍메드]
38. 마르카노, VC; Cardenas-Garcia, S.; 딜, DG; 안토니아시 다 실바, LH; 고갈, RM; 밀러, PJ; 브라운, CC; 엉덩이, SL; Goraichuk, IV; 디미트로프, KM; 외. 새로운 재조합 뉴캐슬 질병 백신은 악성 공격에 대한 지속적인 보호로 Ovo 백신 접종 후 생존율을 향상시킵니다. 백신 2021, 9, 953. [CrossRef] [PubMed]
39. 카르데나스 가르시아, S.; 던우디, RP; 마르카노, V.; 딜, DG; 윌리엄스, RJ; 고갈, RM; 브라운, CC, Jr.; 밀러, PJ; Afonso, CL 치킨 인터페론 감마가 뉴캐슬병 바이러스 백신 면역원성에 미치는 영향. PLoS ONE 2016, 11, e0159153. [CrossRef] [펍메드]
40. 수스타, L.; Cornax, I.; 딜, DG; 가르시아, SC; 밀러, PJ; 리우, X.; Hu, S.; 브라운, CC; Afonso, CL 뉴캐슬병 바이러스의 고독성 균주에 의한 인터페론-감마의 발현은 닭에서 그 병원성을 감소시킨다. 미생물 파톡. 2013, 61–62, 73–83. [교차 참조]
41. 에스테베즈, C.; 킹, D.; 인감, B.; Yu, Q. mesogenic 재조합 바이러스 백본과 관련하여 velogenic 균주의 hemagglutinin-neuraminidase 단백질을 발현하는 Newcastle 질병 바이러스 키메라의 평가. 바이러스 해상도 2007, 129, 182–190. [CrossRef] [펍메드]
42. Senne, DA 부화란에서의 바이러스 번식. 조류 병원균의 분리, 식별 및 특성화를 위한 실험실 매뉴얼, 5판; Dufour-Zavala, L., Swayne, DE, Glisson, JR, Pearson, JE, Reed, WM, Jackwood, MW, Woolcock, PR, Eds.; 미국 조류 병리학자 협회: Athens, GA, USA, 2008; 204~208쪽.
43. 미국 농무부, 동식물 건강 검사국. 마렉 혈청형 3의 적정을 위한 보충 검정 방법; USDA/CVB, SAM 407.05; 수의학 생물학 센터: Ames, IA, USA, 2014; 1-10쪽.
44. Das, A.; Spackman, E.; Pantin-Jackwood, 엠제이; Suarez, DL RT-PCR에 의한 조류 인플루엔자 바이러스 진단 개선을 위한 배설강 면봉 샘플 및 조직과 관련된 실시간 역전사 중합효소 연쇄 반응(RT-PCR) 억제제 제거. J. Vet. 진단 투자. 2009, 21, 771–778. [CrossRef] [펍메드]
45. 와이즈, MG; 수아레즈, DL; 인감, BS; 페더슨, JC; 세네, DA; 킹, 디제이; Kapczynski, DR; Spackman, E. 임상 시료에서 뉴캐슬병 바이러스 RNA 검출을 위한 실시간 역전사 PCR 개발. J. 클린. 미생물. 2004, 42, 329–338. [교차 참조]
46. OIE. 뉴캐슬 질병, 생물학적 표준 위원회. 육상 동물을 위한 진단 테스트 및 백신 매뉴얼: 포유류, 조류 및 벌, 7판; 세계동물보건기구: 파리, 프랑스, 2012년; 555~574쪽
47. Vrdoljak, A.; 할라스, M.; Suli, T. 모체 유래 항체의 존재 하에 뉴캐슬병에 대한 육계의 백신접종. Tierarztl. 프랙스. 8월 G Grosstiere/Nutztiere 2017, 45, 151–158. [교차 참조]
48. 웨스트버리, HA; 파슨스, G.; Allan, WH 닭의 뉴캐슬병 바이러스주 V4, Hitchner B1 및 La Sota의 면역원성 비교. 2. 바이러스에 대한 모체 항체가 있는 닭을 대상으로 테스트합니다. Aust. 수의사. J. 1984, 61, 10–13. [교차 참조]
49. 캅친스키, DR; King, DJ 2002년 캘리포니아 외래종 뉴캐슬병 발발의 고독성 바이러스로 도전 시 상업적으로 이용 가능한 뉴캐슬병 바이러스 백신으로 백신 접종 후 명백한 임상 질병에 대한 닭의 보호 및 바이러스 발산의 결정. Vaccine 2005, 23, 3424–3433. [교차 참조]
50. 소노다, K.; Sakaguchi, M.; 오카무라, H.; Yokogawa, K.; Tokunaga, E.; Tokiyoshi, S.; Kawaguchi, Y.; Hirai, K. 모체 항체가 있는 상업용 닭에서 재조합 마렉병 바이러스 1형에 기초한 마렉병 및 뉴캐슬병 모두에 대한 효과적인 다가 백신 개발. J. 비롤. 2000, 74, 3217–3226. [교차 참조]
51. 엘라자브, MF; 후쿠시마, Y.; Fujita, Y.; 호리우치, H.; Matsuda, H.; Furusawa, S. 특정 모체 항체가 있는 상태에서 면역 항원의 최적 용량에 의한 병아리의 면역 억제 유도. J. Vet. 중간 과학. 2010, 72, 257–262. [교차 참조]
52. Lancaster, JE 3장: 제어 조치. 살아있는 백신과 불활성화 백신을 비교했습니다. 뉴캐슬 질병: 리뷰 1926–1964 모노그래프 3번; 캐나다 농무부: Ottawa, ON, Canada, 1966; 80-115쪽.
53. 포크너, OB; 에스테베즈, C.; 유Q; Suarez, DL 조류 인플루엔자 백신 접종 후 모델 모체 항체로 닭의 수동 항체 전달. 수의사. 면역. 면역 병리학. 2013, 152, 341–347. [교차 참조]
54. 사르파티-미즈라히, D.; Lozano-Dubernard, B.; Soto-Priante, E.; 카스트로-페랄타, F.; 플로레스-카스트로, R.; Loza-Rubio, E.; Gay-Gutierrez, M. 모체 항체 수준이 높은 육계에서 H5N2 고병원성 조류 인플루엔자 바이러스 및 강인성 내장성 뉴캐슬병 바이러스에 대한 재조합 뉴캐슬병 LaSota-조류 인플루엔자 바이러스 H5 백신의 보호 용량. 조류 디스. 2010, 54, 239–241. [교차 참조]
55. 슈로어, D.; Veits, J.; Keil, G.; 로머 오버도퍼, A.; 웨버, S.; Mettenleiter, TC 닭과 칠면조에서 뉴캐슬병 및 저병원성 조류 인플루엔자에 대한 조류 인플루엔자 바이러스 H6 헤마글루티닌을 발현하는 뉴캐슬병 바이러스 재조합체의 효능. 조류 디스. 2011, 55, 201–211. [교차 참조]
56. 반 보벤, M.; 부마, A.; 파브리, TH; 카츠마, E.; Hartog, L.; Koch, G. 백신접종에 의한 가금류의 뉴캐슬병 바이러스에 대한 Herd 면역. 조류. 파톨. 2008, 37, 1–5. [교차 참조]
57. 알렉산더, DJ; 벨, JG; Alders, RG A 기술 검토: 마을 닭에 미치는 영향을 특별히 강조한 뉴캐슬병; FAO: 로마, 이탈리아, 2004; 1~26쪽.
58. Jochemsen, P.; Jeurissen, SH 닭에 용해성 및 미립자 물질을 주입한 인오보의 국소화 및 흡수. 새끼. 과학. 2002, 81, 1811–1817. [CrossRef] [펍메드]
59. Palya, V.; Tatar-Kis, T.; 마토, T.; Felfoldi, B.; Kovacs, E.; Gardin, Y. 상업적 계층에서 칠면조 헤르페스 바이러스 벡터 ND 백신을 사용한 단일 백신 접종으로 제공되는 면역의 시작 및 장기 지속 기간. 수의사. 면역. 면역 병리학. 2014, 158, 105–115. [교차 참조]
60. 알렉산더, DJ 역사적 측면. 뉴캐슬병에서; Kluwer Academic 출판사: Boston, MA, USA, 1988; 1-10쪽.
61. 밀러, PJ; 아폰소, CL; El Attrache, J.; Dorsey, KM; 코트니, SC; Guo, Z.; Kapczynski, DR 도전 바이러스의 배출 및 전파에 대한 뉴캐슬병 바이러스 백신 항체의 효과. 데브. 비교 면역. 2013, 41, 505–513. [CrossRef] [펍메드]
62. 미시시피 박; 스틸, J.; Garcia-Sastre, A.; 스웨인, D.; Palese, P. 이중 특이성: 조류 인플루엔자 및 뉴캐슬병을 가진 조작된 바이러스 백신 구조. 절차 Natl. Acad. 과학. USA 2006, 103, 8203–8208. [CrossRef] [펍메드]
63. Veits, J.; Wiesner, D.; Fuchs, W.; 호프만, B.; Granzow, H.; 스타릭, E.; Mundt, E.; Schirrmeier, H.; Mebatsion, T.; Mettenleiter, TC; 외. H5 헤마글루티닌 유전자를 발현하는 뉴캐슬병 바이러스는 뉴캐슬병 및 조류 인플루엔자로부터 닭을 보호합니다. 절차 Natl. Acad. 과학. USA 2006, 103, 8197–8202. [교차 참조]
64. 스탠포드, MM; McFadden, G. '슈퍼바이러스'? 폭스바이러스를 표현하는 IL-4-의 교훈. 동향 Immunol. 2005, 26, 339–345. [교차 참조]
For more information:1950477648nn@gmail.com