비만 관련 신장 질환에서 MicroRNA의 역할
Mar 09, 2023
추상적인:
비만은 주요 글로벌 건강 문제이며 신장 기능 저하의 상당한 위험과 관련이 있습니다. 비만의 합병증 중 하나인 비만 관련 신병증은 신장의 구조적 및 기능적 손상을 특징으로 하며 전 세계적으로 이환율과 사망률에 중요한 기여 요인 중 하나입니다. 고지혈증과 지방독성을 신장 손상과 연관시키는 데이터가 증가하고 있음에도 불구하고 신장 손상을 일으키는 분자 메커니즘에 대한 이해는 거의 없습니다. MicroRNA(miRNA)는 유전자 발현의 전사 후 조절에 중요한 기능을 하는 내인성으로 생성된 작은 비암호화 RNA 분자입니다. miRNA는 많은 기관에서 다양한 생리학적 및 병리학적 과정의 중요한 조절자로 입증되었으며 신장도 그중 하나입니다. 이 리뷰에서는 비만 관련 신장 병리학의 병인에서 miRNA의 기능적 역할에 초점을 맞춘 miRNA의 개요를 제시합니다. 우리는 비만 관련 신증에서 miRNA 매개 신호 전달에 관한 새로운 발견을 설명하고 신장 질환에서 miRNA의 치료 적용의 장점과 미래 전망을 강조합니다.
방해하다:
신장은 타고난 근본이고 건강의 뿌리이며 생명의 원동력입니다. 한의학 이론에 따르면 오미(五味)는 오장(五臟)에 해당한다. 쓴맛은 심장에 들어가고 단맛은 비장에 들어가고 신맛은 간장에 들어가고 매운 것은 폐에 들어가고 짠맛은 신장에 들어간다.” 짠맛은 신장에 해당한다. 예를 들어 약재와 식품과 같은 기원을 가지고 있는 Cistanche Herba는 달고 약간 짜며 허리와 무릎이 아프고 허약하며 손발이 차고 장건조와 변비 등이 있다. 신장 기능을 향상시키고 영양 신장 양과 같은 신장을 보호할 수 있습니다.
키워드:
마이크로RNA; 비만; 신장; 고지혈증; 지방독성; 비만 관련 신장 질환; 염증; 치료제; 신장 보호
1. 소개
비만은 급증하는 세계적인 전염병이며 만성 신장 질환(CKD)의 발병 및 진행에 중요한 위험 요소를 나타냅니다. 실제로 비만의 합병증 중 하나인 비만 관련 신증의 발병률은 지난 몇 년 동안 10-배 증가했습니다[1]. 증가된 지방 침착은 전신 및 만성 염증, 레닌-안지오텐신-알도스테론 시스템(RAAS)의 변화, 활성산소종(ROS) 생성, 신장의 혈역학적 및 형태학적 변화로 이어질 수 있습니다[2-5]. 이러한 모든 상호 의존적 과정은 결과적으로 신장 기능의 저하 및 말기 신장 질환(ESRD)으로의 진행으로 이어질 수 있습니다. 지방 축적 및 지방 독성과 신장 손상을 연관시키는 수많은 보고에도 불구하고 비만 관련 신장 손상의 발생을 담당하는 기본 경로는 완전히 이해되지 않았습니다.
miRNA는 유전자 발현 조절에 중요한 역할을 하는 짧은 비암호화 단일 가닥 RNA 분자입니다. miRNA는 근본적인 생물학적 과정에 관여하는 것으로 보고되었으며, 따라서 정상적인 장기 발달과 항상성에 필수적인 역할을 합니다[6,7]. 또한 miRNA는 암, 자가면역질환, 심혈관 및 신장 질환과 같은 다양한 병리생리학적 상태에서 중요한 역할을 하는 것으로 확인되었습니다[8-10]. 길이가 작고 구성이 알려진 고도로 보존된 뉴클레오티드 서열과 같은 고유한 특성으로 인해 miRNA는 miRNA 관련 질병에 대한 새로운 치료법 개발을 위한 잠재적 기반을 나타냅니다.
본 리뷰는 비만 관련 신병증의 발병기전에서 miRNA의 역할과 신장에서 miRNA 매개 반응에 관여하는 신호 전달자에 대한 현대 지식을 탐구합니다. 우리는 miRNA를 잠재적인 치료 개입을 위한 표적으로 사용하는 것에 대한 현대 연구 결과를 요약하여 신장 질환에서 이러한 작은 비암호화 RNA 분자의 치료적 사용의 이점과 미래 전망을 강조합니다.
2. miRNA: 생물 발생 및 작용 메커니즘
MicroRNA(miRNA)는 작은 내인성, 비암호화, 단일 가닥 RNA 분자로 평균 길이가 22개 뉴클레오티드이며 종 전체에 걸쳐 고도로 보존된 서열이 있습니다[11]. miRNA는 메신저 RNA(mRNA)의 전사 후 처리를 통해 유전자 발현 조절에 중요한 역할을 하는 것으로 보고되었습니다[12]. 그러나 전사 유전자 활성화 또는 침묵에 관여하는 것도 설명되었습니다[13]. 약 2700개의 성숙한 miRNA가 인간에서 확인되었으며[14], 축적된 증거는 대부분의 인간 유전자가 miRNA에 의해 조절될 수 있음을 나타냅니다[15]. 단일 miRNA는 서로 다른 세포 경로에 관여하는 ~200개 mRNA를 조절할 수 있으며, 하나의 mRNA 전사물은 서로 다른 miRNA에 의해 동시에 조절될 수 있습니다[15,16].
2.1. miRNA의 생합성
miRNA의 생물 발생은 엄격한 시공간적 통제하에 있으며 합성의 모든 단계의 조절 장애는 많은 인간 질병과 관련이 있습니다. 생물 발생 과정은 대부분 2개의 RNase 효소인 Drosha와 Dicer가 중요한 역할을 하는 정식 경로를 따릅니다. 그러나 Drosha 또는 Dicer와 독립적인 대체 비정규 경로의 존재도 설명되었습니다[13]. 증거는 보존된 miRNA의 약 1%가 이러한 대체 경로를 통해 생성되며 [17] 비정규 miRNA 중 일부는 다양한 인간 질병에 관여하는 것으로 보고되었습니다 [13]. 검토의 이 섹션에서는 정식 miRNA 생합성 경로에 집중할 것입니다.
miRNA 형성은 핵에서 게놈 DNA 전사로 시작됩니다(그림 1). 이 과정은 말단 루프가 있는 1차 miRNA 전사체(pri-miRNA)의 형성을 담당하는 RNA 중합효소 II(RNA Pol II)에 의해 촉매됩니다. 다음 단계에서 pri-miRNA는 RNase III Drosha와 DGCR8(DiGeorge 증후군 임계 영역 8) 보조인자에 의해 형성된 마이크로프로세서 복합체에 의해 인식되고 절단되어 최종적으로 전구체 miRNA(pre-miRNA)라고 하는 더 짧은 헤어핀을 생성합니다[18 ]. Pre-miRNA는 성숙을 완료하기 위해 -5 RanGTP 복합체를 내보내는 방식으로 세포질로 내보내집니다. 세포질에서 pre-miRNA는 RNAase III 효소 Dicer와 transactivating 반응 RNA 결합 단백질인 TRBP로 구성된 Dicer-TRBP 복합체에 의해 인식됩니다[17].
이 복합체는 약 22 nt의 작은 miRNA 듀플렉스를 생성하는 pre-miRNA의 말단 루프를 절단합니다[18,19]. . miRNA 듀플렉스는 이어서 Argonaute protein 2(AGO)에 로드되어 pre-RISC(RNA-induces silencing) 복합체를 형성합니다[17]. pre-RISC 복합체 내에서 miRNA 듀플렉스는 풀리고 한 가닥만 성숙한 RISC 복합체를 거의 30 -비번역 영역(30UTR)의 상보적 서열로 이끄는 "가이드" 가닥으로 기능합니다. 표적 mRNA는 단백질 번역에 직접적인 영향을 미칠 것입니다[17]. miRNA 듀플렉스의 나머지 "패신저(passenger)" 가닥은 비활성 및 덜 풍부한 miRNA를 생성하고 이후 폐기됩니다[17]. 두 팔 모두 성숙한 miRNA를 생산할 수 있다고 생각되지만 팔 중 어느 것이 선택될지는 다양한 조건에 따라 다릅니다. 이 선택을 "암 스위칭"이라고 합니다[20].
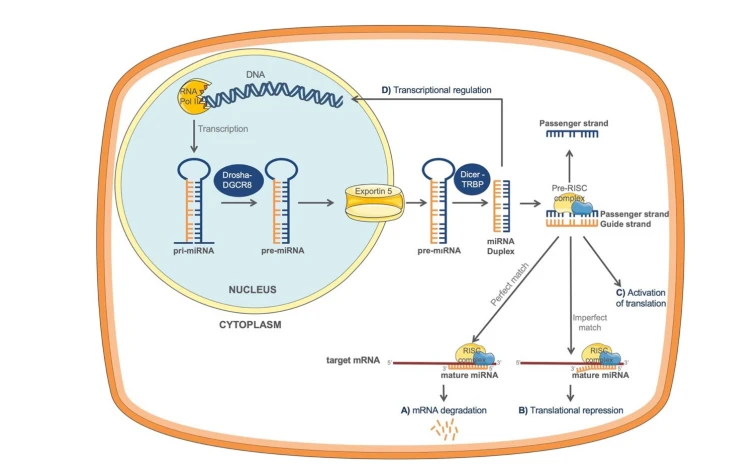
그림 1. miRNA 생합성 및 전사 후 유전자 조절 메커니즘. 핵에서 게놈 DNA는 RNA 중합 효소 II에 의해 전사되어 pri-miRNA를 형성합니다. pri-miRNA는 RNase III Drosha와 DGCR8로 구성된 복합체에 의해 인식되고 절단되어 pre-miRNA를 생성합니다. Pre-miRNA는 -5 RanGTP 내보내기에 의해 세포질로 내보내지고 Dicer-TRBP에 의해 더 절단되어 miRNA 듀플렉스를 생성합니다. 이 듀플렉스는 pre-RISC 복합체에 로드되며, 결과적으로 단 하나의 가닥("가이드 가닥")만 남아 RISC 복합체를 형성합니다. 가이드 가닥은 성숙한 RISC 복합체를 표적 mRNA의 근처 30 UTR 상보적 서열로 이끌 것입니다. miRNA와 표적 mRNA가 완벽하게 일치하면 직접적인 mRNA 분해가 발생합니다(A).
또는 miRNA와 표적 mRNA 사이의 불완전한 일치는 번역 억제 및 표적 유전자의 단백질 수준 감소로 이어질 것입니다(B). 특정 조건에서 miRNA는 표적 mRNA(C)의 번역을 활성화할 수 있습니다. miRNA는 또한 유전자 프로모터 내의 miRNA 결합 부위를 통해 표적 유전자를 침묵시키거나 활성화함으로써 유전자 전사(D)를 조절하는 핵에서 발견될 수 있습니다. DGCR8, 디조지 증후군 임계 영역 8 보조인자; TRBP, transactivating 응답 RNA 결합 단백질.
2.2. 유전자 발현의 miRNA 매개 조절 메커니즘
miRNA는 세포질에서 전사 후 조절을 통해 다양한 세포 과정에서 중요한 조절 역할을 합니다[12]. 그러나 특정 성숙한 miRNA는 전사 유전자 침묵 또는 활성화에서 역할을 할 수 있는 핵 내에서도 발견되었습니다[12]. 전사 후 조절 동안 miRNA와 표적 mRNA 사이의 염기 상보성은 주로 miRNA의 시드 영역과 mRNA의 30 -비번역 영역(30UTR)의 상보적 서열을 통해 발생합니다[18]. 시드 영역은 miRNA의 50 말단의 처음 2-8 또는 1-8 염기 내의 6-mer 또는 7-mer 서열로, 표적 mRNA를 인식할 수 있습니다[21].
표준 시드 영역 외에도 miRNA 4-10 위치 내의 6-mer 시퀀스를 나타내는 확장된 시드 영역이 발견되었습니다[21]. 이 6-mer 시퀀스는 정식 시드와 부분적으로 겹치며 둘 다 비슷한 높은 비율로 목표를 일치시킬 수 있다고 보고되었습니다[21]. miRNA와 mRNA의 30UTR 영역 사이에 가장 많이 기술된 상보성이 보고되었지만 miRNA가 50UTR 또는 표적 mRNA의 코딩 영역에 결합하는 것도 관찰되었습니다[10].
다른 miRNA 작용 메커니즘을 구별할 수 있습니다. 한편으로, miRNA와 표적 mRNA 30UTR 사이의 완벽한 일치는 직접적인 mRNA 분해로 이어질 수 있는 반면(그림 1A), 반면에 불완전한 일치는 변환 억제(그림 1B) 및 단백질 감소를 유발할 수 있습니다. 표적 유전자의 수준[22]. 흥미롭게도 특정 조건에서 miRNA가 표적 mRNA의 번역을 활성화할 수도 있다는 것이 설명되었습니다(그림 1C)[23].
최근 데이터는 특정 miRNA가 유전자 프로모터 내의 miRNA 결합 부위를 통해 표적 유전자를 침묵시키거나 활성화함으로써 유전자 전사를 조절하는(그림 1D) 핵에서 발견될 수 있음을 시사합니다[13]. miRNA의 핵 위치를 이해하기 위해서는 더 많은 연구가 필요하지만 이 과정을 설명할 수 있는 다른 메커니즘이 최근에 제안되었습니다. 핵 내 [13,24].
miRNA의 발현 패턴은 세포 및 조직에 따라 다를 수 있습니다. miRNA는 정상적인 발달과 장기 항상성에 필수적이며 증식, 분화, 세포사멸 및 대사와 같은 기본적인 세포 과정에 관여합니다[6,7]. 또한 miRNA는 암, 심혈관 질환, 자가 면역 및 신장 질환과 같은 다양한 병리학적 상태에 관여합니다[8-10].

3. 신장 생리학 및 질병에서의 miRNA
miRNA는 배아 및 성인 신장 조직에서 검출되었으며 신장 발달 및 항상성에 중요한 역할을 하는 것으로 나타났으며 조절 완화는 다양한 신장 질환과 관련이 있습니다.
miRNA 발현 프로파일링 연구에서 miR-192, miR-194, miR-204, miR-215, miR-216 [25], miR{{6} }a, miR-886 [7]은 다른 조직에 비해 신장에서 우선적으로 발현되었다. 또한 let{9}}ag, miR-10a/b, miR-21, miR-30ae, miR-130, miR{{16} }, miR-196a/b, miR-200a 및 miR-872도 신장 조직에서 발현되는 것으로 확인되었습니다[26].
최근 연구는 신장 발달 조절에서 miRNA의 중요한 역할을 제안했습니다. 즉, miR-17 및 106b[27]와 같은 Dicer 의존성 miRNA는 네프론 생존에 필수적인 것으로 입증되었으며[28,29], pre-miR 처리 효소인 Dicer1의 조건부 돌연변이는 신장 상피 또는 간질은 신생에 상당한 결함을 일으켰습니다[28]. 신장 항상성과 구조의 조절에서 다양한 miRNA의 역할을 지적하는 몇 가지 증거가 있습니다[6,30]. Bijkerk et al. [31]은 miR-132이 체수분 균형[31]과 염 의존성 정상 상태 레닌 수치[32]의 조절에 중요한 역할을 하므로[32] RAAS의 조절에 참여한다는 것을 보여주었습니다. RAAS는 신장 염, 수분 보존 및 혈압 관리에 필수적입니다[32].
중요한 것은 miRNA 발현의 변화가 RAAS 경로의 구성 요소에 영향을 미치는 것으로 나타났습니다[33]. miR-466a/b/c/e 계열은 알도스테론(ALDO)에 의해 규제되며 장기적인 ALDO 신호를 줄이는 부정적인 피드백 루프에 기여합니다. 따라서 miR-466a/b/c/e 계열은 알도스테론에 민감한 조직을 과도한 ALDO 노출로부터 보호하고 [33] 신장 항상성에 중요한 역할을 합니다. 또한 miR-6869- 5p는 RAAS 캐스케이드의 조절기로도 설명되었습니다[34]. 또한, miR-181 및 miR-663는 사구체근접 세포에서 레닌 발현을 조절하는 것으로 나타났습니다[35-37]. miR-200b 및 miR-717는 전해질 항상성 유지에 필수적이며[38], miR-192는 신장 상피 세포에서 나트륨 수송을 조절합니다[39,40]
신세뇨관간질 섬유증(TIF)은 신장 실질의 파괴를 특징으로 하는 해로운 과정이며 [41] CKD 진행의 주요 경로를 나타냅니다 [42]. 수많은 연구가 신장 섬유증에서 miRNA의 역할을 지원했습니다. 예를 들어, miR-29a 계열의 수준은 섬유증의 영향을 받는 신장 조직에서 감소하는 것으로 나타났습니다[8,18,43]. Chau 등의 연구. miR-21은 신장 섬유증 및 당뇨병성 신장병증에서 상향 조절되는 반면, miR-21 녹아웃 마우스는 일측성 요관 폐쇄(UUO) 또는 허혈-재관류 손상 후에 더 적은 신장 병변을 나타냈다고 보고했습니다[44]. miR-200 계열, miR-214, miR-199, miR-382, miR-133, miR-212 [15] , mir-433 및 miR-192 [45], miR-184 [8] 및 miR-30 계열 [15]도 이 프로세스에 관여하는 것으로 입증되었습니다. 신장 섬유화 및/또는 신장 TIF 발병의 주요 메커니즘 중 하나인 세뇨관 상피-중간엽 전이(EMT)[46,47].
당뇨병성 신증(DN)은 진행성 신장 질환으로 이어질 수 있는 제1형 및 제2형 당뇨병의 알려진 합병증입니다. miR-21, miR-25 및 mir-29 계열, miR-34a{{6 }}p, miR-141, miR-184, miR-370, miR-377, miR-503, let-7 가족, miR{{ 13}}, miR-126, miR-130b, miR-192, miR-424 및 miR-146a 등 [8 ]. 예를 들어, miR-192은 당뇨병 쥐의 사구체에서 증가된 발현을 보인 반면[48], 섬유증 동안 신장 근위 세뇨관 상피 세포에서는 감소했습니다[49]. DN의 마우스 모델에서 영향을 받은 신장에서 miR-141이 감소하여 TGF- 1가 증가하고 신장 섬유증이 발생했습니다[50]. miR-503은 당뇨병성 내피 기능 장애에 관여하며[51], 그것의 과발현은 또한 족세포 손상을 일으켰습니다[52]. 최근 데이터는 당뇨병 환자의 말초 혈액에서 miR-25 [53] 및 miR-126 [54]의 낮은 수준을 보고했습니다.
또한, Lv et al. [55]는 DN 환자의 혈장에서 miR-130b의 감소를 입증했으며 이 miRNA를 DN의 잠재적인 예측 인자로 제안했습니다[55]. Wang et al. [56] 건강한 신장과 비교하여 1형 DN에 의해 영향을 받는 신장 조직에서 miR-424의 현저한 감소를 기술한 반면, miR의 상향 조절은 세포사멸을 억제하고 신장의 병리학적 변화를 감소시켰습니다[56]. 유사하게, mir-146a는 당뇨병 환자의 사구체에서 감소하고 사구체 손상의 발달 및 신장 기능 저하에 관여한다[57]. 또한 miR-377은 DN 동안 마우스 메산지움 세포에서 과발현됩니다[58].
신장 TIF, 급성 신장 손상, DN, 루푸스 신염, IgA 신병증, 다낭성 신장 질환 등과 같은 신장의 병리학적 상태뿐만 아니라 신장 발달 및 생리학에서 miRNA의 역할은 이미 다른 곳에서 광범위하게 검토되었습니다. 7,8,59,60]. 따라서 이 리뷰에서는 비만 관련 신장 질환에서 miRNA의 잠재적인 역할에 관심을 집중할 것입니다.
4. 비만 관련 신장 질환
비만은 증가하는 세계적인 유행병이며 세계의 주요 건강 문제입니다. 급속한 라이프스타일 변화로 인해 비만 및 비만 관련 합병증의 유병률은 지난 20년 동안 극적으로 증가했습니다. 비만은 CKD 발병 및 ESRD로의 진행에 대한 독립적인 위험 인자임이 입증되었습니다[61,62]. Framingham 심장 연구 코호트의 조기 관찰은 높은 체질량 지수(BMI)와 높은 CKD 위험 사이의 연관성을 보여주었습니다[63]. 비만은 신장의 형태학적 및 혈역학적 변화를 유발할 수 있으며[64], 이는 신장 염증[65] 및 산화 스트레스[4]와 함께 신장 기능 저하 및 이후 사구체 경화증 및 신장 TIF로 이어질 수 있습니다[64,66].

4.1. 신장에 대한 비만의 영향
상당량의 체지방은 일반적으로 지방 조직(AT)에 트리글리세리드 형태로 저장됩니다[67,68]. 활성 대사 내분비 기관으로서 AT는 전신 에너지 균형의 변화를 감지하고 자가분비 및/또는 측분비 조절 메커니즘을 통해 [69] 에너지 항상성 조절에 적극적으로 참여합니다. 전체 AT 저장소를 초과하자마자 순환 지질은 신장을 포함한 비지방 조직에 이소적으로 축적되기 시작하여 지방독성으로 알려진 과정을 통해 조직 손상에 기여합니다[68,70]. 또한 AT의 비정상적 비대는 혈청 leptin, resistin 및 visfatin의 증가와 adiponectin의 감소로 보이는 adipocytokine 분비 패턴의 변화로 이어질 것입니다. 기능 장애(그림 2). 비정상적인 지질 수치가 신장 질환의 진행에 기여할 수 있는 가능한 메커니즘은 지질 신독성 가설을 제안한 Moorhead et al.에 의해 처음 설명되었습니다[72]. 즉, 신장에는 renal proximal tubular epithelial cells (RPTECs), podocytes, mesangial cells과 같은 지질 축적에 특히 민감한 특정 유형의 세포가 있습니다.
특히 RPTEC는 근위 세뇨관이 거의 전적으로 지방을 에너지원으로 사용하기 때문에 지질 과부하에 가장 민감한 것으로 보입니다. 실제로 지질은 에너지의 중요한 공급원이자 저장소이며 거의 모든 살아있는 세포에서 세포 내 및 세포 간 신호 전달에 필수적인 역할을 합니다. 그러나 내인성 신장 세포와 같이 큰 지질 화물을 처리할 수 있는 적절한 분자 기계가 없는 세포에 지질이 축적되면 [74,75] ROS 생성과 같은 다른 이펙터 메커니즘을 활성화하여 신장 손상 및 기능 장애를 일으킬 수 있습니다 [2], 레닌-안지오텐신-알도스테론 활성의 손상[3], 전 염증 및 전 섬유화 인자의 분비[4], 인슐린 저항성[3](그림 2). 이러한 자체적으로 지속되는 이차적 사건은 결과적으로 신장 구조 및 기능의 점진적인 손상으로 이어집니다.
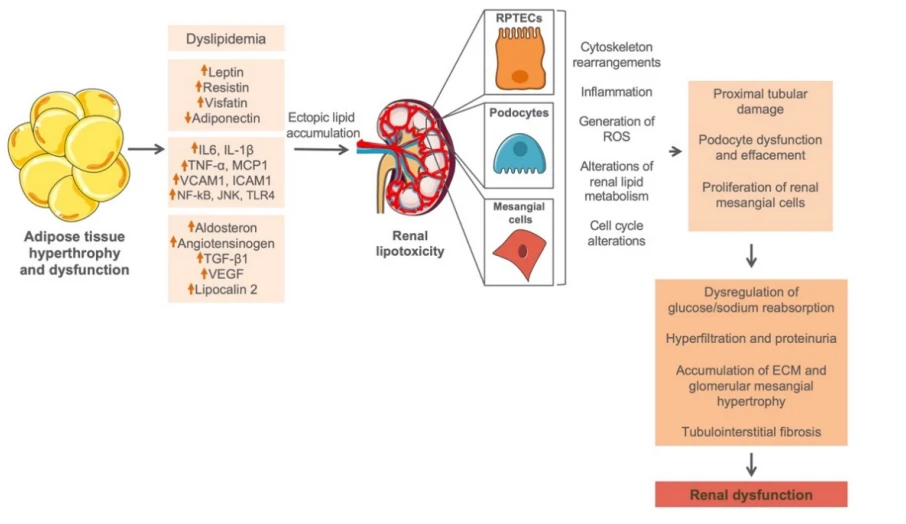
그림 2. 정상적인 신장 기능에 대한 비만의 영향. 비만에서 지방 조직의 비정상적인 비대는 지방 독성으로 알려진 과정을 통해 조직 손상에 기여하는 신장에서 순환 지질의 이소성 축적뿐만 아니라 다른 지방 사이토카인, 염증 및 섬유화 매개변수의 발현 변화로 이어질 수 있습니다. RPTECs, podocytes 및 mesangial 세포는 큰 지질 과부하를 처리하기 위한 적절한 기계를 갖추고 있지 않습니다. 따라서 이들 세포에 지질이 축적되면 ROS 생성, 레닌-안지오텐신-알도스테론 활성의 손상, 전염증 및 섬유화 촉진 인자의 분비, 인슐린 저항성을 동반하는 세포 기능 장애로 이어질 것입니다. 이러한 자기 영속적인 2차 사건은 이후에 신장 세포의 추가 손상과 신장 구조 및 기능의 진행성 손상으로 이어질 수 있습니다. RPTECs, 신장 근위 세뇨관 상피 세포; ROS, 활성산소종; ECM, 세포외 기질.
4.2. 비만관련 신장질환의 특성
비만 관련 신장 질환은 신장 무게 증가와 개별 네프론의 비대를 특징으로 합니다[3,76]. 따라서 관상 및 사구체 비대는 비만과 관련된 네프론의 두 가지 중요한 구조적 변화를 나타냅니다. 특히, 비만인 사람은 사구체 크기가 3-배 증가하고 새로운 사구체 모세혈관 형성이 증가하는데[5], 아마도 사구체 과여과 때문일 수 있습니다[5]. 비만에서 사구체 여과율의 증가는 더 높은 여과율과 신세뇨관 과부하로 이어져 근위 세뇨관에서 나트륨과 수분의 재흡수를 자극할 수 있으며 결과적으로 세뇨관 사구체 피드백을 통해 사구체 여과가 더 증가할 수 있습니다. 이러한 신장 혈역학적 변화는 비만 관련 신장 손상에 대한 가장 중요한 병태생리학적 근거를 나타냅니다.
CKD 모델과 대사 질환 모델(비만, 진성 당뇨병, 대사 증후군)을 포함한 다양한 동물 모델 질병에서 신장 지질 축적과 신장 기능 장애 사이의 연관성을 입증하는 많은 증거가 있습니다[64,77-89]. 언급된 모델에서 RPTEC 및 사구체 손상은 이러한 세포에 과도한 지질 침착으로 인해 대부분 설명되었습니다. 인간의 경우, 신장 지질 축적은 초점 분절 사구체 경화증(FSGS)[90], 고혈압성 신경화증[91], 최소 변화 질환(MCD)[92], 파브리병[93], 지단백 사구체 병증과 같은 여러 조건에서 특성화되었습니다. [94]. 또한, 비만과 신장 지질 축적은 제2형 당뇨병(T2D)에서 DN의 발병 및 진행에 필수적입니다. 따라서 T2D의 DN(T2DN)도 비만 관련 신장 질환으로 간주될 수 있습니다[70].
비만과 높은 지질 부하를 신장 손상과 연관시키는 보고가 증가하고 있음에도 불구하고 신장 기능 장애의 발달을 지배하는 분자 메커니즘은 완전히 이해되지 않았습니다. 따라서 신장 기능에 대한 비만 및 비정상적인 지질 수치의 유해한 영향을 예방 및/또는 역전시키기 위한 새로운 잠재적인 치료 경로를 탐색하는 것이 충족되지 않았습니다.
5. miRNA와 비만 관련 신장 질환에서의 기능적 역할
수많은 연구가 다양한 신장 질환에서 miRNA의 역할을 뒷받침해 왔지만 비만 관련 신증에서 miRNA의 역할에 대한 지식은 거의 없습니다. 여기서 우리는 비만 관련 신장 질환의 다양한 측면에 대한 miRNA의 기여를 설명합니다. 우리는 miRNA가 비만 관련 신장 손상의 시작과 진행에 어떻게 영향을 미치는지 설명합니다. 또한 가능할 때마다 신장에서 miRNA 매개 반응과 관련된 신호 전달 경로를 설명합니다(표 1).

miR-155은 관형 세포, 내피 및 간질 세포와 같은 신장의 다양한 세포에서 발현되며, 그 상승된 수준은 다양한 유형의 CKD와 관련이 있는 것으로 보고되었습니다. Zheng et al. (2019)는 비만 관련 신증[95]에서 miR-155의 중요한 역할을 입증했습니다. 즉, 저자는 고지방식이(HFD)를 먹인 쥐가 신장의 구조적 및 기능적 손상과 양의 상관관계가 있는 신장 miR-155의 현저한 증가를 보였다고 밝혔습니다. 더욱이 신장 미세혈관 내피 세포를 팔미트산으로 처리하면 miR-155 발현이 증가하고 지방독성 세포 손상, 염증 및 산화 스트레스가 뒤따릅니다. 저자는 miR-155이 SHIP1/INPP5D의 3'-UTR을 직접 표적으로 삼고 NF-kB 경로를 통해 신장 염증 반응을 유도하는 시험관 내 및 생체 내 발현을 억제한다는 것을 입증했습니다[95].
흥미롭게도 miR-155의 특정 억제는 신장에서 SHIP1/NF-kB 신호 전달을 억제하고 식이 유발 염증, 산화 스트레스 및 신장 기능 장애를 상당히 개선했습니다[95]. 비만과 신장 지질 축적을 특징으로 하는 신장 장애인 T2DN에서도 유사한 결과가 얻어졌습니다. 즉, 저자는 T2DN에 의해 영향을 받은 인간과 쥐의 신장에서 miR-155 발현의 현저한 증가를 보여주었습니다[96]. 동일한 그룹이 T2DN[96]에서 miR-146a에 대한 유사한 표현 패턴을 설명했습니다.
비만 관련 신증에서 miRNA의 역할에 대한 또 다른 증거는 Sun et al. (2019) [97]. 즉, 저자는 HFD를 먹인 C57BL/6J 마우스의 신장에서 miR-802 발현의 현저한 증가를 입증했으며, 이는 혈청 BUN 및 크레아티닌과 같은 비만 마우스의 신장 기능 매개변수와 양의 상관관계가 있습니다[97]. 일관되게, 비만 환자는 마른 사람보다 miR-802의 순환 수준이 더 높았으며, 이는 크레아티닌 수치와 양의 상관관계가 있지만 크레아티닌 청소율과는 음의 상관관계가 있었습니다.
흥미롭게도, 신장 miR-802을 침묵시키기 위해 초음파 기반 미세기포 운반 렌티바이러스 전달 방법을 사용하여 저자는 miR-802의 억제가 HFD로 유발된 염증, 대식세포 침윤, 섬유증 및 기능성 신장 손상. 기계적으로 Sun et al. miR-802가 NF-kB 억제 인자(NRF)의 30UTR에 직접 결합한다는 증거를 제공하고 miR-802/NF-kB/NRF 신호가 진행을 제어하는 분자 메커니즘 중 하나일 수 있음을 확인했습니다. 비만 관련 신증. 저자는 miR-802 억제제 사용의 치료적 이점을 제안하고 miR-802를 비만 환자의 신기능 장애의 잠재적인 바이오마커로 제안합니다[97].
Sun et al. (2016) [98]은 비만과 관련된 신장 손상에서 miR-451의 보호 역할을 제안했습니다. 즉, 저자는 비만인 db/db DN 마우스의 신장과 DN 환자의 말초 혈액 단핵 세포(PBMC)에서 miR-451의 현저한 하향 조절을 보여주었습니다. 일관되게 고혈당으로 처리된 메산지움 세포는 miR-451 [98]의 용량 의존적 하향 조절을 보여주었습니다. Sun et al. miR-451은 LMP7의 30 -UTR을 직접 표적으로 삼고 mesangial 세포에서 하류 전 염증 분자를 조절하는 LMP7/NF-kB 경로를 억제한다는 것을 확인했습니다.
중요한 것은 miR-451의 과발현이 db/db 비만 마우스의 신장 피질에서 사구체 손상, 알부민뇨, 전염증성 및 전섬유화 인자의 발현을 상당히 개선했다는 것입니다. 비만 유발 신장 손상에서 miR-451의 역할에 대한 또 다른 증거는 Fluitt et al. (2020) [99]. 저자는 신장 염증, 손상 및 섬유증의 발달에 민감하지 않은 것으로 나타난 인슐린 저항성 TallyHo/Jng(TH) 마우스 모델을 사용했으며 HFD에 의해 유발된 신병증의 시작에서 miR-451의 역할을 평가했습니다. 급송. 흥미롭게도, miR-451의 장기간 전신 억제는 TallyHo/Jng(TH) 비만 마우스에서 상당한 신장 비대, 알부민뇨, 신장 손상, 섬유증 및 글리코겐 침착뿐만 아니라 자가포식의 조절 장애를 초래했습니다. 또한 시험관 내 실험에서 YWHAZ 및 CAB39가 miR-451의 직접 표적임을 확인했으며 mTOR 신호 경로를 통해 비만 마우스에서 자가포식을 강화하여 신세뇨관 손상을 줄이는 데 miR-451의 역할을 지원했습니다[99] .
miR-18a-5p는 분명한 신장 사구체 기능 장애 및 손상이 있는 비만 db/db 마우스의 신장에서 현저하게 하향 조절되는 것으로 나타났습니다[100]. 생쥐에서 레스베라트롤 치료에 의한 miR-18a-5p의 상향 조절은 영향을 받은 신장에서 자가포식을 증가시키고 세포사멸을 감소시켜 비만 생쥐의 신장 손상을 완화시켰습니다. 일관되게, podocytes에서 miR-18a-5p의 과발현은 in vivo 결과를 확인했으며, 이 miRNA를 autophagy의 조절을 통한 세포 사멸의 음성 조절 인자로 제안합니다. 저자는 atactic telangiectasis mutation (ATM) 유전자를 miR-18a-5p의 직접 표적으로 확인하고 이 miRNA가 autophagy 및 apoptosis에 미치는 영향이 ATM 표적을 통해 통제될 수 있다고 제안했습니다.
miR-130b는 비만 관련 신장 질환의 맥락에서도 조사되었습니다. 특히 저자는 HFD를 먹인 adiponectin KO(adipoKO) 마우스에서 miR-130b 수준의 현저한 증가와 신장 기능 장애 가속화를 발견했습니다[101]. HFD를 먹인 AdipoKO 마우스는 신장 비대, 알부민뇨, 지질 축적 및 네프린 발현 감소의 징후를 보였습니다. 저자는 HFD를 먹인 adipoKO 생쥐에서 miR-130b의 증가된 발현이 신장 지질 축적에 기여할 수 있으며, 이어서 아디포넥틴의 신장 보호 효과가 없을 때 신장 질환의 진행에 기여할 수 있다고 제안합니다.
miR-21은 대부분 profibrotic 특성과 TGF- 1 신호 경로에 관여하기 때문에 신장 질환에서 널리 연구된 병원성 miRNA 중 하나입니다[110]. 흥미롭게도 Morrison et al. (2017) [102]는 비만 관련 신장 기능 장애에서 miR-21의 관련성을 조사했습니다. 생체 내에서 라드 기반 HFD를 먹인 HuCRP 형질전환 마우스는 알부민뇨, 신장 염증, 손상 및 섬유증을 동반한 비만이 발생했습니다. 저자는 비만 마우스가 일반 사료를 먹인 마우스에 비해 신장에서 miR-21의 발현이 증가했으며, 이는 신세뇨관 손상 마커인 Kim-1의 발현 및 신장 등급과 유의미한 상관관계가 있음을 입증했습니다. 섬유증. 저자는 비만 유발 신병증에서 miR-21 수준을 조절하는 가능한 링크로 PPAR- 경로를 제안합니다[102].
위에서 언급한 바와 같이, T2DN은 또한 비만 관련 신장 질환[111]으로 간주되어 왔으며[111], 비만과 관련된 신장 지질 축적 및 대사 변화는 T2DN의 발병 및 진행에 필수적입니다. 제2형 당뇨병의 병리학적 진행과 다른 장기에 대한 결과를 연구하는 데 자주 사용되는 동물 모델 중 하나는 고지방식이-스트렙토조토신(HFD/STZ) 설치류 모델입니다.
따라서 Zhao et al. (2021) [103]은 쥐의 HFD/STZ 치료로 유발된 신증에서 miR-365의 역할을 설명했습니다. miR-365은 상승된 혈청 BUN 및 크레아티닌, 요중 알부민 및 염증 마커와 함께 질병이 있는 신장 조직에서 유의하게 발현되었습니다. 저자는 miR-365이 BDNF에 대한 잠재적인 결합 부위를 가지고 있고 miR-365의 증가가 BDNF 및 p-TrkB의 단백질 발현을 억제하여 BDNF/TrkB 신호 축을 통해 신장 손상을 촉진한다고 제안했습니다. miR-365의 하향 조절은 고혈당 처리된 인간 근위 세뇨관 상피(HK2) 세포에서 염증성 사이토카인 및 섬유화 촉진 마커의 분비를 감소시켰고, 증가된 BDNF 발현은 신장 세포 손상 및 기능 장애를 완화했습니다[103] .
Xueet al. (2018) [104]는 마우스에서 HFD/STZ에 의해 유도된 T2DN에서 miR-34a-5p의 관련성을 입증했으며 이 miRNA를 예방을 위한 새로운 치료 도구 개발을 위한 유망한 후보로 제안했습니다. /치료 DN. 즉, miR-34a-5p는 콜라겐, 피브로넥틴과 같은 섬유화 마커의 급격한 증가와 함께 HFD/STZ로 유도된 당뇨병 마우스 및 고포도당 처리 HK2 세포의 신장 조직에서 상당한 상향 조절을 보였습니다. , 및 TGF- 1. 저자는 miR-34a-5p가 SIRT1의 30UTR을 진짜 표적으로 직접 표적으로 한다는 증거를 제시하고 miR-34a-5p/SIRT/TGF{{16} } T2DN 동안 tubulointerstitial 손상에서 중요한 신호로 신호.
Li et al. (2019) [105] HFD/STZ 치료로 유발된 신장 기능 장애에서 miR-26a-5p의 보호 역할을 제안했습니다. 저자는 HK2 세포에서 miR-26a-5p의 억제가 이들 세포에서 염증 반응을 촉진하는 반면, miR-26a-5p의 과발현은 세포 기능 장애를 개선함을 입증했습니다. 저자는 TargetScan 및 루시퍼라제 리포터 분석을 사용하여 miR-26a-5p가 HK2 세포에서 CHAC1의 30 -UTR을 직접 표적으로 삼았음을 확인했으며, 이후 기능 획득 및 상실 실험을 수행했습니다. miR-26a-5p가 CHAC1/NF-kB 경로를 통해 신장 세포의 염증 반응을 개선함을 밝혔습니다. 흥미롭게도 같은 그룹에서 T2DN 환자의 소변 엑소좀에서 miR-26a-5p가 유의하게 감소한 것으로 나타났습니다[105,106].
Shan과 동료들(2016)[107]은 HFD/STZ의 병용 치료로 유발된 진성 당뇨병의 신장에서 세포외 기질 축적에서 miR-10a의 역할을 평가했습니다. 그들은 HFD와 HFD/STZ 투여 모두 마우스 신장에서 miR-10a 발현 수준을 감소시키는 것을 관찰했습니다. 또한, miR-10a 모방체의 꼬리 정맥 주사는 더 높은 소변 알부민-크레아티닌(ACR) 비율을 약화시키고 HFD/STZ에 의해 유도된 신장 손상을 역전시켰으며, miR-10a의 침묵은 나이브 마우스의 신장 ACR 비율. 흥미롭게도 Shan et al. miR-10a는 CREB1의 3 0UTR을 직접 표적으로 하여 비만 유발 신병증에서 세포외 기질 및 신장 기능의 생성 및 축적을 조절함을 입증했습니다. 전체적으로 저자는 HDAC3/miR-10a/CREB1 경로를 제2형 당뇨병에서 신장 손상을 제어하는 새로운 가능한 신호 메커니즘으로 제안합니다.
Matboliet al. (2017) [108]은 쥐의 HFD/STZ 치료로 유발된 신증에서 miR-133b, miR-342 및 miR{4}}a의 역할을 설명했습니다. 분석된 miRNA는 혈청 지질 및 BUN 상승, 크레아티닌 청소율 및 요중 알부민과 함께 질병이 있는 신장 조직에서 상당히 상향 조절되었습니다. 또한, 저자는 miR-133b, miR-342 및 miR-30a의 직접적인 표적으로 autophagy 유전자 RB1CC1, MAP1LC3B 및 ATG-12를 식별했습니다. 저자는 HFD/STZ가 miR-133b, miR-342 및 miR-30a를 상향 조절하고 신장에서 autophagy를 하향 조절하여 AMPK/PI3K 경로를 통해 신장 기능 장애를 일으킬 수 있다는 가설을 세웠습니다. [108].
miR-214은 인간 신장 질환 및 동물 신장 질환 모델에서 높게 발현됩니다[112]. 따라서 Yan et al. (2019)는 miR-214-3p가 장기 HFD와 단기 타우로콜산나트륨 주사를 병용 치료한 쥐의 신장과 혈청에서 상향 조절되는 것을 발견했습니다[109]. 쥐는 신장 손상과 췌장염이 발생한 후 PTEN 발현이 억제되고 신장에서 pAkt 수치가 증가했습니다. anti-miR-214-3p로 쥐를 치료하면 신장 염증과 섬유증, PTEN 및 pAkt의 발현이 역전되었습니다. 저자는 miR-214- 3p/PTEN/Akt 경로가 HFD/sodium taurocholic 쥐 모델에서 조직 손상 및 섬유화의 원인이 된다고 제안합니다.
Li et al. [113] 돼지 모델과 비만 및 대사 증후군(MetS)이 있는 인간 피험자 모두에서 miRNA 발현 프로필의 강력한 조절 장애를 보여주었습니다. 즉, 비만 MetS 돼지의 지방조직 중간엽 줄기세포에서 생성된 세포외 소포를 신혈관 질환이 있는 동물에게 전달하면 손상된 신장에서 노화와 신장 섬유증이 악화되었습니다[113].

6. CKD의 새로운 치료적 접근으로서의 miRNA: 이점 및 관점
다양한 질병의 병인에 miRNA가 관여한다는 충분한 증거가 주어지면 miRNA와 그 기능의 조절이 비만 관련 신병증을 포함한 다양한 신장 질환의 치료적 접근으로 사용될 수 있다고 생각하는 것이 타당합니다. miRNA는 유전자 조절에 필수적인 역할을 하며 수많은 유전자 경로를 변형할 수 있는 능력이 있습니다[10]. 알려진 뉴클레오티드 구성의 고도로 보존된 짧은 시퀀스와 같은 특정 기능으로 인해 miRNA는 잠재적인 치료 중재를 위한 새로운 매력적인 표적 클래스를 나타냅니다[114].
원칙적으로 우리는 miRNA 기반 치료제의 개발에서 두 가지 접근 방식인 (a) 억제 및 (b) miRNA 활동/기능 복원을 구분할 수 있습니다. 특정 miRNA 활성은 화학적으로 변형된 ASO(antisense oligonucleotide) 억제제 또는 직렬 miRNA 결합 부위 반복의 트랜스제닉 도입(Decoy 또는 Sponge 기술로 알려짐)을 포함하는 여러 방법을 사용하여 침묵시킬 수 있습니다[115-117]. 변형된 안티센스 올리고뉴클레오타이드(이하 anti-miR라고 함)는 성숙한 miRNA의 전체 또는 부분 상보적인 역순으로 구성되며 특정 miRNA의 고유 수준을 감소시킬 수 있습니다. Anti-miR은 miRNA의 경쟁적 억제제로 작용하며 RNA 유도 침묵화 복합체가 승객 가닥을 제거한 후 성숙한 miRNA 가이드 가닥에 대한 어닐링에 따라 그 효과를 이끌어냅니다[118].
Rooij 등에 따르면. 성공적이고 효과적인 항-miR의 필수 요건은 (a) 세포 투과성 화학; (b) 느린 배설; (c) 생체 내 안정성; (d) 관심 있는 miRNA에 대한 높은 특이성 결합[119]. 따라서 안정성을 위한 화학적 변형과 더 나은 세포 흡수를 위한 콜레스테롤 결합과 같은 몇 가지 변형이 지금까지 이러한 맥락에서 수행되었습니다[116]. 따라서 이러한 접근법의 일부 예는 2'-O-메톡시에틸 포스포로티오에이트 안티센스 올리고 [120], 콜레스테롤 태그 20 -O-Me 안티센스 올리고(antagomir{{12} }) [116], 또는 마우스 모델에서 고콜레스테롤혈증을 개선하는 안티센스 잠금 핵산 변형 올리고(LNA–anti-miR)[121][116,120,121]. 또한, LNA-anti-miR-122의 전신 전달은 LNA 관련 독성에 대한 어떠한 증거도 없이 비인간 영장류 모델에서 총 혈장 콜레스테롤의 장기간 지속되는 감소로 이어져 변형된 올리고뉴클레오티드의 새로운 가능성을 확인했습니다. 질병 관련 miRNA에 대한 치료제 종류[115].
특정 miRNA 작용의 억제를 위한 또 다른 설명된 접근법은 miRNA 결합 부위(Decoy 또는 Sponge)의 직렬 반복 발현입니다[117,122]. 즉, miRNA 스펀지에는 관심 있는 miRNA, 특히 종자 영역에 대한 상보적 결합 부위가 포함되어 있습니다. 따라서 Ebert et al.에 따르면 miRNA 스폰지는 관련 miRNA의 전체 계열을 차단할 수 있어야 합니다[117]. Zheng et al. (2019)는 miR-155 스폰지 처리에 의한 신장 miR-155의 억제가 마우스에서 비만으로 유발된 신장의 구조적 및 기능적 손상뿐만 아니라 HFD로 유도된 신장 염증, 지방독성, 대식세포 침윤을 효율적으로 약화시켰음을 입증했습니다 [ 95].
miRNA가 하향 조절되는 신장 병리학에서 잠재적인 치료 방법은 miRNA 모방체를 투여하여 miRNA 기능을 재확립하는 것입니다. miRNA 모방체는 단일 가닥 RNA로부터 세포 내에서 분리할 수 있는 이중 가닥 RNA 분자입니다. 그 후, 한 가닥이 RISC에 로드되고 miRNA로 기능합니다[114]. RNA mimic 기술을 이용한 miR146, miR-155, miR-451, miR-10a, miR-18a-5p 등 여러 miRNA의 발현 복원 다양한 in vitro 및 in vivo 신장 질환 모델에서 신장 손상 및 기능 장애를 상당히 개선했습니다[96,98,100,107]. miRNA 모방 기술의 상당한 발전에도 불구하고 임상 실습에서 miRNA 모방을 사용하기 전에 해결해야 할 문제가 여전히 남아 있습니다. 이러한 문제는 생체 내 전달, 투여량, 면역 반응, 세포 흡수 및 생체 내 안정성일 것입니다[112].
신장에서 miRNA를 표적으로 삼는 것은 특히 다른 조직과 기관에서 가능한 바람직하지 않은 결과뿐만 아니라 표적 제거 효과를 우회하려는 경우 계속해서 중요한 과제입니다[110]. 정맥 및 피하 주사를 통해 모방체 및 억제제를 신장으로 성공적으로 전달한 많은 사례에도 불구하고 [123] miRNA를 신장 또는 특정 신장 세포로 표적화하는 동시에 다른 조직 및/또는 또는 적응 면역 반응의 활성화는 여전히 고려해야 할 중요한 문제로 남아 있습니다. miRNA의 전달 및 안전 문제와 별개로, 신장 질환에 대한 miRNA 치료법을 설계하는 동안 고려해야 할 또 다른 측면은 이러한 분자의 제거입니다. 현재 이 문제를 다루는 동물 연구 데이터가 부족합니다.
miRNA의 안정성은 miRNA 기반 치료법의 필수 요건입니다. 골격의 다양한 분자 변형에 의해 생체 내에서 RNA 안정성을 증가시키는 상당한 진전이 이루어졌습니다[114]. 이러한 맥락에서, 잠금 핵산(LNA) 기술의 개발은 LNA 변형 올리고뉴클레오티드(LNA-antimiRs)가 상보적인 RNA 표적에 대한 높은 결합 친화성과 생체 내 및 시험관 내 높은 안정성을 나타내기 때문에 큰 가능성을 가지고 있습니다[115,121]. 또한, 상보적인 뉴클레오티드에 대한 친화력을 높이기 위해 2 0 -O-메톡시에틸(20 -MOE) 및 20 -옥시-메틸(20 -OMe) 변형이 성공적으로 설계 및 적용되었습니다. [116,120].
7. 결론
점점 더 많은 증거가 miRNA가 유전자 조절에서 가장 중요한 역할을 하고 수많은 유전자 경로를 조절할 수 있음을 나타냅니다. miRNA는 정상적인 신장 발달 및 생리학의 조절에 필수적인 역할을 하는 반면, 비정상적인 발현은 다른 신장 질환의 발달과 관련되어 있음이 입증되었습니다. 또한, miRNA는 신장 지질 축적 동안 RPTEC, 족세포 및 메산지움 세포와 같은 토착 신장 세포의 상태 및 기능에 영향을 미침으로써 비만 관련 질병의 발병 및 발달에 중요한 역할을 하는 것으로 나타났습니다.
RPTECs, podocytes 및 mesangial 세포는 큰 지질 과부하를 처리하는 데 필요한 분자 기계의 부재로 인해 지질 축적에 가장 민감한 것으로 보입니다. 따라서 이들 세포의 지질 축적은 염증, 산화 스트레스, 레닌-안지오텐신-알도스테론 활성 손상 및 인슐린 저항성을 유발하여 세포 기능 장애 및 손상을 유발할 것입니다. 신장의 높은 지질 부하 및 지방독성이 다양한 miRNA의 발현을 조절하고, 이들의 신장 발현이 지방독성 세포 손상, 염증, 산화 스트레스, 신장의 구조적 및 기능적 손상과 유의미한 상관관계가 있다는 것이 이제 분명해졌습니다.
고유한 특성으로 인해 miRNA는 비만 관련 신장 병리를 포함하여 다양한 신장 질환에서 가능한 치료적 개입을 위한 새로운 매력적인 표적 클래스로 부상했습니다. miRNA의 활동/기능을 억제하거나 재건하기 위해 miRNA를 직접 표적으로 삼는 것은 유망한 치료 전략이 될 수 있습니다. 임상 적용을 위한 성공적인 치료적 접근으로의 여정에서 해결해야 할 다양한 과제가 있지만 miRNA는 여전히 다양한 유형의 신장 질환에 대한 차세대 치료법을 설계하는 데 엄청난 가능성을 가지고 있습니다.
저자 기여:
개념화, MB; 문헌 검토, MC, À.E. 및 MB; 쓰기 - 원본 초안 준비, MC, À.E. 및 MB; 쓰기 - 검토 및 편집, MC, À.E. 및 MB; 과학적 삽화 및 표, MC 및 MB; 감독, MB; 프로젝트 관리, MB; 자금 조달, MB 모든 저자는 원고의 게시된 버전을 읽고 동의했습니다.

자금 조달:
이 연구는 Instituto de Salud Carlos III(ISCIII) 및 FEDER 기금 "Una manera de hacer Europa"의 Miguel Servet 연구 보조금 CP19/00027에 의해 지원되었습니다. MB는 ISCIII(CP19/00027)의 Miguel Servet 계약에 의해 지원되었습니다. Fondo Social Europeo ''El FSE invierte en tu futuro'에서 재정 지원. MC는 RedInRen RETIC에서 자금을 지원했습니다. À.E. ISCIII(FI19/00026)의 PFIS 학생 지원을 받았습니다.
기관 검토 위원회 성명서:
적용되지 않습니다.
정보에 입각한 동의서:
적용되지 않습니다.
데이터 가용성 진술:
적용되지 않습니다.
이해 상충:
저자는 이해 상충을 선언하지 않습니다.

참조
1. Sharma, I.; Liao, Y.; Zheng, X.; Kanwar, YS New Pandemic: Obesity and Associated Nephropathy. 앞쪽. 중간 2021, 8, 673556. [교차 참조]
2. 이은서; 권민호; 김흠; 김나인; 김영민; 김혜성; Lee, EY; Chung, CH Dibenzoylmethane은 당뇨병성 신증에서 지질 유발 염증 및 산화 손상을 개선합니다. J. 엔도크리놀. 2019, 240, 169–179. [교차 참조]
3. 매튜, AV; 오카다, S.; Sharma, K. 비만 관련 신장 질환. 현재 당뇨병 개정판. 2011, 7, 41–49. [교차 참조]
4. 이우; 엄동우; 정유; 야마베, N.; Lee, S.; 전유; 황연재; 이정호; 김용경; 강석규; 외. Dendrobium moniliforme은 지질 유발 산화 스트레스의 조절을 통해 생쥐에서 고지방식이 유발 신장 손상을 약화시킵니다. 오전. J. Chin. 중간 2012, 40, 1217–1228. [CrossRef] [펍메드]
5. 츠보이, N.; 오카바야시, Y.; 시미즈, A.; Yokoo, T. 비만의 신장 병리학. 신장내과 2017, 2, 251–260. [CrossRef] [펍메드]
6. 팬, PC; 첸, CC; 첸, YC; Chang, YS; 급성 신장 손상의 Chu, PH MicroRNA. 흠. 게놈. 2016, 10, 29. [교차 참조]
7. Chandrasekaran, K.; 카롤리나, DS; Sepramaniam, S.; Armugam, A.; 윈투어, EM; 버트람, JF; Jeyaseelan, K. 신장 항상성과 질병에서 microRNA의 역할. 신장내과 2012, 81, 617–627. [교차 참조]
8. Tang, J.; 야오, D.; Yan, H.; 첸, X.; 왕, L.; Zhan, H. 당뇨병성 신증의 병인에서 MicroRNA의 역할. 국제 J. 엔도크리놀. 2019, 2019, 8719060. [CrossRef] [PubMed]
9. Esteller, M. 인간 질병의 비암호화 RNA. Nat. Genet 목사. 2011, 12, 861–874. [교차 참조]
10. 무카디, S.; 헐, R.; Mbita, Z.; Dlamini, Z. 신장 질환에서 MicroRNA의 역할. 비코딩 RNA 2015, 1, 192–221. [CrossRef] [펍메드]
11. 맥크리트, JC; 슈나이더, SE; 윌번, DB; Swanson, WJ 영장류에서 microRNA의 진화. PLoS ONE 2017, 12, e0176596. [CrossRef] [펍메드]
12. Pu, M.; 첸, J.; 타오, Z.; Miao, L.; 치, 엑스; Wang, Y.; Ren, J. 표적에 대한 miRNA의 조절 네트워크: 유전자 발현의 전사 조절과 전사 후 조절 사이의 조정. 셀. 몰. 라이프 사이언스 2019, 76, 441–451. [CrossRef] [펍메드]
13. 스타바스트, CJ; Erkeland, SJ The Non-Canonical Aspects of MicroRNAs: Many Roads to Gene Regulation. 세포 2019, 8, 1465. [CrossRef] [PubMed]
14. 코조마라, A.; Birgaoanu, M.; Griffiths-Jones, S. miRBase: 마이크로RNA 서열에서 기능까지. 핵산 Res. 2019, 47, D155–D162. [CrossRef] [펍메드]
15. 리우, 지.; Wang, Y.; 슈, S.; 카이, J.; Tang, C.; Dong, Z. 신장 손상 및 수리에서 비암호화 RNA. 오전. J. Physiol.-세포. 피시올. 2019, 317, C177–C188. [교차 참조]
16. 크렉, A.; Grün, D.; 포이, 미네소타; 울프, R.; 로젠버그, L.; 엡스타인, EJ; MacMenamin, P.; da Piedade, I.; 군살루스, 켄터키; 스토펠, M.; 외. 조합 마이크로RNA 표적 예측. Nat. 그 가죽. 2005, 37, 495–500. [교차 참조]
17. 하, M.; Kim, VN Regulation of microRNA biogenesis. Nat. 목사 몰. 세포비올. 2014, 15, 509–524. [교차 참조]
18. Van der Hauwaert, C.; Glowacki, F.; 포티어, N.; Cauffiez, C. 신장 섬유증의 맥락에서 새로운 치료 표적으로서의 비코딩 RNA. 국제 J.Mol. 과학. 2019, 20, 1977. [교차참조]
19. Reda El Sayed, S.; Cristante, J.; Guyon, L.; 데니스, J.; 샤브르, O.; Cherradi, N. 암에서의 MicroRNA 치료제: 현재의 발전과 도전. 암 2021, 13, 2680. [CrossRef]
20. 구오, L.; 유제이; 유, H.; Zhao, Y.; 첸, S.; 쉬, C.; Chen, F. miRNAs/isomiRs 수준에서 miR-#-5p 및 miR-#-3p의 진화 및 발현 분석. 바이오메드. 해상도 국제 2015, 2015, 168358. [교차참조]
21. Wang, X. 종자 서열의 구성은 마이크로RNA 표적화 패턴의 주요 결정 요인이다. 생물 정보학 2014, 30, 1377–1383. [교차 참조]
22. 라이딩거, P.; 켈러, A.; Meese, E. MicroRNAs - 폐암 연구에서 중요한 분자. 앞쪽. 그 가죽. 2011, 2, 104. [CrossRef] [PubMed]
23. Vasudevan, S.; Tong, Y.; Steitz, JA 억제에서 활성화로 전환: MicroRNA는 번역을 상향 조절할 수 있습니다. 과학 2007, 318, 1931–1934. [교차 참조]
24. 김동현; 새트롬, P.; Snøve, O.; Rossi, JJ 포유류 세포에서 MicroRNA 지시 전사 유전자 침묵. 절차 Natl. Acad. 과학. USA 2008, 105, 16230–16235. [교차 참조]
25. Sun, Y.; 구세인; 화이트, N.; 페랄타, E.; 에서, C.; 뉴멕시코 학장; Perera, RJ 인간 및 마우스 microRNA를 검출하기 위한 마이크로 어레이 개발 및 인간 기관에서의 발현 특성화. 핵산 Res. 2004, 32, e188. [교차 참조]
26. Baskerville, S.; Bartel, DP microRNA의 Microarray 프로파일링은 인접한 miRNA 및 숙주 유전자와의 빈번한 공동 발현을 나타냅니다. RNA 2005, 11, 241–247. [CrossRef] [펍메드]
27. 세르퀘이라, DM; Bodnar, AJ; 푸아, YL; 프리어, R.; 헴커, SL; 왈렌스키, LD; 휴크리데, NA; Ho, J. Bim 유전자 투여량은 신장 발달 동안 microRNA가 없을 때 네프론 전구체 생존을 조절하는 데 중요합니다. FASEB J. 2017, 31, 3540–3554. [교차 참조]
28. 나가락쉬미, VK; Ren, Q.; 퓨, MM; 발레리우스, MT; 맥마흔, AP; Yu, J. Dicer는 포유동물 신장에서 신성 및 요관 구획의 발달을 조절합니다. 신장내과 2011, 79, 317–330. [교차 참조]
29. Ma, L.; Qu, L. 신장 발달 및 병태생리학에서 마이크로RNA의 기능. J. 제네트. 게놈. 2013, 40, 143–152. [교차 참조]
30. 파텔, V.; Noureddine, L. MicroRNA 및 섬유증. 현재 의견. 네프롤. 고혈압. 2012, 21, 410–416. [CrossRef] [펍메드]
31. Bijkerk, R.; Trimpert, C.; 반 졸링겐, C.; 드 브루인, RG; Florijn, BW; Kooijman, S.; 반 덴 버그, R.; van der Veer, EP; Bredewold, EOW; 렌센, PCN; 외. MicroRNA-132는 MECP2-매개 바소프레신 합성을 조절하여 물의 항상성을 조절합니다. 오전. J. Physiol.-Ren. 피시올. 2018, 315, F1129–F1138. [교차 참조]
32. 반 조네벨트, AJ; Au, YW; 스탐, W.; van Gelderen, S.; Rotmans, JI; 딘, PMT; 라벨링크, TJ; Bijkerk, R. MicroRNA-132는 생쥐에서 염 의존성 정상 상태 레닌 수치를 조절합니다. 공동. 비올. 2020, 3, 238. [교차참조]
33. Ozbaki-Yagan, N.; 리우, X.; Bodnar, AJ; 호제이; Butterworth, MB 알도스테론 유도 마이크로RNA는 신장 상피에서 미네랄로코르티코이드 수용체 신호전달의 피드백 조절자로 작용합니다. FASEB J. 2020, 34, 11714–11728. [CrossRef] [펍메드]
34. 리우, HH; 리, XQ; 리우, JF; Cui, S.; 리우, H.; 후비; 황, SB; 왕, L.; 양우; 왕 CC; 외. 혈장 세포외 소포에 의해 운반되는 miR-6869-5p는 비만에서 신세뇨관 손상 및 레닌-안지오텐신 시스템 활성화를 중재합니다. 앞쪽. 중간 2021, 8, 725598. [CrossRef] [PubMed]
35. 하기와라, S.; McClelland, A.; Kantharidis, 당뇨병성 신증의 P. MicroRNA: 레닌-안지오텐신, aGE/RAGE 및 산화 스트레스 경로. J. Diabetes Res. 2013, 2013, 173783. [CrossRef] [PubMed]
36. Morris, BJ Renin, 고혈압과 관련된 유전자, 마이크로RNA 및 신장 메커니즘. 고혈압 2015, 65, 956–962. [교차 참조]
37. Sequeira-Lopez, ML; 웨더포드, ET; 보르헤스, GR; 몬테아구도, MC; 펜츠, ES; Harfe, BD; 카레테로, O.; 지그문트, CD; Gomez, RA microRNA 처리 효소 다이서는 사구체근접 세포를 유지합니다. J.Am. Soc. 네프롤. 2010, 21, 460–467. [교차 참조]
38. 황 W.; 리우, H.; 왕티; 장 티.; Kuang, J.; Luo, Y.; 정성수; Yuan, L.; Yang, JY Tonicity-responsive microRNA는 높은 NaCl hypertonicity에 반응하여 osmoregulatory transcription factor OREBP의 최대 유도에 기여합니다. 핵산 Res. 2011, 39, 475–485. [교차 참조]
39. 믈라디노프, D.; Liu, Y.; 맷슨, DL; Liang, M. MicroRNA는 세포 유형별 생리적 특성의 유지에 기여합니다. MiR-192은 Na + /K + -ATPase 1을 대상으로 합니다. Nucleic Acids Res. 2013, 41, 1273–1283. [CrossRef] [펍메드]
40. Tapia-Castillo, A.; Guanzon, D.; 팔마, C.; 라이, 에이; 바로스, E.; Allende, F.; 베키올라, A.; 파델라, CE; 살로몬, C.; Carvajal, CA 비전형적인 광물 코르티코이드 과잉이 있는 피험자에서 엑소좀 miR-192-5p 및 miR-204-5p의 하향 조절. J. Transl. 중간 2019, 17, 392. [교차참조]
41. 보직, M.; 원인, M.; Rodrigues-Diez, RR; 페드라자, N.; 루이즈-오르테가, M.; Garí, E.; 갈렐, P.; 파나데스, MJ; 마르티네즈, A.; Fernández, E.; 외. 신장 섬유증의 병인에서 신장 근위 세뇨관 알파-시누클레인의 보호 역할. Nat. 공동. 2020, 11, 1943. [교차 참조]
42. 코사노비치, M.; 요렌테, A.; Glamoclija, S.; Valdivielso, JM; Bozic, M. 세포외 소포 및 신장 섬유증: 새로운 치료적 접근을 향한 오디세이. 국제 J.Mol. 과학. 2021, 22, 3887. [교차 참조]
43. 왕 B.; Komers, R.; Carew, R.; 윈뱅크스, CE; 쉬 비.; Herman-Edelstein, M.; 고피; 토마스, M.; Jandeleit-Dahm, K.; Gregorevic, P.; 외. TGF- 1에 의한 microRNA-29 발현 억제는 콜라겐 발현 및 신장 섬유화를 촉진합니다. J.Am. Soc. 네프롤. 2012, 23, 252–265. [CrossRef] [펍메드]
44. 차우, BN; Xin, C.; 하트너, J.; 렌, S.; 카스타노, AP; 린, G.; 리제이; 트란, 태평양 표준시; 카이말, V.; 황, X.; 외. MicroRNA-21는 대사 경로를 침묵시켜 신장의 섬유화를 촉진합니다. 과학. 번역 중간 2012, 4, 121ra18. [CrossRef] [펍메드]
45. 정찬호; 신장 섬유증의 Lan, HY MicroRNA. 앞쪽. 피시올. 2015, 6, 50. [교차 참조]
46. 보직, M.; 드 루이, J.; 파리시, E.; 오르테가, MR; Fernandez, E.; Valdivielso, JM Glutamatergic 신호 전달은 근위 관형 세포의 상피 표현형을 유지합니다. J.Am. Soc. 네프롤. 2011, 22, 1099–1111. [교차 참조]
47. 보직, M.; Valdivielso, JM 신세뇨관 세포에서의 칼슘 신호. 고급 특급 중간 비올. 2012, 740, 933–944. [교차 참조]\
48. 카토, M.; 장제이; 왕 엠.; 랜팅, L.; Yuan, H.; 로시, JJ; 당뇨병성 신장 사구체의 Natarajan, R. MicroRNA-192 및 E-box repressor의 억제를 통한 TGF-베타 유도 콜라겐 발현에서의 기능. 절차 Natl. Acad. 과학. USA 2007, 104, 3432–3437. [교차 참조]
49. 크루파, A.; 젠킨스, R.; 루오, DD; 루이스, A.; 필립스, A.; Fraser, D. MicroRNA-192의 손실은 당뇨병성 신증에서 섬유화를 촉진합니다. J.Am. Soc. 네프롤. 2010, 21, 438–447. [CrossRef] [펍메드]
50. 왕비; 고피; 윈뱅크스, C.; 쿨란, 몬태나; McClelland, A.; 왓슨, A.; Jandeleit-Dahm, K.; 번스, 화장실; 토마스, 엠씨; 메인 쿠퍼; 외. miR-200a TGF- 2 발현 억제를 통해 신장 섬유화를 방지합니다. 당뇨병 2011, 60, 280–287. [교차 참조]
51. Caporali, A.; 멜로니, M.; Völlenkle, C.; Bonci, D.; 살라-뉴비, 영국; 아디스, R.; Spinetti, G.; 로사, S.; 마송, R.; 베이커, AH; 외. microRNA-503의 규제 완화는 사지 허혈 후 당뇨병으로 인한 내피 기능 손상 및 회복 혈관 신생에 기여합니다. 회람 2011, 123, 282–291. [CrossRef] [펍메드]
52. Zha, F.; Bai, L.; 탕비; 리제이; Wang, Y.; Zheng, P.; 지티; Bai, S. MicroRNA-503는 당뇨병성 신증에서 E2F3을 표적으로 하여 족세포 손상에 기여합니다. 제이셀. 생화학. 2019, 120, 12574–12581. [교차 참조]
53. Gholaminejad, A.; Abdul Tehrani, H.; Gholami Fesharaki, M. 당뇨병성 신증에서 후보 microRNA 바이오마커 식별: 프로파일링 연구의 메타 분석. J. 네프롤. 2018, 31, 813–831. [CrossRef] [펍메드]
54. 잠페타키, A.; Kiechl, S.; Drozdov, I.; 윌라이트, P.; Mayr, U.; 프로코피, M.; 메이어, A.; 베거, S.; Oberhollenzer, F.; 보노라, E.; 외. 혈장 microRNA 프로파일링은 제2형 당뇨병에서 내피 miR-126 및 기타 microRNA의 손실을 나타냅니다. 순환 해상도 2010, 107, 810–817. [CrossRef] [펍메드]
55. Lv, C.; Zhou, YH; 우, C.; Shao, Y.; 루, CL; Wang, QY 인간 혈청에서 miR-130b 수준의 변화 및 당뇨병성 신증의 중증도와의 상관관계. 당뇨병 Metab. 해상도 2015, 31, 717–724. [교차 참조]
56. 왕, G.; Yan, Y.; 쉬, N.; Hui, Y.; Yin, D. microRNA-424의 상향 조절은 mTOR Complex2/Protein Kinase B 신호 전달을 통해 Rictor를 표적으로 하여 당뇨병성 신증을 완화했습니다. 제이셀. 피시올. 2019, 234, 11646–11653. [CrossRef] [펍메드]
57. 이혜원; 칸, SQ; Khaliqdina, S.; Altintas, MM; 그레이머, F.; Zhao, JL; 고경호; 타디, 뉴저지; 파리디, MH; Geraghty, T.; 외. Podocytes에 miR-146a가 없으면 ErbB4 및 Notch-1의 상향 조절을 통해 당뇨병성 사구체병증의 위험이 증가합니다. J. Biol. 화학. 2017, 292, 732–747. [교차 참조]
58. 왕 Q.; Wang, Y.; 민토, AW; 왕제이; Shi, Q.; 리, X.; Quigg, RJ MicroRNA-377는 상향 조절되어 당뇨병성 신증에서 피브로넥틴 생성을 증가시킬 수 있습니다. FASEB J. 2008, 22, 4126–4135. [교차 참조]
59. Jaswani, P.; Prakash, S.; 다르, A.; 샤르마, RK; Prasad, N.; Agrawal, S. 신장 병태생리에 관여하는 MicroRNA: 조감도. 인디언 J. 네프롤. 2017, 27, 337–341. [교차 참조]
60. Ramanathan, K.; 신장 질환의 잠재적 바이오마커로서의 Padmanabhan, G. miRNA: 리뷰. 세포 생화학. 기능 2020, 38, 990–1005. [교차 참조]
61. Ejerblad, E.; 포드, CM; Lindblad, P.; Fryzek, J.; 맥러플린, JK; Nyrén, O. 비만 및 만성 신부전 위험. J.Am. Soc. 네프롤. 2006, 17, 1695–1702. [교차 참조]
62. Hsu, CY; 맥컬록, CE; 이리바렌, C.; Darbinian, J.; Go, AS 체질량 지수 및 말기 신장 질환 위험. 앤. 인턴. 중간 2006, 144, 21–28. [CrossRef] 63. 포스터, MC; 황성주; 포터, SA; 마사로, JM; Hoffmann, U.; Fox, CS 지방 신장, 고혈압 및 만성 신장 질환: The Framingham Heart Study. 고혈압 2011, 58, 784–790. [CrossRef] [펍메드]
64. 데지, N.; Kume, S.; 아라키, S.; Soumura, M.; 스기모토, T.; Isshiki, K.; Chin-Kanasaki, M.; Sakaguchi, M.; 고야, D.; 하네다, M.; 외. 고지 방식으로 유발된 비만 쥐의 신장 구조 및 기능적 변화. 오전. J. Physiol.-Ren. 피시올. 2009, 296, F118–F126. [CrossRef] [펍메드]
65. 스테머, K.; 페레즈-틸브, D.; Ananthakrishnan, G.; 보르트, A.; Seeley, RJ; Tschöp, MH; 디트리히, DR; Pfluger, PT 고지방 식이 유발 비만은 쥐 신장에서 염증 및 종양 촉진 미세 환경을 유발합니다. 디스. 모델. 기계 2012, 5, 627–635. [CrossRef] [펍메드]
66. 코임브라, TM; Janssen, U.; 그론, HJ; 오스텐도르프, T.; Kunter, U.; 슈미트, H.; 브라반트, G.; Floege, J. 제2형 당뇨병이 있는 비만 Zucker(뚱뚱한) 쥐의 신장 손상으로 이어지는 초기 사건. 신장내과 2000, 57, 167–182. [교차 참조]
67. 만, HE; 토스, PP; Kris-Etherton, PM; Abate, N.; 아론, LJ; 브라운, 웨스트버지니아; Gonzalez-Campoy, JM; 존스, SR; 쿠마르, R.; 라 포지, R.; 외. 비만, 비만 및 이상지질혈증: National Lipid Association의 합의 진술. J. 클린. 리피돌. 2013, 7, 304–383. [교차 참조]
68. Izquierdo-Lahuerta, A.; 마르티네즈-가르시아, C.; Medina-Gómez, G. 신장 질환의 유발 인자로서의 지방 독성. J. 네프롤. 2016, 29, 603–610. [교차 참조]
69. 티와리, S.; Ndisang, JF 심근병증과 신증에서 비만의 역할. 현재 제약 데. 2014, 20, 1409–1417. [교차 참조]
70. Li, Z.; 리제이; Miao, X.; Cui, W.; Miao, L.; Cai, L. A minireview: 비만 관련 신장 손상에서 AMP 활성화 단백질 키나아제(AMPK) 신호 전달의 역할. 라이프 사이언스 2021, 265, 118828. [교차 참조]
71. 코베스디, CP; 퍼스, SL; Zoccali, C.; 위원회, WKDS 비만 및 신장 질환: 전염병의 숨겨진 결과. 할 수 있다. J. 신장 건강 Dis. 2017, 4, 2054358117698669. [CrossRef] [PubMed]
72. 무어헤드, JF; 찬, MK; El-Nahas, M.; Varghese, Z. 만성 진행성 사구체 및 세뇨관 간질 질환에서의 지질 신독성. 랜싯 1982, 2, 1309–1311. [교차 참조]
73. Bobulescu, IA 신장 지질 대사 및 지방독성. 현재 의견. 네프롤. 고혈압. 2010, 19, 393–402. [CrossRef] [펍메드]
74. Weinberg, JM Lipotoxicity. 신장내과 2006, 70, 1560–1566. [교차 참조]
75. Schaffer, JE Lipotoxicity: 조직이 과식할 때. 현재 의견. 리피돌. 2003, 14, 281–287. [CrossRef] [PubMed]76. Pommer, W. 예방 신장학: 만성 신장 질환의 여러 단계에서 비만의 역할. 신장 질환 2018, 4, 199–204. [교차 참조]
77. Declèves, AE; 매튜, AV; Cunard, R.; Sharma, K. AMPK는 고지방식이로 인한 신장 질환의 시작을 매개합니다. J.Am. Soc. 네프롤. 2011, 22, 1846–1855. [교차 참조]
78. Udi, S.; Hinden, L.; 얼리, B.; 드로리, A.; Reuveni, N.; 하다르, R.; 시나르, R.; Nemirovski, A.; Tam, J. Proximal Tubular Cannabinoid-1 수용체는 비만 유발 CKD를 조절합니다. J.Am. Soc. 네프롤. 2017, 28, 3518–3532. [교차 참조]
79. 윅스, SE; 응우옌, TT; Breaux, C.; 크루거, C.; Stadler, K. 다이어트 유발 비만 및 신장 질환 - 감수성 있는 마우스 모델 검색. Biochimie 2016, 124, 65–73. [교차 참조]
80. 지앙, 티.; 왕, Z.; 프록터, G.; Moskowitz, S.; 립만, SE; 로저스, T.; 루시아, MS; 리제이; Levi, M. C57BL/6J 마우스에서 다이어트 유발 비만은 스테롤 조절 요소 결합 단백질-1c 의존 경로를 통해 신장 지질 축적 및 사구체 경화증을 증가시킵니다. J. Biol. 화학. 2005, 280, 32317–32325. [교차 참조]
81. Kume, S.; Uzu, T.; 아라키, S.; 스기모토, T.; Isshiki, K.; Chin-Kanasaki, M.; Sakaguchi, M.; 쿠보타, N.; 테라우치, Y.; Kadowaki, T.; 외. 고지방식이에 의해 유발된 신장 손상의 발달에서 변경된 신장 지질 대사의 역할. J.Am. Soc. 네프롤. 2007, 18, 2715–2723. [교차 참조]
82. 왕, XX; Jiang, T.; Shen, Y.; Adorini, L.; 프루잔스키, M.; 곤잘레스, FJ; Scherzer, P.; 루이스, L.; 미야자키-안자이, S.; Levi, M. 파르네소이드 X 수용체는 신장 지질 대사와 식이 유발 신장 염증, 섬유증 및 단백뇨를 조절합니다. 오전. J. Physiol.-Ren. 피시올. 2009, 297, F1587–F1596. [교차 참조]
83. 왕, Z.; Jiang, T.; 리제이; 프록터, G.; 맥마나만, JL; 루시아, S.; 추아, S.; Levi, M. 제2형 당뇨병이 있는 FVBdb/db 마우스에서 신장 지질 대사, 지질 축적 및 사구체 경화증의 조절. 당뇨병 2005, 54, 2328–2335. [CrossRef] [펍메드]
84. 박찬우; 김하원; 고승현; 임정호; Ryu, GR; 정혜원; Han, SW; 신수진; 방백경; 브레이어, 메릴랜드; 외. 글루카곤 유사 펩타이드-1 아날로그 엑센딘-4의 장기 치료는 db/db 마우스의 대사 이상을 개선하여 당뇨병성 신장병을 완화합니다. J.Am. Soc. 네프롤. 2007, 18, 1227–1238. [CrossRef] [펍메드]
85. 도밍게즈, J.; 우, P.; 패커, CS; 템, C.; Kelly, KJ 조절되지 않는 대사 증후군 및 신증이 있는 쥐의 지방독성 및 염증성 표현형. 오전. J. Physiol.-Ren. 피시올. 2007, 293, F670–F679. [CrossRef] [펍메드]
86. Sun, L.; 할라이헬, N.; 장 W.; 로저스, T.; Levi, M. 당뇨병에서 신장 지질 대사 및 사구체 경화증의 조절에서 스테롤 조절 요소 결합 단백질 1의 역할. J. Biol. 화학. 2002, 277, 18919–18927. [CrossRef] [펍메드]
87. Ohtsubo, T.; Matsumura, K.; Sakagami, K.; 후지이, K.; 츠루야, K.; 노구치, H.; 로비라, II; 핀켈, T.; Iida, M. Xanthine oxidoreductase 고갈은 신세뇨관에서 비정상적인 지질과 퓨린 축적을 통해 신장 간질 섬유증을 유발합니다. 고혈압 2009, 54, 868–876. [교차 참조]
88. Udi, S.; Hinden, L.; 아마드, M.; 드로리, A.; 아이어, MR; 시나르, R.; Herman-Edelstein, M.; Tam, J. 칸나비노이드 CB의 이중 억제. 브. J.Pharmacol. 2020, 177, 110–127. [교차 참조]
89. 보불레스쿠, 아이오와; Dubree, M.; 장제이; McLeroy, P.; Moe, OW 근위 세뇨관 Na + /H + 교환 및 암모늄 분비에 대한 신장 지질 축적의 영향. 오전. J. Physiol.-Ren. 피시올. 2008, 294, F1315–F1322. [교차 참조]
90. 마길, AB; Cohen, AH 단핵구 및 국소 사구체 경화증. 랩. 투자하다. 1989, 61, 404–409.
91. Druilhet, RE; 오버터프, ML; Kirkendall, WM 정상 및 신경화 인간 신장의 피질 및 수질 지질. 국제 J. Biochem. 1978, 9, 729–734. [교차 참조]
92. 제네트, JC; Falk, RJ 급성 신부전을 동반한 성인 최소 변화 사구체병증. 오전. J. 키드니 디스. 1990, 16, 432–437. [교차 참조]
93. 구블러, MC; 르누아르, G.; Grünfeld, JP; 울만, A.; 드로즈, D.; Habib, R. 파브리병을 앓고 있는 반접합 및 이형접합 환자의 초기 신장 변화. 신장내과 1978, 13, 223–235. [CrossRef] [펍메드]
94. 샘, R.; 우, H.; Yue, L.; Mazzone, T.; 슈워츠, MM; 아루다, JA; Dunea, G.; Singh, AK 지질단백질 사구체병증: 사구체 결합이 강화된 새로운 아포지단백 E 돌연변이. 오전. J. 키드니 디스. 2006, 47, 539–548. [CrossRef] [펍메드]
95. Zheng, C.; 장제이; 첸, X.; 딩, X.; 당신, X.; 팬, L.; 첸, C.; Zhou, Y. MicroRNA-155는 비만 유발 신장 염증 및 기능 장애를 중재합니다. 염증 2019, 42, 994–1003. [CrossRef] [펍메드]
96. Huang, Y.; Liu, Y.; 리, 엘.; 수비; 양엘; 팬, W.; 인큐; 첸, L.; Cui, T.; 장제이; 외. 당뇨병성 신증에서 염증 관련 miR-155 및 miR-146a의 관련: 사구체 내피 손상에 대한 시사점. BMC 네프롤. 2014, 15, 142. [교차참조]
97. Sun, D.; 첸, J.; 우, W.; Tang, J.; 루오, L.; 장케이; 진엘; 린, S.; Gao, Y.; Yan, X.; 외. MiR-802은 비만 마우스와 인간에서 NF-κB 억제 인자를 억제하여 신장병을 유발합니다. 제이셀. 몰. 중간 2019, 23, 2863–2871. [교차 참조]
98. Sun, Y.; 펭, R.; Peng, H.; 리우, H.; 웬, L.; 우티; 이효리; 리, 아; Zhang, Z. miR-451은 당뇨병성 신증에서 LMP7을 억제함으로써 NF-kappaB 매개 전염증성 분자 발현을 억제합니다. 몰. 셀. 엔도크리놀. 2016, 433, 75–86. [교차 참조]
99. 플루잇, MB; Shivapurkar, N.; 쿠마리, M.; Singh, S.; 리, 엘.; 티와리, S.; Ecelbarger, CM miR-451의 전신 억제는 Tallyho/Jng 마우스에서 신장 손상을 악화시키기 위해 섬유화 신호를 증가시키고 autophagic 반응을 감소시킵니다. 오전. J. Physiol.-Ren. 피시올. 2020, 319, F476–F486. [교차 참조]
100. 쉬, XH; 딩, DF; 용현제; 동씨엘; 당신, N.; 예, XL; 팬, ML; Ma, JH; 당신, Q.; Lu, YB Resveratrol은 autophagy 증가를 통해 miRNA-18a-5p 발현을 전사적으로 조절하여 당뇨병성 신장병증을 완화합니다. 유로. 목사 Med. 파마콜. 과학. 2017, 21, 4952–4965.
101. 페레이라, BMV; Thieme, K.; de Araújo, L.; Rodrigues, AC 생쥐의 아디포넥틴 부족은 고지방식이로 인한 만성 신장 질환의 진행을 가속화합니다. 라이프 사이언스 2020, 257, 118061. [교차 참조]
102. 모리슨, MC; 야칼라, GK; 리앙, W.; Wielinga, PY; Salic, K.; 반 코펜, A.; 토마르, T.; Kleemann, R.; 히링가, P.; Kooistra, T. 고지방 챌린지된 인간-CRP 트랜스제닉 마우스의 신장 기능에 대한 로지글리타존의 보호 효과: 아디포넥틴 및 miR-21의 가능한 역할? 과학. 2017, 7, 2915. [교차 참조]
103. Zhao, P.; 리, X.; 리, 와이.; Zhu, J.; Sun, Y.; Hong, J. HFD/STZ의 BDNF-TrkB 신호 축 조절에서 miR-365의 메커니즘은 당뇨병성 신병증 섬유화 및 신장 기능을 유도했습니다. 국제 우롤. 네프롤. 2021, 53, 2177–2187. [교차 참조]
104. 쉬에, M.; 리, 와이.; 후, F.; 지아, YJ; Zheng, ZJ; 왕, L.; Xue, YM 고포도당은 microRNA-34a-5p를 상향 조절하여 HK-2 세포에서 SIRT1을 표적으로 하여 섬유증을 악화시킵니다. 생화학. Biophys. 해상도 공동. 2018, 498, 38–44. [교차 참조]
105. Li, S.; Jia, Y.; 쉬에, M.; 후, F.; Zheng, Z.; 장, S.; 렌, S.; 양유; 시, 지.; 왕, L.; 외. 신세뇨관 상피 세포에서 Rab27a를 억제하면 miR-26a-5p/CHAC1/NF-kB 경로를 통해 당뇨병성 신장 질환의 염증이 약화됩니다. 라이프 사이언스 2020, 261, 118347. [교차 참조]
106. Xie, Y.; Jia, Y.; Cuihua, X.; 후, F.; 쉬에, M.; Xue, Y. 초기 유형 2 당뇨병성 신장 질환에서 비뇨기 Exosomal MicroRNA 프로파일링. J. Diabetes Res. 2017, 2017, 6978984. [교차참조]
107. Shan, Q.; Zheng, G.; 주, A.; Cao, L.; 루, J.; 우디; 장, Z.; 팬, S.; Sun, C.; 후비; 외. miR-10a의 후생적 변형은 제2형 진성 당뇨병에서 CREB1을 표적으로 하여 신장 손상을 조절합니다. 독성. 신청 파마콜. 2016, 306, 134–143. [CrossRef] [펍메드]
108. Matboli, M.; 에이사, S.; 이브라힘, D.; 헤가지, MGA; 이맘, SS; Habib, EK 카페인산은 고지방식이/스트렙토조토신 유발 당뇨병 쥐에서 자가포식 조절을 통해 당뇨병성 신장 질환을 약화시킵니다. 과학. 2017, 7, 2263. [교차 참조]
109. Yan, Z.; 장비; 공X; Ren, J.; Wang, R. MiR-214-3p는 급성 신장 손상을 동반한 고지혈증성 췌장염으로 인한 신장 손상 및 염증을 악화시킵니다. 라이프 사이언스 2020, 241, 117118. [CrossRef] [PubMed]
110. 사쿠마, H.; 하기와라, S.; Kantharidis, P.; 고다, T.; Suzuki, Y. MicroRNA를 사용한 당뇨병성 신장 질환에서 신장 섬유증의 잠재적 표적. 앞쪽. 파마콜. 2020, 11, 587689. [CrossRef] [PubMed]
111. 양우; Luo, Y.; Yang, S.; 젱, 엠.; 장, S.; 리우, J.; 한유; Liu, Y.; 주, X.; 우, H.; 외. 이소성 지질 축적: 당뇨병성 신장 질환에서 세뇨관 손상 및 염증의 잠재적 역할. 클린. 과학. 2018, 132, 2407–2422. [교차 참조]
112. 고메즈, IG; 나카가와, N.; Duffield, JS MicroRNA는 신장 손상 및 섬유증을 치료하기 위한 새로운 치료 표적입니다. 오전. J. Physiol.-Ren. 피시올. 2016, 310, F931–F944. [교차 참조]
113. Li, Y.; Meng, Y.; 주, X.; 사딕, IM; 조던, KL; 에이린, A.; Lerman, LO 대사 증후군은 돼지 및 인간 중간엽 줄기/기질 세포에서 유래한 세포외 소포에서 노화 관련 마이크로 RNA를 증가시킵니다. 세포공동체 신호. 2020, 18, 124. [교차 참조]
114. Lv, W.; 팬, F.; Wang, Y.; Gonzalez-Fernandez, E.; 왕 C.; 양엘; 부즈, GW; Roman, RJ 신장 섬유증 및 CKD 치료를 위한 마이크로RNA의 치료 가능성. 피시올. 게놈. 2018, 50, 20–34. [교차 참조]
115. 엘멘, J.; Lindow, M.; 쉬츠, S.; 로렌스, M.; 페트리, A.; 오바드, S.; Lindholm, M.; Hedtjärn, M.; 한센, HF; Berger, U.; 외. 비인간 영장류에서 LNA 매개 마이크로RNA 침묵. Nature 2008, 452, 896–899. [CrossRef] [펍메드]
116. Krützfeldt, J.; Rajewsky, N.; Braich, R.; 라지예프, KG; Tuschl, T.; 마노하란, M.; Stoffel, M. 'antagomirs'를 사용한 생체 내 마이크로RNA의 침묵. Nature 2005, 438, 685–689. [CrossRef] [펍메드]
117. 에버트, MS; 닐슨, JR; Sharp, PA MicroRNA 스폰지: 포유류 세포에서 작은 RNA의 경쟁적 억제제. Nat. 방법 2007, 4, 721–726. [CrossRef] [펍메드]
118. 데이비스, S.; 롤로, B.; 프라이어, S.; Esau, C. 안티센스 올리고뉴클레오티드로 miRNA의 개선된 표적화. 핵산 Res. 2006, 34, 2294–2304. [CrossRef] [펍메드]
119. van Rooij, E.; 퍼셀, 앨라배마; Levin, AA microRNA 치료제 개발. 순환 해상도 2012, 110, 496–507. [교차 참조
120. 에서, C.; 데이비스, S.; 머레이, SF; 유○○; 판디, SK; 배, M.; 와츠, L.; 부텐, SL; 그레이엄, M.; 맥케이, R.; 외. 생체 내 안티센스 표적화에 의해 밝혀진 지질 대사의 miR-122 조절. 세포 메타. 2006, 3, 87–98. [교차 참조]
121. 엘멘, J.; Lindow, M.; 실라타로글루, A.; 박엠; 크리스텐슨, M.; Lind-Thomsen, A.; Hedtjärn, M.; 한센, JB; 한센, HF; Straarup, EM; 외. 전신적으로 투여된 LNA-antimiR에 의한 마우스의 microRNA-122의 길항작용은 간에서 예측된 많은 표적 mRNA 세트의 상향 조절을 유도합니다. 핵산 Res. 2008, 36, 1153–1162. [CrossRef] [펍메드]
122. Carè, A.; 카탈루치, D.; 펠리세티, F.; Bonci, D.; 아다리오, A.; 갈로, P.; 뱅, ML; Segnalini, P.; 남자.; 달튼, 노스다코다; 외. MicroRNA-133는 심장 비대를 조절합니다. Nat. 중간 2007, 13, 613–618. [CrossRef] [펍메드]
123. 트리온피니, P.; 베니니, A.; Remuzzi, G. 신장 생리학 및 질병의 MicroRNA. Nat. 네프롤 목사. 2015, 11, 23–33. [CrossRef] [펍메드]
For more information:1950477648@gmail.com