새로운 공동 배양 모델에 의해 연구된 인간 신장 세포에 대한 신독소 오크라톡신 A의 영향은 섬유아세포의 존재에 의해 영향을 받습니다
Mar 01, 2022
추상적인:그만큼신장많은 잠재적인 독성 물질에 의해 위협을 받고 있습니다. 신독소 오크라톡신 A(OTA)의 영향을 연구하기 위해 우리는 인간신장 근위 세뇨관 세포 및 섬유아세포. 우리는 세포 생존, 세포 사멸, 세포외 기질 및 에너지 항상성과 관련된 유전자 및/또는 단백질의 발현에 대한 OTA의 효과를 연구했습니다. OTA 유도 괴사는 각각의 다른 세포 유형의 존재하에 두 세포 유형 모두에서 강화 된 반면, OTA 유도 세포 사멸은 독립적이었다. 섬유아세포에서는 세뇨관 세포가 아닌 세포 주기 관련 단백질 p21의 발현과 관련하여 공동 배양 효과가 나타났습니다. 상피에서 중간엽으로의 전이를 나타내는 단백질 vimentin의 발현은 배양 조건과 무관하였다. OTA로 유도된 lncRNA WISP1-AS1의 발현은 공동 배양에서 향상되었습니다. OTA 노출은 포도당 동원 효과와 미토콘드리아 단백질의 감소된 발현으로 에너지 대사와 관련된 유전자의 발현에 변화를 가져왔습니다. 함께 우리는 자연적으로 가까이에 있는 세포의 존재 하에서 세포의 반응이 다를 수 있으므로 세포 혼선을 가능하게 할 수 있음을 보여줍니다. 따라서 물질의 독성을 평가하기 위해서는 단일배양 대신 공동배양의 사용을 고려하는 것이 유리할 것이다.
키워드:오크라톡신 A; 세포 배양; 에너지 대사; 세포자멸사-괴사 균형; 미토콘드리아; 신장; 신장
CISTANCHE는 신장/신부전을 개선할 것입니다
소개
배설 기능으로 인해신장약물이나 식품 오염 물질과 같은 다양한 유해 물질에 의해 위협을 받고 있습니다.신장 질환약 10%의 유병률을 보입니다[1,2]. 신독성 작용의 기전을 이해하기 위해서는 이러한 해로운 시나리오를 완화하는 전략을 찾는 것이 도움이 되며, 그 이유와 방법에 대한 질문을 해결하기 위해 많은 연구가 수행되었습니다.신장멸종 위기에 처해 있다[3-5]. 유기체에 대한 물질의 영향을 연구하기 위해 윤리적인 문제와 조직적이고 비용이 많이 들고 정교한 전제 조건 때문에 전체 동물을 사용하는 것은 종종 어렵습니다. 게다가, 인간 상황에 대한 지식의 이전은 불확실성과 관련이 있습니다. 따라서 세포 배양 모델이 확립되어 널리 사용되며 특정 세포 유형과 물질 또는 치료에 대한 반응을 통제된 조건에서 연구할 수 있다는 장점이 있습니다. 이 접근법을 사용하여 많은 중요한 발견이 이루어졌지만 몇 가지 단점이 내재되어 있습니다. 즉, 세포주의 세포가 종종 돌연변이 유발 또는 기타(때로는 과감한) 방법에 의해 불멸화된다는 점입니다[6]. 이것은 다루기 쉽고 장기간 사용할 수 있지만 특정 모델 시스템에서 발견되는 결과가 전체 기관 또는 유기체의 상황으로 전이될 수 없는 위험이 있습니다. 이러한 단점을 극복하기 위해 불멸화 세포주 대신 1차 세포를 사용할 수 있지만 1차 세포의 생성은 종종 매우 어렵고 고급 기술이 필요합니다. 또한, 1차 세포는 종종 오랜 기간 동안 생존하지 못하고 특별한 개별 배양 조건이 필요합니다. 그러나 1차 세포는 자연 조건에 한 걸음 더 가깝고 적어도 때때로 세포주가 독성 자극에 더 민감하다는 것이 밝혀졌습니다[7]. 이는 세포주가 더 강력할 수 있음을 의미합니다. 또 다른 단점은 세포가 종종 단일 배양으로 유지된다는 사실입니다. 즉, 다른 세포 유형의 영향 없이 그들의 고향 기관에서 일반적으로 가까이에 있습니다. 따라서 가까운 자연 기관에 있는 세포가 있는 상태에서 물질이나 치료에 대한 세포 유형의 반응을 연구하는 것이 보다 현실적인 상황으로 나아가는 단계가 될 수 있습니다.
에서신장, 근위 세뇨관 세포는 섬유 아세포로 둘러싸여 있으며 아마도 상호 영향이 있다고 가정 할 수 있습니다. 이는 에서도 마찬가지이다.신장 손상대부분의 경우 세뇨관 간질 염증 및 섬유증[8,9]을 유발하고신장기능. 그들의 수송 및 효소 능력 때문에,신장근위 세뇨관 세포는 예를 들어, 약물 또는 그 잔류물 또는 진균독과 같은 다양한 잠재적 독성 물질에 의해 위험에 처해 있습니다. 주변 섬유아세포의 역할 중 하나는 콜라겐 및 기타 기질 구성요소의 방출을 통해 세포외 기질을 제공하여 조직의 완전성에 참여하는 것입니다[10]. 그러나 그들은 또한 상피 세포와 함께 염증 과정이나 섬유화 과정에 관여합니다.신장 질환[11] 발병 위험이 있는신부전.
인간 건강과 관련하여 집중적으로 연구된 진균독은 오크라톡신 A(OTA)[12,13]입니다. 다양한 식품에서 발견될 수 있으며[12,14], 노출과 섭취를 피하는 것은 거의 불가능합니다[9,15]. 이것은 OTA가 낮은 나노몰 농도의 인간 혈액에서 자주 검출된다는 관찰로 이어집니다[16]. 노출된 동물에서 OTA는신부전및 섬유화 변화 [17,18]. OTA 노출은 인간의신장 질환[19]. 인간의 일차 근위 세뇨관 세포에서 OTA의 독성 효과가 나타났으며 이는 근위 세뇨관 세포에서만큼 두드러지지는 않지만 인간의 일차 섬유아세포에서도 관찰할 수 있습니다[7]. OTA의 독성 작용 이면의 메커니즘은 아직 완전히 이해되지 않았으며 많은 진행 중인 연구의 대상입니다. 서로 다른 기능을 가진 인접 세포가 간섭하여 세포 기능을 조절하는 정도는 거의 알려져 있지 않지만 예상할 수 있습니다. 쥐로 구성된 공동 배양 모델을 사용한 이전 연구에서신장근위세뇨관과 섬유아세포에서 두 세포 유형 사이에 일종의 누화(crosstalk)가 발생하여 상피에서 중간엽으로의 전이(EMT)로서 OTA의 효과가 공동 배양 조건에서만 발생한다는 관찰로 이어집니다[20]. 그 연구와 다른 연구에서 도출할 수 있는 또 다른 결론은 쥐 세포가 인간 근위 세뇨관 세포에 비해 OTA에 대한 내성과 관련하여 더 강력하므로 [7,20] 인간 세포를 기반으로 한 모델 시스템이 인간 상황과 OTA 노출 위험.
따라서 본 연구에서는 인간 근위 세뇨관 세포(HK2 세포)와 인간 섬유아세포(CCD{2}}SK 세포)로 구성된 고급 세포 공동 배양 모델을 설정하여 OTA가 세포 생존(아폽토시스)에 미치는 영향을 연구합니다. , 괴사) 및 세포 주기, 세포 사멸, 세포외 기질 및 대사와 관련된 일부 예시적으로 선택된 유전자의 발현. 쥐 세포를 사용한 이전 연구와 유사하게[20], 인간 근위 세뇨관 세포를 필터 장치에 놓고 필터를 페트리 접시 바닥에 파종된 섬유아세포 층 위에 놓아 상피 세포의 기저외측면이 다음을 향하도록 했습니다. 섬유아세포는 두 세포 유형 사이에 일종의 대화를 가능하게 합니다.
결과
단백질, 젖산 탈수소효소 방출 및 카스파제{0}} 활성배양 조건 자체의 가능한 효과와 OTA 유도 변경에 대한 효과에 대한 첫인상을 얻기 위해 단일 배양에서 성장한 세포의 세포자멸사 측정으로서 caspase{1}} 활성을 공동 배양에서 성장한 세포의 활성과 비교했습니다. - 배양물은 24시간 및 48시간의 두 시점 동안 100nM OTA의 유무에 관계없이 배양됩니다. 또한, 세포 상태에 대한 전반적인 인상을 주기 위해 괴사에 대한 척도로서의 젖산 탈수소효소(LDH) 방출과 단백질 함량을 결정했습니다. 따라서 동일한 양의 세포를 웰 바닥(섬유아세포) 또는 섬유여과기(근위 세뇨관 세포)에 배치했습니다. 합류점에 도달한 후, 섬유아세포가 위치한 웰에 섬유여과기를 배치했습니다(그래픽 요약 참조). 그림 1A와 같이 단백질 함량에 대한 배양 조건 종속 효과는 24시간 또는 48시간 후에 두 세포 유형에서 거의 관찰되지 않았습니다(보충 파일 S1 참조). 섬유아세포에서 OTA 노출은 단백질 함량의 약간의 증가로 이어진 반면, 세관 세포에서 OTA는 단백질 함량의 약간 감소를 초래하여 OTA가 세관 세포에 부정적인 영향을 미칠 수 있음을 보여줍니다. 이러한 효과는 두 세포 유형의 배양 조건과 거의 독립적이었습니다.

그림 1. 단백질 함량(A), 카스파제{1}} 활성(B) 및 젖산 탈수소효소(LDH) 방출(C)에 대한 오크라톡신 A(OTA) 및/또는 배양 조건의 영향. 세포를 단일 배양 또는 공동 배양으로 배양하고 24시간 또는 48시간 동안 1{14}}0 nM OTA에 노출시켰습니다. N=3–6, n=14–18(단백질, LDH) 또는 8–9(카스파제{13}}). *는 OTA에 노출되지 않은 세포(OTA 효과 비교, 왼쪽) 또는 단일 배양(배양 효과 비교, 오른쪽)의 세포에 대해 ap < 0.05를="" 나타냅니다.="" 단백질="" 함량에="" 대한="" 효과를="" 추가로="" 설명하기="" 위해="" 우리는="" 세포자멸사와="" 괴사를="" 연구했습니다.="" 섬유아세포와="" 비교하여="" ota는="" 약="" 2.{21}}활성="" 증가와="" 함께="" 24시간="" 노출="" 후="" 세관="" 세포의="" 세포자멸사에="" 명확한="" 영향을="" 미쳤습니다(그림="" 1b).="" 48시간="" 노출="" 후에도="" 증가는="" 여전히="" 관찰="" 가능했지만="" 24시간="" 이후만큼="" 뚜렷하지는="" 않았습니다.="" 그러나,="" 이러한="" 증가는="" 섬유아세포의="" 존재="" 48시간="" 후에="" 세관="" 세포의="" 카스파제="" 활성이="" 약간="" 감소되어="" 공동="" 배양의="" 적당한="" 보호="" 효과를="" 나타내는="" 것을="" 제외하고는="" 배양="" 조건과="" 거의="" 독립적이었습니다.="" 그러나="" 공동="" 배양의="" 보호="" 효과는="" 특히="" ota가="" 있는="" 경우="" 섬유아세포에서="" 관찰할="" 수="" 있었습니다.="" 공동="" 배양에서="" ldh="" 방출은="" ota의="" 존재와="" 무관한="" 단일="" 배양="" 조건과="" 비교할="" 때="" 섬유아세포="" 및="" 세관="" 세포에서="" 명확하게="" 향상되었습니다(그림="" 1c).="" 세뇨관="" 세포에서="" ota는="" 특히="" 48시간="" 노출="" 후="" 배지로="" 방출되는="" ldh의="" 증가로="" 이어졌는데,="" 이는="" 섬유아세포에서="" 뚜렷하지="" 않았습니다.="" 종합하면,="" 각각의="" 다른="" 세포="" 유형의="" 존재는="" 괴사를="" 증가시켰지만="" 세포자멸사를="" 덜="" 유발하여="" 전체="" 단백질="" 함량이="" 현저하게="" 변화하지="" 않았다.="" apoptosis와="" necrosis에="" 대한="" ota의="" 효과는="" 대부분="" 다른="" 세포="" 유형의="" 존재="" 여부와="">
웨스턴 블롯 및 mRNA 발현
CDKN1A/p21세포주기는 OTA에 의해 영향을 받는 것으로 나타났으며, 세포주기에 관여하는 p21 단백질이 세뇨관 세포에서 OTA에 의해 상향조절됨을 알 수 있었다[21]. 단백질과 p21을 코딩하는 mRNA의 발현이 섬유아세포의 존재에 의해 얼마나 영향을 받는지 조사하기 위해 웨스턴 블롯과 RT-PCR을 수행했습니다. 그림 2A, B 및 3에서 볼 수 있듯이, 100 nM OTA에 48시간 노출되면 모노에서 p21 단백질 양이 증가하지만 세관 세포의 공동 배양 조건에서도 증가합니다. 공동 배양 조건 s의 섬유소모세포에서 OTA는 p{11}}단백질 발현에 영향을 미치지 않았지만 mRNA 발현은 다른 세포 유형의 존재와 무관하게 OTA에 의해 증가되었습니다. 흥미롭게도 공동 배양 조건에서 OTA 노출은 p21 단백질 발현을 더 이상 증가시키지 않았습니다. 세관 세포에서, 그들RNA 발현은 섬유아세포의 존재에 의해 변경되지 않았지만 공동 배양의 섬유아세포에서 pZlmRNA 발현은 OTA에 노출되었을 뿐만 아니라 OTA에 노출되지 않은 세포에서도 이미 향상되었다(보충 파일 S1 참조). 이것은 다른 세포 유형의 프리센이 특히 섬유아세포에서 p21 단백질 발현에 영향을 미친다는 것을 보여줍니다.
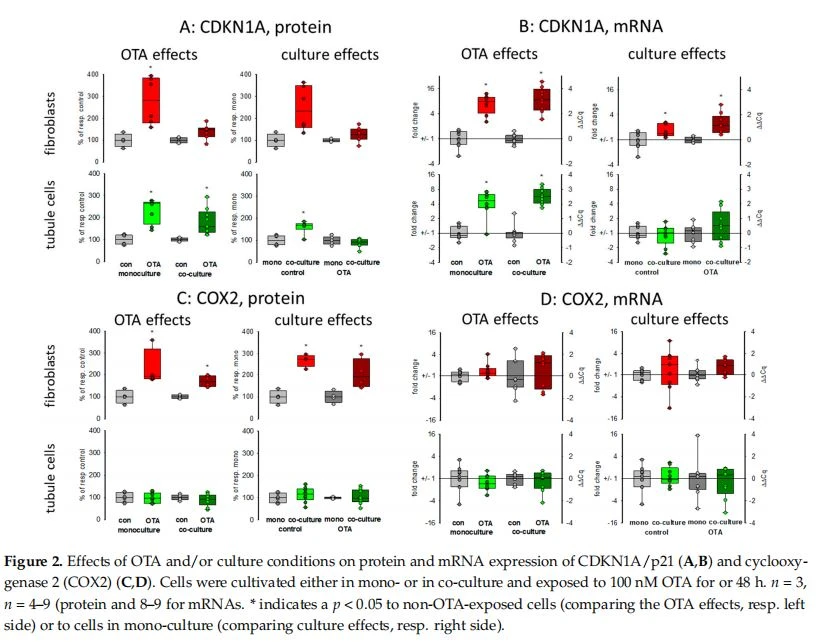
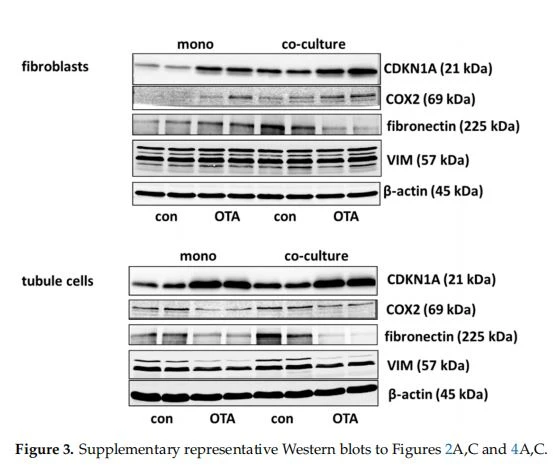
사이클로옥시게나제 2(COX2)사이클로옥시게나제 2(COX2) 단백질과 mRNA 수준이 증가하는 것으로 나타났습니다.신부전[22]. 도 2C, D 및 3에 도시된 바와 같이, 섬유아세포에서만 단백질 발현이 OTA 노출에 의해 증가되었다. 또한, 세뇨관 세포의 존재 하에서 COX2 단백질 발현은 OTA에 노출된 세포뿐만 아니라 처리되지 않은 세포에서 향상되어 세관 세포의 명백한 영향을 입증했습니다. 그러나 mRNA 발현은 OTA에 의해 영향을 받지 않았으며 OTA 노출에 의해 공동 배양의 아주 약간의 영향이 발생했습니다. 대조적으로, 세뇨관 세포에서 COX2의 mRNA 및 단백질 발현은 OTA 또는 섬유아세포의 존재와 완전히 독립적이었다. 이는 COX2 세관 세포와 관련하여 섬유아세포에 영향을 미칠 수 있지만 섬유아세포는 세관 세포에 영향을 미치지 않는다는 것을 보여줍니다.
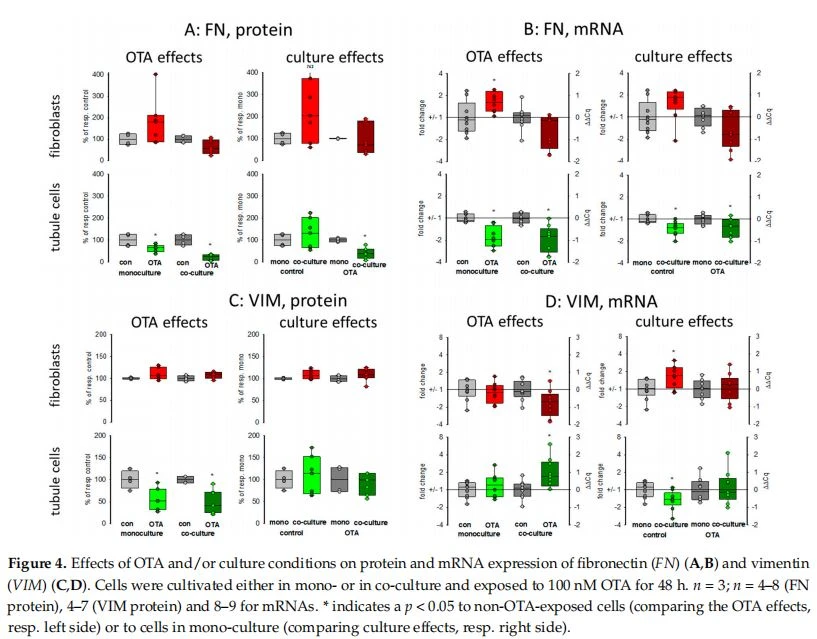
피브로넥틴신부전섬유화증이 동반되는 경우가 많습니다. fifibrosis 동안 extracellular matrix의 축적이 일어나며 다른 하나의 관찰은 fifibronectin 단백질 양의 증가입니다[23]. 따라서, fibronectincoding mRNA 및 단백질 발현의 OTA 의존적 변경은 단일 또는 공동 배양 조건에서 결정되었습니다. 그림 3 및 4A,B에서 볼 수 있듯이 100nM OTA에 대한 세관 세포의 48시간 노출은 단일 배양 및 공동 배양 모두에서 세포내 피피브로넥틴의 감소를 초래했습니다. OTA 효과는 공동 배양에서 더 낮았다. 더욱이, fifibronectin을 코딩하는 mRNA의 양은 배양 조건과 독립적으로 OTA 노출에 의해 감소되었고, fifibroblast의 존재는 대조군 및 OTA에 노출된 세포에서 mRNA 발현을 낮추었습니다. 대조적으로, 섬유아세포에서 fifibronectin 발현은 특히 Western blot에서 큰 변동성으로 인해 OTA나 배양 조건에 의해 거의 변경되지 않았습니다. OTA 유도 발현 경향은 단일 배양에서 볼 수 있습니다.
비멘틴비멘틴은 상피에서 중간엽으로의 전이(EMT)가 일어나고 EMT 발달이신부전[23]. 따라서, vimentin mRNA 및 단백질 발현의 OTA 의존적 변경은 단일 및 공동 배양 조건에서 결정되었다. 그림 3 및 4C,D에서 볼 수 있듯이 100nM OTA에 대한 세관 세포의 48시간 노출은 단일 배양 및 공동 배양 조건 모두에서 비멘틴 단백질의 풍부함이 감소했습니다. 그러나, 섬유아세포의 존재하에서 vimentin 단백질 발현은 배양 조건과 무관하였다. vimentin을 코딩하는 mRNA의 발현은 OTA나 배양 조건에 의해 거의 변하지 않았지만, 공동 배양에서 OTA 노출은 약간 증가하는 것으로 나타났다. 섬유아세포에서 vimentin 단백질 발현은 OTA 노출과 세뇨관 세포의 존재와 완전히 독립적이었습니다. 또한 vimentin을 코딩하는 mRNA 발현은 거의 변하지 않았다.
일부 선택된 유전자의 발현배양 조건이 다른 RNA의 발현에도 얼마나 영향을 미칠 수 있는지 예시적으로 추가 테스트하기 위해 세포자멸사-괴사, 암 발달 또는 에너지 대사에 역할을 하는 일부 유전자를 선택했습니다(보충 파일 S1 참조).
WISP{0}AS1OTA에 의해 유도된 긴 비암호화 RNA(lncRNA)는 전사 조절에 영향을 미치고 세포자멸사-괴사 균형 및 암 발달에 역할을 합니다[24]. 그림 5A에서 볼 수 있듯이 100nM OTA에 48시간 노출되면 두 세포 유형 모두에서 해당 lncRNA의 발현이 현저하게 증가했습니다. OTA가 없으면 각각의 다른 세포 유형의 존재는 발현에 거의 영향을 미치지 않았습니다. 그러나 OTA가 존재하는 경우 단일 배양에 비해 공동 배양에서 그 발현이 더 높았다.
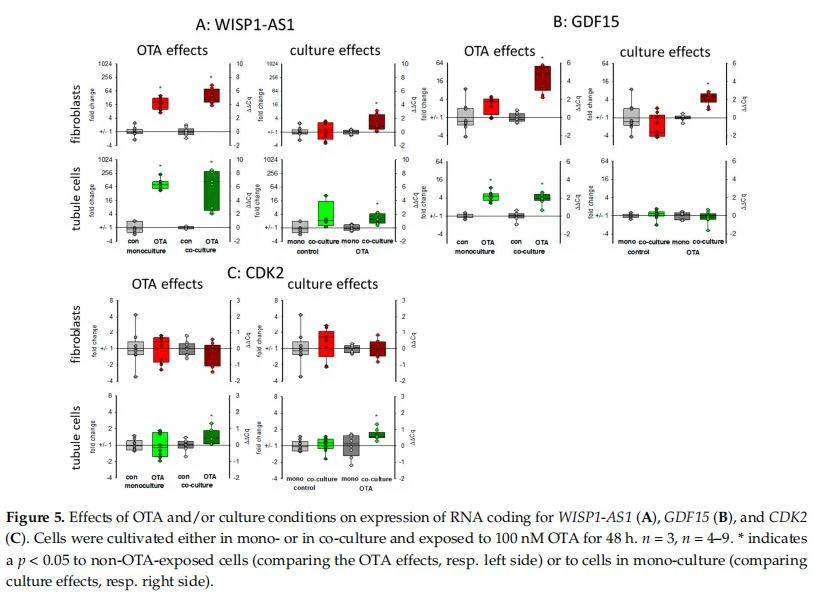
GDF15성장 분화 인자 15(GDF15)는 스트레스에 반응하는 변형 성장 인자 슈퍼패밀리의 구성원입니다. 에 대한 바이오마커로도 논의되고 있습니다.신장 질환또는 생존에 대한 예측자로신장이식 환자 [25,26]. GDF15를 코딩하는 mRNA의 발현은 도 5B에 도시된 바와 같이 OTA 노출 후 두 세포 유형에서 모두 향상되었다. 이 OTA 유도 효과는 세관 세포가 근처에 있을 때 섬유아세포에서 선호되었습니다. 그러나 세관 세포에서 발현은 섬유아세포의 존재와 무관했습니다(그림 5B).CDK2Cyclin-dependent kinase 2(CDK2)는 가중 상관 네트워크 분석에 의해 OTA 유발 세포 주기 조절 장애의 주요 조절 인자로 확인되었습니다[21]. 단일 배양의 섬유아세포에서 CDK2를 코딩하는 mRNA의 발현은 OTA에 의해 변경되지 않았습니다. 또한, 세뇨관 세포의 존재는 mRNA 발현에 영향을 미치지 않았다. 그러나, 세관 세포에서 OTA는 섬유아세포가 있는 경우에만 약간 향상된 발현을 유도했습니다(그림 5C).
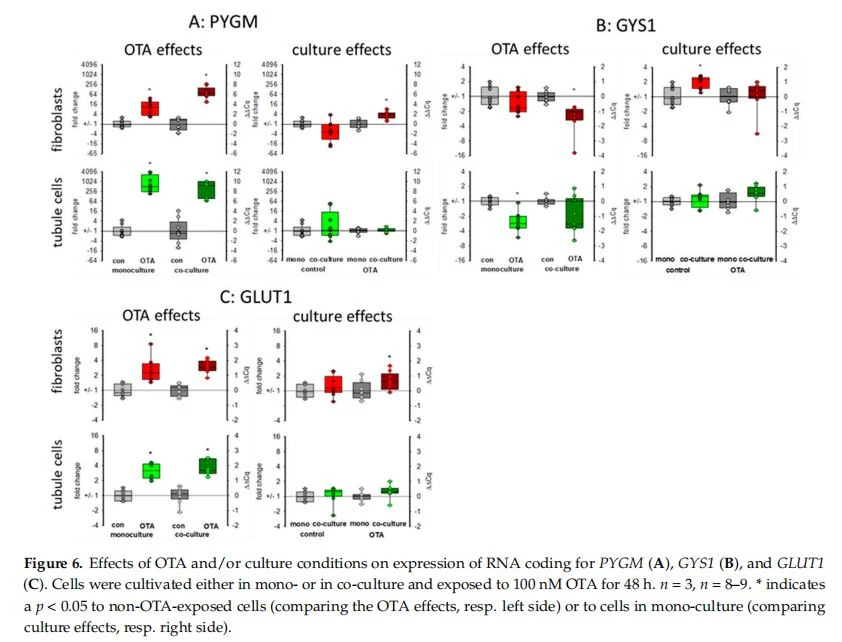
글리코겐 및 포도당 관련 단백질: PYGM, GYS1 및 GLUT1(SLC2A1)그만큼신장또한 포도당 항상성에 관여하며 포도당 신생합성 또는 글리코겐 저장을 동원하여 신체에 포도당을 제공할 수 있습니다[27]. 글리코겐 포스포릴라제(PYGM)는 저장된 글리코겐을 분해하여 포도당을 이동시키는 역할을 합니다[28]. 그림 6A에서 볼 수 있듯이, 100nM OTA에 48시간 노출되면 특히 세뇨관 세포에서 글리코겐 포스포릴라제를 코딩하는 mRNA의 발현이 현저하게 증가했습니다. 그러나, 세뇨관 세포에서 이러한 증가는 배양 조건에 의존하지 않는 반면, 섬유아세포에서 OTA-유도 발현은 세관 세포가 없는 조건과 비교하여 세관 세포의 존재하에 더 높았습니다. 글리코겐 합성효소 1(G^YS1)은 반대 반응을 촉매합니다 인산화효소의 발현은 상향조절된 반면, 합성효소의 발현은 OTA에 의해 세관 세포와 공동 배양물의 섬유아세포에서 하향 조절되었습니다(그림 6B). 이것은 OTA의 포도당 동원 효과를 나타냅니다. 흥미롭게도 포도당 수송체 GLUT1(SLC2A1)의 mRNA 발현도 OTA에 의해 상향 조절되었으며(그림 6C), OTA 노출로 인한 포도당 수요 증가의 아이디어를 강조합니다.
미토콘드리아 관련 단백질: NDUFB10 및 MRPS16
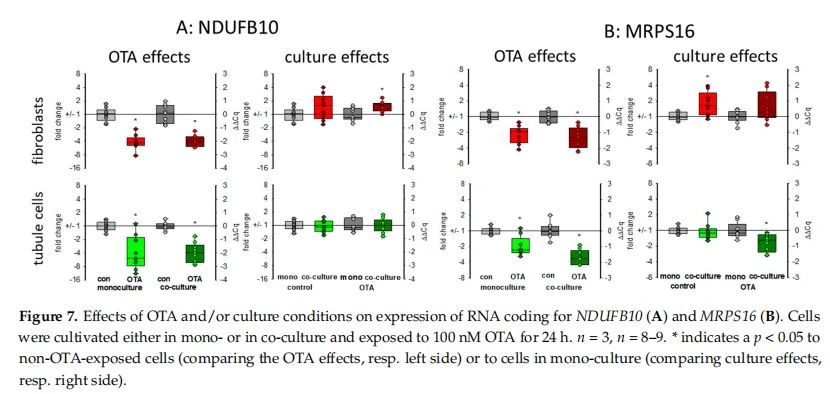
OTA 노출이 미토콘드리아 잠재력의 감소로 이어질 수 있다는 징후가 있습니다.신장세포 [24]는 미토콘드리아 기능이 OTA 노출에 의해 영향을 받을 수 있으며, 이는 섬유아세포의 존재에 의해 추가로 영향을 받을 수 있음을 보여줍니다. 따라서 미토콘드리아 단백질을 코딩하는 다른 RNA의 대표적인 예로서 NDUFB10 및 MRPS16을 코딩하는 mRNA의 발현을 보여줍니다. NDUFBt0는 미토콘드리아 호흡 복합체 I의 일부이며 심장 및신장(NCBI 유전자. 온라인 사용 가능: https://www.ncbi.nlm.nih.gov/gene/4716(2021년 3월 17일 액세스)). MRPS16 유전자는 미토콘드리아 단백질 합성에 역할을 하는 미토콘드리아 리보솜 단백질 S16을 암호화합니다. 그림 7에서 볼 수 있듯이, 24시간 OTA 노출은 두 세포 유형 모두에서 두 mRNA의 발현 감소로 이어졌습니다. 세관 세포에서 NDUFB10 유전자의 감소된 발현은 섬유아세포의 존재에 의해 영향을 받지 않은 반면, 섬유아세포에서는 OTA에 의해 유도된 NDUFB10 발현의 감소가 세관 세포의 존재하에 약간 구제되었습니다(그림 7A). 세뇨관 세포에서 OTA에 의해 미토콘드리아 리보솜 소단위를 코딩하는 유전자의 이미 낮아진 발현은 섬유아세포의 존재 하에 추가적으로 더 낮았지만, 섬유아세포에서 세관 세포의 존재는 MRPS16 mRNA의 약간 더 높은 발현으로 이어졌습니다(그림 7B). 이것은 미토콘드리아 기능이 OTA에 의해 영향을 받을 수 있지만 두 세포 유형이 서로 가까울 때 OTA 효과가 추가로 수정될 수 있음을 보여줍니다.
논의
그만큼신장급성 또는 만성 감염의 위험이 있는 다양한 신독성 물질에 의해 위험에 처해 있습니다.신부전[1]. 다양한 세포 유형에 대한 신독성 물질의 영향을 연구하고 동물 취급을 줄이기 위해 세포 배양이 널리 적용되었습니다. 이러한 세포 배양은 실험 조건을 제어할 수 있고 정의된 세포 유형을 사용하여 물질의 특정 효과를 조사할 수 있다는 추가적인 이점이 있습니다. 이러한 확실한 이점 외에도 몇 가지 고려 사항이 남아 있습니다. 예를 들어 "고향 기관"에서 한 가지 세포 유형(예:신장) 다기관 상호 의존성을 가진 다른 세포 유형(예: 섬유아세포)으로 둘러싸여 있습니다. 따라서 한 종류의 세포만 사용했을 때 관찰되는 물질에 대한 반응은 원래 조직에 가까이 있는 세포의 존재와 동일하지 않을 수 있습니다. 두 가지 다른 쥐의 신장 세포 유형으로 구성된 모델에서 세뇨관과 섬유아세포 사이에 누화(cross-talk)가 존재하여 두 가지 세포 유형이 가까이 있을 때만 반응이 나타나는 것으로 나타났습니다[20]. 그러나 그 stidy의 결과를 인간의 세뇨관 세포를 사용하여 관찰된 결과와 비교할 때 쥐 세포가 유비쿼터스 신독소인 ochrafoxin A(OTA) 치료에 대한 반응에 대해 인간이 말하는 것보다 분명히 더 강력하다는 것이 나타납니다[7]. 따라서 인간 세포로 구성된 공동 배양 모델이 필요합니다. 우리는 인간 근위 세뇨관 세포주 HK2와 인간 섬유아세포를 사용하여 이러한 모델을 확립했습니다. HK2 세포는 필터 삽입물에서 습윤 성장하고 6-웰 플레이트의 바닥에서 성장한 섬유아세포와 함께 모였습니다. apoptosis 및 necrosis와 같은 기본 매개변수를 기록한 후, 우리는 이 모델을 사용하여 세포 주기, EMT 및 세포 대사와 관련된 일부 단백질 및 RNA의 실험에 대한 오크라톡신 A의 효과에 대한 초기 데이터를 차단했습니다.
세포 생존 단백질 함량을 기준으로 보면 OTA와 배양조건 모두 유의미한 효과를 나타내지 않는 것으로 나타났다. 그러나 세포사멸과 괴사 사이의 관계는 세포를 함께 배양할 때 두 세포 유형 모두에서 괴사로 이동했습니다. OTA는 세관 세포에서 세포자멸사를 유도하는 것으로 알려져 있으며[29], 섬유아세포에서도 덜 확장되는 것으로 알려져 있습니다[7]. 이는 현재 결과에도 반영되어 있다. 흥미롭게도, 각각의 다른 세포 유형의 존재는 두 세포 유형 모두에서 세포자멸사 비율을 감소시켰지만 LDH 방출을 증가시켰다. 이것은 이미 다른 세포 유형의 존재가 세포 기능에 영향을 미칠 수 있고 독성 물질에 대한 세포의 반응이 단일 배양과 비교하여 공동 배양에서 다를 수 있다는 첫 번째 힌트입니다.
단백질 및 RNA 발현 우리는 일부 예시적으로 선택된 단백질 및 이를 코딩하는 RNA의 단백질 및 RNA 발현을 결정함으로써 연구를 확장했습니다. OTA가 세포 주기에 영향을 미치는 것으로 나타났기 때문에[21,30] CDKN1A/p21의 발현이 연구되었습니다. Dubourg et.al[21]의 발견에 따르면 OTA는 세뇨관 세포에서 CDKN1A mRNA뿐만 아니라 CDKN1A/p21 단백질의 발현을 증가시켰다. 이들 세포에서 섬유아세포의 존재는 CDKN1A mRNA 발현에 영향을 미치지 않은 반면, 섬유아세포에서는 공동 배양에서만 볼 수 있는 향상된 mRNA 풍부도와 함께 명확한 공동 배양 효과를 볼 수 있었다. 그러나, mRNA 풍부도의 이러한 증가는 단백질 발현에 의해 완전히 반영되지 않았으며, 이는 추가 조절 메커니즘을 제안합니다. 세포 주기에 대한 영향에 대한 추가 통찰력을 얻기 위해 세포 주기 연구를 추가할 수 있습니다. Cyclin-dependent kinase 2(CDK2)는 OTA로 인한 세포 주기 조절 장애에 역할을 하는 것으로 밝혀졌습니다[21]. 세뇨관 세포에서 그것의 mRNA 발현은 공동 배양에서 OTA에 의해 향상되었지만 섬유아세포는 세관 세포에 의해 영향을 받지 않았습니다. 함께, 결과는 세관 세포의 세포 주기가 섬유아세포의 존재에 의해 영향을 받는다는 것을 시사합니다.
또 다른 공동 배양 효과는 섬유아세포에서 COX2의 발현에 대해 관찰되었습니다. 섬유아세포의 경우 세관 세포의 존재는 분명히 향상된 단백질 발현을 유도했으며(쥐 세포에서 관찰된 결과와 유사 [20]), 이는 배양 의존성을 나타내지 않은 세관 세포에서는 볼 수 없었습니다. 이것은 염증에서 섬유아세포의 역할을 나타냅니다.신장 질환단일 배양에서 섬유아세포를 사용한 연구에서 과소평가되었을 수 있습니다. 중간 필라멘트 단백질인 vimentin은 섬유아세포에서 구성적으로 발현되고 상피 세포에서 상피에서 중간엽으로의 전이(EMT) 동안 점점 더 발현된다[10]. 장기간 OTA 노출이 세뇨관 세포에서 콜라겐 III 또는 피브로넥틴의 발현을 증가시킬 수 있는 것으로 나타났지만[7], 본 연구에서 세관 세포에서 EMT-표시 단백질 vimentin의 발현은 OTA 노출 후에 훨씬 더 낮았습니다. 문화 조건의. 또한, 피브로넥틴 mRNA 및 단백질의 발현은 오히려 저하되어 향상되지 않았다. 더욱이, 섬유아세포에서는 어떠한 변화된 발현도 입증할 수 없었기 때문에 이러한 결과는 다른 사람들이 보여주듯이 OTA에 의해 유도된 EMT를 지지하지 않습니다[31].

CISTANCHE는 신장/신장 기능을 향상시킵니다.
공동 배양이 OTA에 의해 유도된 스트레스에 대한 세포 반응에 영향을 미칠 수 있는지 여부를 추가로 테스트하기 위해 우리는 세포자멸사-괴사, 암 발달 및 에너지 대사와 관련된 일부 예시적으로 선택된 RNA의 발현을 결정했습니다. 긴 비암호화 RNA는 많은 세포 조절 과정과 그 탈선, 그리고 신장 섬유증이나 암에서 중요한 역할을 합니다[32]. WISP{3}}AS1은 OTA에 의해 유도되고 신장 종양 세포에서 발현되는 긴 비암호화 RNA입니다[24]. 우리는 세포 유형과 공동 배양 모두에서 OTA에 의한 상향 조절이 상향 조절을 향상시키는 것을 발견했습니다. 이것은 세포자멸사-괴사 균형 및 아마도 종양 형성에 대한 WISP1-AS1의 효과를 악화시킬 수 있습니다. 따라서 공동 배양에서 관찰된 향상된 LDH 방출은 OTA로 인한 괴사에 필요한 것으로 나타난 WISP{12}}AS1의 향상된 함량에 의해 적어도 부분적으로 설명될 수 있습니다.
WISP{0}AS1또한 미토콘드리아를 포함한 대사에 역할을 하는 것으로 의심되었습니다[24]. 위 상피 세포에서 OTA는 미토콘드리아 기능 장애를 일으키는 것으로 나타났습니다[33]. 을 위한신장OTA 노출이 미토콘드리아 전위에 영향을 미치는지 여부에 대해 논란의 여지가 있는 결과가 있다[21,24]. 감소된 미토콘드리아 잠재력은 손상된 미토콘드리아의 결과일 수 있거나 미토콘드리아 손상을 진행할 수 있습니다. 미토콘드리아 단백질의 감소된 발현은 미러링된 기능 장애를 일으키거나 미토콘드리아 잠재력을 변화시킬 수 있습니다. 손상된 미토콘드리아 기능은 세포가 에너지 공급을 보장하기 위해 대체 경로를 사용하도록 합니다. 부적절한 미토콘드리아 기여 하의 에너지 공급은 해당 작용의 사용 증가로 유지되어 젖산 생산을 향상시킬 수 있습니다. 그러나 HEK293 세포에서 인간 배아신장세포주에서 OTA가 오히려 해당과정의 감소를 유도하고 글루타민으로부터의 젖산 생성으로 인한 젖산의 증가된 양이 lncRNA WISP{0}}AS1의 발현에 의존하는 것으로 밝혀졌다[24]. 대조적으로, 위 상피 세포에서, OTA 노출은 해당 분해를 향한 포도당 대사의 재프로그래밍을 유도하고 트리카르복시산 순환 활성을 감소시키는 것으로 나타났습니다[34]. 우리는 여기서 (1) OTA가 미토콘드리아 단백질 합성(MRPS16)과 에너지 생산(NDUFB10)에 역할을 하는 대표적으로 선택된 두 가지 미토콘드리아 단백질의 mRNA 발현을 감소시키고 (2) 글리코겐 처리 효소가 조절된다는 것을 보여줄 수 있습니다 강화된 포도당이 동원될 수 있는 방식으로(GYS1 아래로 및 PYGM 위로). 또한 더 높은 GLUT1 전송 용량이 유도되는 것으로 보입니다. 그러나 이러한 OTA로 인한 변경은 배양 조건과 거의 독립적이었습니다.
결론적으로, 우리는 공동 배양 조건에서 세포의 반응이 단일 배양에서 관찰된 반응과 다를 수 있음을 보여주었지만, 여기에서 연구된 모든 매개변수가 배양 의존적인 것은 아닙니다. 그러나 여기에 제시된 결과에 따라 가능한 한 공동 배양의 사용을 선호해야 하며, 따라서 한 가지 세포 유형만 연구할 때 발생하지 않는 효과를 감독할 가능성을 피해야 합니다. 세포가 서로 통신하는 방법에 대한 질문이 남아 있습니다. 쥐의 공동 배양 모델에 대한 연구에서 COX{5}}의존적 메커니즘이 밝혀졌으며[20] 쥐에서 레티노산이신장세포 [35]. 또한 OTA가 세포 에너지 대사와 그 안에서 미토콘드리아의 역할을 방해한다면, 왜, 어떻게 방해하는지에 대한 질문이 남아 있습니다.
LDH 및 Caspase{0}} 활성 및 단백질 함량 측정용해를 위해 세포를 얼음처럼 차가운 PBS 완충액으로 두 번 세척하고 MOPStriton 완충액(20mM 3-(N-모르폴리노)프로판설폰산, pH 7.4, 0에서 수집 및 용해했습니다. 1% Triton X100). 세포 용해물의 단백질 함량은 bicinchoninic acid를 사용하여 결정되었습니다[36,37]. 괴사에 대한 척도로서 배지 또는 세포 용해물의 LDH 활성은 [20]에 자세히 설명된 바와 같이 Bergmeyer [38]에 따라 결정되었습니다. 세포 사멸에 대한 측정으로서 Caspase{13}} 활성은 [39]에 설명된 대로 florigenic caspase{14}} 기질(DEVD-AFC)을 사용하여 결정되었습니다. 간단히 말해서, 60μL 세포 용해물을 65μL 반응 완충액(20mmol/L 피페라진{20}},{21}}비스(2에탄설폰산(PIPES), 4mmol/L EDTA, 0.2% {{26} }[(3-콜아미노프로필)디메틸암모니오]-1-프로판설페이트(CHAPS), 10mmol/L 디티오트레이톨(DTT), pH 7.4) 42µmol/L DEVD-AFC(Aspglu-val-asp{{ 36}}amino-4-trifluoromethylcoumarin, end-concentration) at 37 ºC. 절단된 생성물(AFC)의 형광은 400 nm 여기 및 505 nm 방출에서 측정되었습니다. 절단된 AFC는 알려진 AFC를 사용한 검량선으로 정량화되었습니다. 농도.
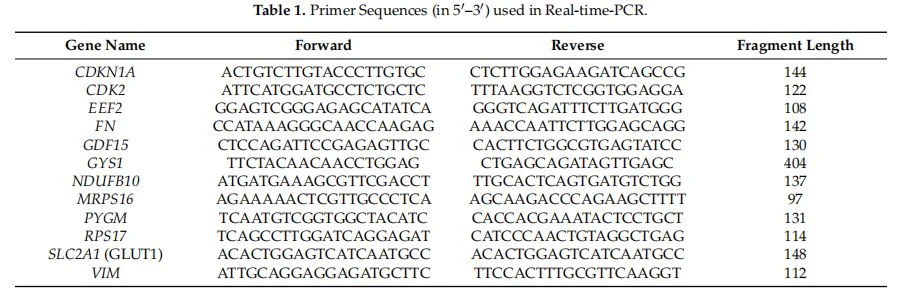
RT-PCR 총 리보핵산(RNA)의 분리는 Trizol 시약(Life Technologies, Darmstadt, Germany)을 사용하여 수행되었습니다. 세포를 세척한 후 Trizol 시약으로 용해하고 반응 튜브에 옮겼습니다. 클로로포름의 첨가 및 원심분리(12,{1}}×g) 후, 상부 상을 수집하고 얼음처럼 차가운 이소프로판올과 혼합하였다. 원심분리(12,{4}} x g) 후 상층액을 제거하고 펠렛을 75% 에탄올로 두 번 세척하고 최종적으로 물에 용해시켰다. 역전사는 Invitrogen(Thermo Fisher Scientific, Waltham, MA, USA)의 상용 키트를 사용하여 지침에 따라 수행했습니다. Real-time PCR은 SYBR Green 시약(Invitrogen)을 사용하여 수행되었습니다. 프라이머는 스위스 Balgach 소재 Microsynth AG에서 합성했습니다. Primer sequence는 Table 1과 같다. EEF2와 RPS17의 발현을 참고로 하여 2∆∆Ct 방법으로 유전자 발현의 배수 변화를 계산하였다. 처리되지 않은 HK2 세포로 처리된 OTA를 비교할 때 RNA 시퀀싱 데이터에서 이 두 유전자의 발현이 덜 변경된 것으로 밝혀졌습니다(미공개 결과).
웨스턴 블롯 소듐도데실설페이트-폴리아크릴아미드 겔 전기영동(SDS-PAGE)에 의해 단백질을 분리한 후, 단백질을 니트로셀룰로오스 막으로 옮겼다. 그 후, 멤브레인의 자유 결합 부위는 TRIS 완충 식염수(3mM TRIS 염기, 14{7}}mM NaCl, 0.17mM Tris에 녹인 무지방 분유의 5% 용액)에 의해 차단되었습니다. -HCl, pH 7.4) 0.1% Tween20 함유. TRIS 식염수와 5% 소 혈청 알부민(TRIS-BSA, 희석액은 표 2 참조)에 희석된 첫 번째 항체를 첨가하고 막을 밤새 인큐베이션했습니다. 세척 후, TRIS-BSA의 형광 결합 이차 항체를 90분 동안 첨가하였다. LICOR 검출 시스템을 사용하여 두 번째 항체의 형광을 기록했습니다.

CISTANCHE는 신장/신장 통증을 개선합니다