B형 간염 바이러스 감염에 대한 톨-유사 수용체 반응 및 만성 B형 간염 치료를 위한 면역 조절제로서의 TLR 작용제의 가능성: 개요 파트 2
Jun 21, 2023
3. HBV 감염에 의한 선천면역반응 억제
HBV에 의한 면역 회피 또는 억제의 정확한 메커니즘은 불분명합니다. 또한 HBV가 선천적 인식을 회피하거나 억제하는지, 선천적 면역을 자극하는지 여부는 아직 확인되지 않았습니다[75]. 그러나 HBsAg 및 HBeAg를 포함한 HBV 단백질 수준은 HBV 지속성과 관련이 있으며 이는 숙주 면역 반응의 억제에서 바이러스 단백질의 역할을 암시합니다[76-78].
HBV 면역 회피는 B형 간염 바이러스가 숙주의 면역 반응을 돌연변이시키거나 선택적으로 억제하여 면역 체계가 바이러스 감염을 효과적으로 제거할 수 없도록 하는 능력을 말합니다. 이 회피 메커니즘은 HBV의 장기 지속성, 복제 및 재생산에 대한 중요한 이유 중 하나입니다.
면역은 병원체에 저항하는 인간 면역 체계의 능력을 말합니다. HBV에 감염된 사람의 경우 면역력이 강한 사람은 체내에서 많은 수의 항체를 생성할 수 있으며, 이는 면역 반응을 촉진하고 바이러스를 제거하는 데 도움이 될 수 있습니다. 면역력이 약한 사람은 다발성 B형 간염 바이러스 감염을 경험하고 만성 B형 간염으로 발전할 가능성이 있습니다.
따라서 HBV 면역 회피는 면역과 밀접한 관련이 있습니다. 강한 면역력은 바이러스의 탈출 메커니즘을 극복할 수 있는 반면 약한 면역력은 바이러스에 의해 신체 건강을 더욱 손상시킬 수 있습니다. 따라서 면역력 향상은 B형 간염 환자가 바이러스에 대한 저항력을 높이는 중요한 수단 중 하나입니다. 이러한 관점에서 우리는 면역력을 향상시켜야 합니다. Cistanche는 면역력을 크게 향상시킬 수 있습니다. Cistanche의 다당류는 인간 면역 체계의 면역 반응을 조절하고 면역 세포의 스트레스 능력을 향상시키며 면역 세포의 면역력을 강화할 수 있습니다. 살균 효과.

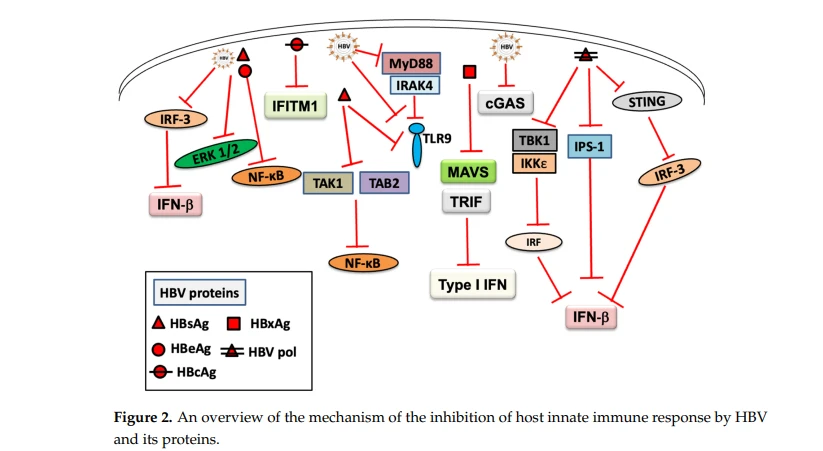
여러 연구를 통해 HBV에 의한 선천적 면역 반응 조절에 대한 이해가 향상되었습니다[38,79]. HBV는 IRF-3, NF-κB(nuclear factor kappa B) 및 세포외 신호 조절 키나아제(ERK) 1/2의 활성화를 방해하여 간세포에서 TLR 매개 항바이러스 반응을 억제하는 것으로 보고되었습니다. 80]. HBV는 환자에게서 얻은 pDC에서 MyD88-IRAK4 축을 억제하여 TLR9 반응을 억제하는 것으로 나타났습니다[54]. 또 다른 연구에서는 HBV에 노출된 모든 말초 B 세포 하위 집합에서 TLR9 발현과 TLR9-매개 B 세포 기능이 억제되었습니다[81].
만성 HBV 감염 환자의 말초 DC 하위 집합에서 TLR4, 8 및 9의 발현 장애도 보고되었으며 [82], 이는 감소된 선천 면역 기능을 유발했습니다. HBV 중합효소는 IκB kinase-ε와 DEAD-box RNA helicase 사이의 상호작용을 방해하고 IFN 생성을 억제함으로써 IRF 활성화를 차단하는 것으로 보고되었습니다[83]. 또 다른 연구에서는 HBV 중합효소에 의한 STING 매개 IRF-3 활성화 및 IFN 생산의 억제를 보여주었습니다[84]. HBsAg는 쥐의 간세포에서 NF-κB, IRF-3 및 MAPK의 활성화를 억제하는 것으로 보고되었습니다[85]. 또한, TLR3-자극 쥐의 KC 또는 LSEC에 의해 유도된 T 세포 활성화는 HBsAg에 의해 억제되었으며[85], 이는 HBsAg가 TLR 매개 면역 반응을 약화시키거나 억제할 가능성이 있음을 시사합니다. 인간 골수종 B 세포주인 RPMI 8226을 사용하여, HBsAg가 전사 인자인 CREB를 활성화시키는 HBsAg 유도 인산화를 억제함으로써 TLR9 기능 장애를 유도하여 TLR9 프로모터 활성을 방지함을 보여주었다[81].
최근 연구는 또한 TAK1 및 TAB2와의 상호작용에 의한 NF-κB 경로의 HBsAg 매개 간섭을 보고하여 억제된 면역 반응[86]을 유도합니다. 또한, HBc 매개 인터페론 유도 막횡단 단백질 1(IFITM1) 발현의 하향 조절[87] 및 HBeAg 매개 NF-κB 신호 전달 경로 억제, 선천적 면역 반응[88,89]도 보고되었습니다. HBV X 단백질(HBx)은 선천 면역 반응을 억제하는 데 중요한 역할을 하며 여러 연구에서 MAVS 단백질을 하향 조절하여 I형 IFN 생성 억제에 HBx가 연관되어 있음을 보여주었습니다[90-93]. 선천 면역 신호 전달의 핵심 구성 요소인 TIR 도메인 포함 어댑터 유도 인터페론 베타(TRIF)의 HBx 매개 하향 조절도 나타났습니다[43]. HBx는 5'-UTR에서 단일 CpG 메틸화를 통해 TRIM22의 전사를 억제하여 IRF-1의 결합 친화력을 감소시키고 IFN 매개 항-HBV 반응을 억제할 수 있습니다[94]. 최근 간세포에서 HBx에 의한 선천성 면역 회피의 핵심 메커니즘이 보고되었는데, ADAR1(HBx-induced adenosine deaminases act on RNA 1)이 아데노신을 탈아미노화하여 HBV RNA와 상호작용하고 숙주 면역 인식을 피함으로써 이노신을 생성합니다[19].
HBV RNA의 N6 메틸아데노신(m6A) 변형을 통해 RIG-I 신호를 약화시켜 면역 회피가 이전에 보고되었습니다[95]. 최근에는 IRF-3 탈인산화 및 IFN 합성 감소와 함께 선천 면역에 영향을 미치는 phosphatase and tensin homolog(PTEN)의 HBV 유도 N6 m6A 변형도 보고되었습니다[96]. Zhou et al. HBV는 헥소키나제를 포함하는 삼원 복합체를 형성하고 RIG-I로부터 MAVS를 격리함으로써 RIG-I 유도 IFN 생산을 억제한다고 보고했습니다[97]. HBV에 의한 NK 세포 기능 손상도 보고되었습니다[98]. HBV는 완전히 기능하는 cGAS-STING 경로를 가진 HepG2-NTCP 세포에서 cGAS 감지를 피할 수 있습니다[99]. 그러나 메커니즘은 아직 알려지지 않았습니다. 더욱이, PHH에서 cGAS에 의한 감염성 HBV 비리온이 아닌 노출된 HBV rcDNA의 감지에 대한 시연은 HBV 감염 [99,100] 동안 cGAS 감지의 손상을 나타내지만 정확한 메커니즘은 불분명합니다.
위의 결과로부터, HBV 감염 및 그 단백질 성분을 확립하는 것이 서로 다른 알려지거나 알려지지 않은 메커니즘에 의해 숙주 선천 면역 반응(그림 2)을 억제/억제할 수 있다고 생각하는 것이 합리적이며, 따라서 면역 억제/회피에 대한 자세한 이해가 필요합니다. HBV 감염을 제어하기 위한 새로운 치료 및 예방 전략을 고안하는 데 중요합니다.
4. 면역 조절제로서의 TLR 작용제의 가능성
만성 HBV 감염에서 면역 반응이 억제되기 때문에 면역 반응의 회복은 만성 감염 결과를 개선하는 데 중요하며 TLR 작용제, 체크포인트 억제제 및 치료 백신과 같은 면역 조절제를 사용하여 달성할 수 있습니다[4,101,102]. 이 연구에서 우리는 주로 만성 감염에서 면역 반응을 향상시키는 면역 조절제로서 TLR 작용제를 사용하는 데 중점을 두었습니다. TLR 작용제는 면역 치료 효과를 조절하는 데 중요한 역할을 합니다[103,104]. 최근 TLR 작용제는 항 HBV 효과를 발휘할 수 있는 IFN, 전 염증성 사이토 카인 및 케모카인의 생성을 유도하는 능력 때문에 백신 보조제 또는 면역 조절제로 사용하는 데 관심을 끌었습니다 [105,106]. TLR1/2 및 TLR3 작용제는 PHH에서 HBV 복제를 억제할 수 있습니다[105].
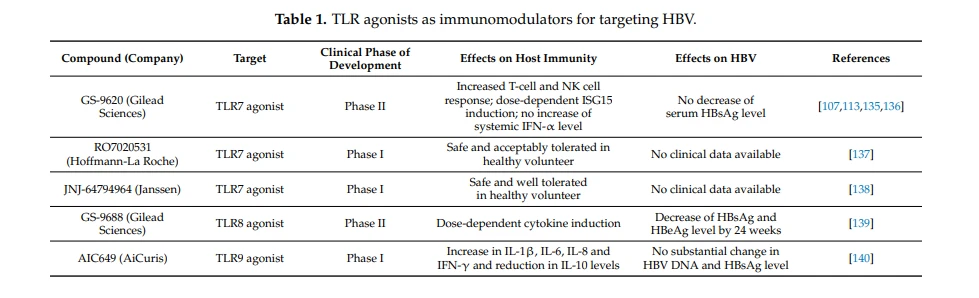
또 다른 연구에서는 경구용 TLR7 작용제인 GS-9620(베사톨리모드)가 뉴클레오사이드 유사체(NA)와 함께 T 세포 및 NK 세포 반응을 증가시키고 NK 세포의 능력을 감소시켜 면역 조절 효과를 긍정적으로 향상시키는 것으로 나타났습니다. 만성 감염 환자의 T 세포를 억제하는 세포 [107]. 그러나 NA와 GS-9620의 병용요법 후 HBsAg 수치의 유의한 변화는 발견되지 않았다[107]. 최근 연구에 따르면 이중 작용 TLR7/8(R848) 및 TLR2/7(CL413) 작용제는 단일 작용 TLR7(CL264) 또는 TLR9(CpG-B) 작용제보다 HBV 복제를 억제하는 데 더 강력합니다[108]. 광범위한 사이토카인 레퍼토리를 유도하는 이중 작용 TLR 작용제의 더 높은 잠재력을 강조합니다. 여러 연구에서 동물 모델에서 HBV를 억제하는 TLR 작용제의 능력이 입증되었습니다.
이전 연구에서 GS-9620는 만성적으로 감염된 침팬지에서 IFN-, 기타 사이토카인 및 케모카인의 생성을 증가시켜 면역 반응을 유도하는 것으로 나타났습니다. 그것은 2로그 이상의 바이러스 부하와 혈청 HBsAg 및 HBeAg 수준을 50%까지 감소시켰습니다[109]. 또 다른 최근 연구에서 GS-9620 작용의 메커니즘은 CHB 침팬지에서 조사되었으며 GS-9620는 간에서 면역 세포의 응집과 관련된 항-HBV 반응을 발휘하여 다음 중 하나를 수행할 수 있다고 보고되었습니다. HBV에 감염된 세포를 죽이거나 항체를 생성하여 HBV가 새로운 세포를 감염시키는 것을 막을 수 있습니다[110].
CHB의 우드척 모델에서 GS-9620의 투여는 또한 혈청 바이러스 DNA와 간내 우드척 간염 바이러스(WHV) DNA 복제 중간체, WHV cccDNA 및 WHV RNA [111]의 상당한 감소를 유도하여 TLR7 작용제는 우드척 모델에서 항 HBV 효과가 있는 강력한 면역 조절제입니다. 또한, HCC 발생률은 GS-9620- 처리된 우드척에서 현저하게 감소했습니다[111]. 또 다른 연구에서 엔테카비르(ETV)와 함께 또 다른 TLR7 작용제인 APR002를 경구 투여하면 WHV에 만성 감염된 우드척에서 ISG 발현이 향상되고 WHV cccDNA가 감소하는 것으로 나타났습니다[112]. 1b상 임상 시험에서 GS-9620의 경구 투여는 안전하고 내약성이 좋은 것으로 밝혀졌으며, 이는 상당한 전신 IFN- 수준 없이 말초 ISG15 생산을 향상시켰습니다[113]. 경구용 TLR7 작용제인 AL-034는 마우스 모델에서 HBV에 대해 효능을 보였다[114].
새로운 TLR7 작용제(T7-EA로 명명), 명반 보조제 및 재조합 HBsAg 단백질로 구성된 HBV 치료 백신의 평가는 T7-EA가 Th{{3} }마우스 모델에서 유형 면역 반응, 증가된 T 세포 반응 및 HBsAg 특이적 IgG2a 역가[115]. 이전 연구에서는 TLR8 agonist ssRNA40이 간 상주 선천 면역 세포를 선택적으로 활성화할 수 있다고 보고했으며, 점막 관련 불변 T 세포와 NK 세포는 TLR8 활성화 후 IFN- - 생성 세포로 확인되어[116] 가능성을 강조했습니다. CHB 치료에 TLR8 작용제를 사용하는 것. 경구용 TLR8 작용제인 GS-9688(selgantolimod)는 HBV에 감염된 1차 인간 간세포에서 강력한 항-HBV 분자로 발견되었습니다[117].

또 다른 연구에서 GS-9688는 CHB의 우드척 모델에서 항-HBV 효과를 발휘하는 것으로 보고되었습니다[118]. 여기에서 GS-9688는 바이러스 부하를 5로그 이상 감소시키고 우드척 간염 표면 항원(WHsAg)의 50%를 억제했습니다. 치료받은 만성 감염된 우드척[118]. 또 다른 최근 연구는 또한 CHB에서 GS-9688의 치료 가능성을 보여주었습니다. 여기서 GS-9688는 인간 PBMC에서 NK 세포, HBV 특정 CD8 및 T 세포, CD4 + 여포 보조 T 세포, 점막 관련 불변 T 세포[119]. TLR9- 리간드의 항-HBV 활성은 이전에 보고된 바 있습니다[120,121]. TLR9 작용제인 CpG oligodeoxynucleotides (ODNs)도 우드척 모델에서 평가되었으며 CpG와 ETV의 병용투여에 의해 WHsAg 혈청 농도가 억제되는 것이 관찰되었으나 어느 제제 단독으로는 효과가 관찰되지 않았다[122] , 시너지 효과를 제안합니다. CpG 올리고뉴클레오티드는 HBsAg 또는 HBcAg로 자극된 전혈에서 HBV 특이 IL2 및 IFN- 반응을 증가시켰습니다[123]. 초기 연구에서는 TLR9 작용제인 AIC649가 WHV DNA와 WHsAg를 독특한 2상 반응 패턴으로 감소시키는 능력을 보고했습니다[124].
최근에 AIC649는 ETV와 결합하여 CHB의 우드척 모델에서 WHV DNA와 WHsAg를 효과적으로 억제할 수 있음이 밝혀졌습니다[125]. 이전 연구에서는 TLR3 리간드인 폴리(I:C)를 HBV 복제를 효과적으로 억제하는 HBV 치료 백신(pHBV-백신으로 명명)의 효과적인 보조제로 사용하는 것을 보여주었습니다[126]. 최근 연구에서는 폴리(I:C)가 F4/80 항체와 접합된 인산칼슘 나노입자에 의해 전달되었을 때 간 감염 상태가 개선되었다고 보고했습니다. 또한 T 세포 반응과 간내 사이토카인 및 케모카인 생산을 강화하여 쥐의 HBsAg, HBeAg 및 HBV DNA 수준을 크게 감소시켰습니다[127]. 최근 연구에 따르면 HBV는 SIGLEC-3(CD33)과 상호작용하여 HBV 감염에 대한 면역 체크포인트 수용체 역할을 하고 숙주 면역을 손상시키는 것으로 나타났습니다[128].
CHB 환자의 PBMC에서 항-SIGLEC-3 mAb가 효과를 역전시키고 TLR-7 작용제인 GS-9620에 대한 사이토카인 반응을 유도할 수 있는 것으로 나타났습니다[128]. 백신 보조제로서의 TLR 작용제는 현재 HBV 백신을 포함한 다양한 인간 백신에 대해 조사 중이며 백신 연구에서 유망한 것으로 보입니다[129,130]. 특정 TLR 작용제를 포함하는 백신은 특정 TLR을 활성화하고 보호 면역에 직접 참여하지 않고 백신 효능을 향상시킬 수 있습니다[131,132].
만성 HBV를 치료하기 위한 치료용 합성 긴 펩티드(SLP) 기반 백신의 조사에서 프로토타입 HBV-코어 SLP의 TLR2- 리간드 접합이 생체 외 기능 환자 T 세포 반응을 유발하는 것으로 나타났습니다[133 ], TLR 작용제가 HBV 백신에서 잠재적 보조제로도 작용할 수 있음을 시사합니다. 최근 연구는 또한 PRR 리간드가 HBV 제어에 대한 선천 면역을 유도하는 능력을 입증했습니다[134]. 따라서 HBV 치료제/백신에서 TLR 작용제의 사용은 유망한 것으로 보이며 HBV 만성 감염을 통제하는 데 효과적인 도구가 될 수 있으며 추가 조사가 필요합니다. 개발 중인 면역조절제로서의 TLR 효능제는 표 1에 제시되어 있다.
5. 결론
효과적인 HBV 백신의 가용성에도 불구하고 만성 HBV 감염은 여전히 전 세계적인 건강 문제로 남아 있습니다. 최근 연구는 HBV를 교활한 바이러스로 강조했으며, 이는 HBV의 은폐 특성에 대한 의문을 제기하고 선천적 면역 반응을 방해하고 감염을 일으키는 바이러스의 능력을 보여줍니다. 이용 가능한 데이터에서 만성 HBV 감염은 TLR 반응 및 다운스트림 사이토카인의 억제를 포함하여 숙주 선천 면역의 조절 장애를 유발한다고 가정합니다.
TLR 작용제를 사용하여 숙주 선천 면역 반응을 유도하면 숙주 선천 면역 반응, 특히 TLR과 바이러스 성분 간의 상호 작용을 더 잘 이해하는 데 도움이 될 수 있습니다. 따라서, TLR 작용제가 HBV 감염 동안 선천성 면역 반응을 개선하는 유망한 결과를 보여주었지만, 숙주 면역 반응을 조절하고 면역성을 회복시키는 메커니즘을 조사하기 위해서는 추가 연구가 필요합니다.
저자 기여:
개념화, MEHK, MK 및 KT-K.; 쓰기-원본 초안 준비, MEHK; 저술-검토 및 편집, MEHK, MK 및 KT-K.; 감독, KT-K. 모든 저자는 원고의 출판된 버전을 읽고 이에 동의했습니다.
자금 조달:
이 연구는 일본 의학연구개발청(AMED)의 보조금(혁신 약물 개발 네트워크)의 지원을 받았습니다.
기관 검토 위원회 성명서:
적용되지 않습니다.
정보에 입각한 동의서:
적용되지 않습니다.
감사의 말:
친절한 협력에 대해 Takahiro Sanada와 Sayeh Ezzikouri에게 감사드립니다.

이해 상충:
저자는 이해 상충을 선언하지 않습니다.
참조
1. Liang, TJ B형 간염: 바이러스와 질병. 간장학 2009, 49, S13–S21. [교차 참조]
2. 마스트로도메니코, M.; 무셀리, M.; Provvidenti, L.; Scatigna, M.; Bianchi, S.; Fabiani, L. HBV에 대한 장기 면역 보호: 관련 요인 및 결정 요인. 흠. 백신 Immunother. 2021, 17, 2268–2272. [교차 참조]
3. 세계보건기구. B형 간염. 7월 27일 업데이트됨. 온라인 이용 가능: https://www.who.int/news-room/fact-sheets/detail/hepatitis-b (2021년 7월 28일 접속).
4. Ezzikouri, S.; Kayesh, MEH; Benjelloun, S.; 코하라, M.; Tsukiyama-Kohara, K. 만성 B형 간염의 기능적 치료를 달성하기 위한 숙주 선천 및 적응 면역을 표적으로 함. 백신 2020, 8, 216. [CrossRef]
5. Lee, WM B형 간염 바이러스 감염. N.Engl. J.메드 1997, 337, 1733–1745. [교차 참조]
6. 황, HL; 젱, 캔자스; 후, CP; 차이, CH; 로, SJ; Chang, C. B형 간염 바이러스의 구조 단백질의 식별 및 특성화: 스플라이싱된 RNA에 의해 암호화된 중합효소 및 표면 융합 단백질. Virology 2000, 275, 398–410. [교차 참조]
7. 후제이; Seeger, C. Hepadnavirus 게놈 복제 및 지속성. 콜드 스프링 하브. 관점. 중간 2015, 5, a021386. [교차 참조]
8. 글리브, D.; Bremer, CM B형 간염 바이러스의 분자 바이러스학. 세민. 간 질환 2013, 33, 103–112. [교차 참조]
9. Yan, H.; Zhong, G.; 쉬, 지.; 그는 W.; Jing, Z.; 가오, Z.; Huang, Y.; Qi, Y.; Peng, B.; Wang, H.; 외. 소듐 타우로콜레이트 운반 폴리펩타이드는 인간 B형 및 D형 간염 바이러스에 대한 기능적 수용체입니다. eLife 2012, 1, e00049. [CrossRef] [펍메드]
10. 다케우치, JS; 후카노, K.; 이와모토, M.; Tsukuda, S.; 스즈키, R.; 아이자키, H.; 무라마츠, M.; 와키타, T.; 수로, C.; Watashi, K. Hepadnaviruses에 의해 유도된 Sodium Taurocholate Cotransporting Polypeptide의 단일 적응 돌연변이가 바이러스 종 특이성을 결정합니다. J. 비롤. 2019, 93, e01432-18. [CrossRef] [펍메드]
11. 루즈, BT; Sehrawat, S. 바이러스에 대한 면역 및 면역 병리학: 결과를 결정하는 것은 무엇입니까? Nat. Immunol 목사. 2010, 10, 514–526. [CrossRef] [펍메드]
12. Zeisel, MB; Lucifora, J.; 메이슨, WS; 수로, C.; 벡, J.; 레브레로, M.; 칸, M.; 놀, 펜실베니아; Benkirane, M.; 듀란텔, D.; 외. HBV 치료를 향하여: HBV 치료에 대한 ANRS 워크숍의 최첨단 및 미해결 질문 보고서. 거트 2015, 64, 1314–1326. [교차 참조]
13. McMahon, BJ B형 간염의 역학 및 자연사. Semin. 간 질환 2005, 25(Suppl. S1), 3–8. [교차 참조]
14. Wieland, S.; Thimme, R.; 퍼셀, RH; Chisari, FV B형 간염 바이러스 감염에 대한 숙주 반응의 게놈 분석. 절차 Natl. Acad. 과학. USA 2004, 101, 6669–6674. [CrossRef] [펍메드]
15. 플레처, SP; 친디제이; 쳉, DT; Ravindran, P.; 비터, H.; Gruenbaum, L.; 코트, PJ; 엄마, H.; Klumpp, K.; Menne, S. B형 간염의 우드척 모델에서 자가 제한 감염과 관련된 간내 전사 시그니처 식별. Hepatology 2013, 57, 13–22. [CrossRef] [펍메드]
16. 던, C.; 페파, D.; 칸나, P.; Nebbia, G.; 존스, M.; 브렌디쉬, N.; 라스카, RM; 브라운, D.; 길슨, RJ; 테더, RJ; 외. 급성 B형 간염 바이러스 감염 환자의 초기 면역 반응에 대한 시간적 분석. 위장병학 2009, 137, 1289–1300. [CrossRef] [펍메드]
17. 수슬로프, A.; 볼다노바, T.; 왕, X.; Wieland, S.; Heim, MH B형 간염 바이러스는 인간 간에서 선천적 면역 반응을 방해하지 않습니다. 위장병학 2018, 154, 1778–1790. [교차 참조]
18. Ma, Z.; 장 E.; 양디; Lu, M. 항바이러스 선천적 반응을 개시하고 특정 적응 면역 반응을 촉진함으로써 B형 간염 바이러스 감염의 통제에 대한 Toll 유사 수용체의 기여. 셀 몰. 면역. 2015, 12, 273–282. [CrossRef] [펍메드]
19. 왕, L.; Sun, Y.; 송, X.; 왕, Z.; Zhang, Y.; Zhao, Y.; Peng, X.; 장 X.; Li, C.; 가오, C.; 외. B형 간염 바이러스는 간세포에서 RNA 아데노신 데아미나제 ADAR1- 매개 바이러스 RNA 편집을 통해 면역 인식을 피합니다. 셀 몰. 면역. 2021, 18, 1871–1882. [교차 참조]
20. 쓰게, M.; Takahashi, S.; 히라가, N.; 후지모토, Y.; Zhang, Y.; 미츠이, F.; 아베, H.; Kawaoka, T.; 이마무라, M.; 오치, H.; 외. 면역 결핍 인간 간세포 키메라 마우스에서 B형 간염 바이러스 감염이 인터페론 반응에 미치는 영향. J. 감염. 디스. 2011, 204, 224–228. [교차 참조]
21. 무츠, P.; 메츠, P.; 렘프, FA; 벤더, S.; Qu, B.; Schoneweis, K.; Seitz, S.; Tu, T.; Restuccia, A.; Frankish, J.; 외. HBV는 선천적 면역 반응을 우회하고 인터페론의 항바이러스 활동으로부터 HCV를 보호하지 않습니다. 위장병학 2018, 154, 1791–1804.e1722. [교차 참조]
22. Luangsay, S.; Gruffaz, M.; 이소르체, N.; 테스토니, B.; Michelet, M.; Faure-Dupuy, S.; Maadadi, S.; Ait-Goughoulte, M.; 부모, R.; Rivoire, M.; 외. B형 간염 바이러스에 의한 간세포 선천성 반응의 조기 억제. J. 헤파톨. 2015, 63, 1314–1322. [교차 참조]
23. 사나다, T.; Tsukiyama-Kohara, K.; 신이티; 야마모토, N.; Kayesh, MEH; 야마네, D.; 지 다카노; Shiogama, Y.; Yasutomi, Y.; Ikeo, K.; 외. 전체 게놈 및 포괄적인 RNA 시퀀싱에 의한 완전한 Tupaia belangeri transcriptome 데이터베이스 구축. 과학. 2019, 9, 12372. [CrossRef] [PubMed]
24. 리우, HY; Zhang, XY B형 간염 바이러스의 선천적 면역 인식. 세계 J. Hepatol. 2015, 7, 2319–2322. [CrossRef] [펍메드]
25. 장, Z.; 트리플러, M.; 레알, CI; 베르너, M.; 루오, X.; Schefczyk, S.; 켐퍼, T.; 아나스타시우, OE; Ladiges, Y.; Treckmann, J.; 외. B형 간염 바이러스 입자는 기본 인간 간세포의 감염 시 초기에 Toll-like Receptor 2 신호를 활성화합니다. 간장학 2020, 72, 829–844. [교차 참조]
For more information:1950477648nn@gmail.com