종단 데이터에서 노화 원리에 대한 비지도 학습 파트 2
Jun 06, 2023
단일 변수의 동역학에 대한 노화의 감소는 확률론적 방정식의 형태로 노화의 정량적 모델을 만듭니다. (1) 심판에서. 18 그리고 이 연구는 생리학적 상태의 역학에서 사망률을 도출하기 위한 이전 제안과 구별됩니다58,59. 이러한 모델은 매우 높은 차원의 공간에서 랜덤 워크를 수학적으로 은유하므로 추가 가정 없이는 생물학적 신호를 해석하거나 추론하기 어려울 수 있습니다. 우리는 임계성이 유용한 이론적 관찰이며 딥 러닝은 모델 매개변수 및 유기체 특성과의 관계 식별을 단순화하기 위해 함께 사용할 수 있는 훌륭한 실용적인 도구라고 믿습니다. Gompertz의 사망률 법칙에 대한 설명은 노화 이론의 증거가 불충분하다는 점에 주목합니다. 생리학적 지표의 확률적 세로 역학을 모델 예측과 일치시키는 것은 훨씬 더 어려운 과제이며 모델 유효성 검사를 위한 효과적인 도구로 사용해야 합니다.
Cistanche의 배당체는 또한 심장 및 간 조직에서 SOD의 활성을 증가시킬 수 있으며 각 조직에서 리포푸신 및 MDA의 함량을 크게 감소시켜 다양한 활성 산소 라디칼(OH-, H₂O₂ 등)을 효과적으로 제거하고 이로 인한 DNA 손상으로부터 보호합니다. OH-라디칼에 의해. Cistanche phenylethanoid glycosides는 자유 라디칼의 강력한 소거 능력, 비타민 C보다 높은 환원 능력, 정자 현탁액에서 SOD의 활동을 개선하고 MDA의 함량을 감소시키며 정자 막 기능에 대한 특정 보호 효과가 있습니다. Cistanche 다당류는 D-갈락토스에 의해 유발된 실험적으로 노화된 쥐의 적혈구 및 폐 조직에서 SOD 및 GSH-Px의 활성을 향상시킬 수 있을 뿐만 아니라 폐 및 혈장의 MDA 및 콜라겐 함량을 감소시키고 엘라스틴 함량을 증가시킬 수 있습니다. DPPH에 대한 우수한 소거 효과, 노화된 쥐의 저산소증 시간 연장, 혈청 내 SOD 활성 개선, 실험적으로 노화된 쥐의 폐의 생리학적 퇴행 지연 피부 노화 질환을 예방하고 치료하는 약물이 될 가능성이 있습니다. 동시에 Cistanche의 echinacoside는 DPPH 자유 라디칼을 제거하는 상당한 능력이 있으며 활성 산소 종을 제거하고 자유 라디칼로 인한 콜라겐 분해를 방지하는 능력이 있으며 티민 자유 라디칼 음이온 손상에 대한 우수한 복구 효과도 있습니다.
Cistanche Powder Bulk 클릭
【자세한 정보: david.deng@wecistanche.com / WhatApp:86 13632399501】
dFI는 주당 {{0}}.02의 특징적인 배율로 나이가 들면서 기하급수적으로 증가했습니다. 이 추정치는 SWR/J 균주에 대해 예상되는 Gompertz 사망률 가속률인 주당 0.03722보다 다소 작습니다(하지만 여전히 같은 차수입니다). 마우스에서 관찰된 dFI 배가율을 감안할 때, t ~ 3, 따라서 결정론적 표현형 변화는 무작위 효과를 3배로 지배합니다(식 (2) 및 그림 3 참조).
더 흥미롭게도 단면 데이터 세트에서 dFI는 그룹의 평균 수명에 해당하는 연령에 도달하는 제한 값에서 포화됩니다. 그러나 우리는 dFI 천장이 현재 실험실 프로토콜에 따라 과도한 이환율로 인해 안락사가 예정된 동물 코호트의 dFI 수준에 해당함을 관찰했으며, 이는 현대 실험실에서 동물이 있을 수 있는 것처럼 자연사에 가깝습니다.
MPD의 노화 궤적의 두 가지 기능은 식의 분석 솔루션과 호환됩니다. (1) 주문 매개변수의 동역학. 심판에서 18에서 우리는 생애 초기에 dFI가 기하급수적으로 증가한다고 설명했습니다(식(2) 참조). 대략 인구의 평균 수명에 해당하는 나이에 비선형 효과가 dFI의 역학을 대신하고 유기체 상태는 기하 급수적으로보다 훨씬 빠르게 젊은 상태에서 벗어납니다. 이러한 상황은 생존과 양립할 수 없으므로 데이터에서 관찰할 수 없습니다. 우리 모델과 실험에서 동물의 생애 중 어느 시점에서 최대 dFI 수준에 도달하면 사망이 빠르게 발생합니다.
확률 방정식. (1) 유기체의 생리학적 상태에 대한 "운동 법칙"을 설정하고 고원 수준에서 사망률의 포화 형태로 노년기 사망률 감속을 예측합니다. Mðt ≫ tÞ ≈ . 제한된 사망률과 다양한 종60에서 유지되는 사망률 배가 시간과 선충류42와 같은 동일한 종의 여러 조건에서 실험 사이의 예측된 관계. 여기에서 우리는 ref에서 매우 큰 마우스 집단에서 제한된 사망률 예측의 유효성을 보고합니다. 25.
대규모 실험에서 경험적 사망률 곡선과 이론적 예측 사이의 양호한 반정량적 일치는 노화 동물과 관련된 실험에서 데이터 분석을 위해 여기에서 제안된 이론적 프레임워크로서 임계 노화 모델의 독립적이고 민감한 테스트를 제공합니다. 보다 구체적으로, 노년기 사망률 감속 예측에 대한 실험적 확인은 기본 확률 방정식을 검증합니다. (1) dFI 형태의 솔루션과 모든 원인으로 인한 사망 사이의 연관성. 또한 모델의 사망률 감소는 순서 매개변수 역학의 확률적 특성에서 발생하며 유 전적으로 동일한 동물 집단에서도 예상되어야 합니다(참조 61의 논의 참조).
인간 코호트에서도 Gompertz 법칙의 편차가 발생하지만 사망률이 거의 10배 정도 증가하는 사망률에 해당하는 이론적 한계를 이미 훨씬 넘어서는 평균 수명을 초과하는 연령에서 발생합니다60. 이것은 인간의 노화 과정에서 유기체의 상태 역학 특성이 생쥐나 선충류의 경우와 질적으로 다르다는 것을 의미합니다. 심판에서 도 5에서, 우리는 인간의 생리적 지표의 변동이 상대적으로 길지만 유한한 자기 상관 시간(몇 주 범위)을 특징으로 하는 집단 변수에 의해 지배되고 연령 및 모든 원인 사망률과 관련됨을 관찰했습니다. 동적 안정성 손실의 징후를 보이는 개인의 수(매우 긴 자기 상관 시간으로 측정됨)는 Gompertz 사망률 법칙의 사망률 배가 비율과 일치하는 비율로 연령이 증가함에 따라 기하급수적으로 증가했습니다61.

생리학적 상태 변수의 자동 상관 속성과 노화의 특징 사이의 밀접한 관계는 딥 러닝으로 강화된 AR 분석이 인간 노화 및 만성 질환 진행의 징후를 발견하는 데 도움이 될 수 있음을 시사합니다. 이점은 대규모 종단 측정 세트를 포함하지만 종종 후속 사망률 및 이환율 정보가 부족한 연구에서 특히 클 수 있습니다. 생쥐의 노화 특징은 상관관계가 있고 주로 가역적이지만 인간의 노화와 관련된 생리적 변화의 대부분은 확률적이며 열역학적으로 비가역적일 수 있습니다62. 따라서 우리는 생체 의학 데이터 분석에 대한 동적 시스템 이론 원리의 체계적인 적용이 실행 가능한 노화 표현형을 식별하는 데 도움이 되고 따라서 지속적인 회춘 효과를 생성하는 노화 방지 치료제의 발견 및 개발을 촉진할 것으로 기대합니다.
행동 양식
데이터 세트
교육 데이터 세트는 MPD19에서 사용할 수 있는 9개의 데이터 소스에서 준비되었습니다. 포함된 출처 목록은 성별 및 연령 코호트별로 그룹화된 포함 및 누락된 기록에 대한 참조와 함께 보충 데이터 1에 제시되어 있습니다. 우리는 CBC 데이터만 제공하는 분석법을 사용했으며, 다른 바이오마커를 사용한 분석법은 샘플 수가 부족하여 고려하지 않았습니다. 우리 모델은 모든 소스에서 사용 가능한 CBC 기능의 최상의 중첩을 사용하여 훈련되었습니다. 최종 목록에는 12개의 CBC 기능이 포함되어 있습니다. MCHC), 평균 헤모글로빈 농도(MCH), 평균 미립자 부피(MCV), 혈소판 수(PLT), 적혈구 수(RBC) 및 백혈구 수(WBC). 모든 약어 목록은 보충 자료 2를 참조하십시오. 데이터 소스에 과립구 측정값이 없는 경우 다음 공식을 사용하여 검색되었습니다.
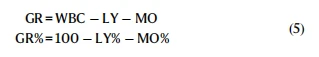
하나 이상의 매개변수가 누락된 모든 동물은 훈련에서 제외되었습니다. 제외된 레코드의 비율은<2% and should not have affected the results.
동물
모든 동물 실험은 Roswell Park Cancer Institute의 기관 동물 관리 및 사용 위원회 또는 Explora BioLabs, Inc 동물 사용 위원회의 승인을 받았습니다.
우리는 Charles River Laboratories(Wilmington, MA)에서 4–5-주된 NIH Swiss 수컷 및 암컷 마우스를 받았습니다. 그들은 Roswell Park Comprehensive Cancer Center(RPCCC) 동물 시설 내에서 노화되도록 허용되었습니다. 이 기간 동안 쥐는 우리당 1~3마리 수용되었고 표준 사료(Tekland Global 18% Protein Rodent Diet)를 임의로 먹였습니다. 혈액 샘플은 PFI3 생성의 일부로 다양한 연령대에서 수집되었습니다. 단일 턱밑 정맥 출혈에서 혈액 샘플을 EDTA 처리된 Vacutainer 튜브(총 부피 20ul)로 수집하고 Hemavet 950 분석기(Drew Scientific)를 사용하여 전혈 세포 수 및 포도당 측정에 사용했습니다. 또 다른 75ul의 혈액을 Li-Heparin 처리된 플라즈마 분리기 튜브에 수집했습니다. 혈장을 5000 xg에서 5분 동안 원심분리하여 정제하고 순환하는 전염증성 사이토카인 및 트리글리세리드의 농도를 측정하는 데 사용했습니다.
데이터 세트 MA0071은 수컷 및 암컷 NIH Swiss 마우스를 사용하여 단면 실험으로 구축되었습니다. 26세(n=20), 64세(n=18), 78세(n=17), 92세(n=14)의 수컷 마우스로부터 혈액을 채취했습니다. 그리고 132(n=6)주. 여성 연령 그룹은 30세(n=20), 56세(n=20), 68세(n=19), 82세(n=19), 95세로 대표되었습니다. (n=18), 108(n=20) 및 136(n=7)주. 데이터 세트 MA0072는 종단 실험에서 얻었습니다. 혈액 샘플은 66세(n=27), 81세(n=22), 94세(n=21), 109세(n=16), 130세에 수집되었습니다. (n=7) 주. 데이터 세트 MA0073에는 동물이 승인된 실험 종료점에 도달하고 인도적 안락사가 필요한 다양한 연령의 수컷 97마리와 암컷 127마리에서 채취한 혈액 샘플이 포함되어 있습니다. 모든 동물 절차는 승인된 기관 동물 관리 및 사용 위원회(IACUC) 프로토콜에 따라 수행되었습니다. 연령 관련 병리의 발달에 대해 마우스를 매일 모니터링하였다. 건강 문제가 보고될 때마다 연구원은 수의사 직원에게 연락하여 치료 또는 안락사에 대한 권장 사항을 따랐습니다. 프로토콜에 설명된 각 건강 상태에 대한 종점에 도달했을 때 조건이 개선되거나 안락사될 때까지 마우스를 치료했습니다. 안락사는 CO2 질식에 이어 자궁 경부 탈구에 의해 수행되었습니다. 이 데이터 세트의 총 동물 수는 보충 데이터 3을 참조하십시오.
p16/INK4a-LUC 암컷 마우스(p16-Luc)는 44주에서 106주 사이에 노스캐롤라이나 대학의 N. Sharpless 실험실(Chapel Hill, NC)에서 입수했습니다. 모든 동물은 RPCCC의 실험실 동물 공유 자원에서 12:12 빛:어두운 조건(12시간 빛에 이어 12시간 어둠)에 수용되었습니다. 모든 동물 실험은 Roswell Park Cancer Institute의 IACUC의 승인을 받았습니다. IVIS Spectrum 이미징 시스템(Caliper LifeSciences, Inc, Waltham, MA)을 사용하여 생물발광 이미징을 수행했습니다. p16/Ink4a-Luc plus /- 마우스에 D-Luciferin(150 mg/kg, Gold Biotechnology)을 복강내 주사하고, 3분 후 이소플루란으로 마취하고 20-초 통합 시간 및 중간 비닝을 사용하여 이미지화했습니다. 이미지는 Living Image 소프트웨어(Perkin Elmer, Waltham, MA)를 사용하여 각 마우스의 양쪽에서 기록된 광자 플럭스의 합으로 처리되고 정량화되었습니다.

라파마이신 처리 실험을 위해 60-주령 C57BL/6J 수컷 마우스를 Jackson Laboratories(USA)에서 구입했습니다. 60 60-주령 C57BL/6 수컷 마우스 코호트는 구분할 수 없는 dFI 분포를 생성하기 위해 층화 무작위화 기법을 사용하여 치료군(n=12)과 대조군(n=48) 그룹으로 나뉘었습니다. 실험 전 값. 혈액 샘플(총 부피 120μL)을 란셋을 사용하여 턱밑 정맥 또는 안면 정맥을 통해 EDTA 튜브에 수집했습니다. 모든 동물 절차는 Explora BioLabs, Inc 동물 사용 위원회(IACUC SP17-004-035B)의 승인을 받았으며 실험실 동물의 관리, 복지 및 치료에 관한 Explora BioLabs, Inc 정책에 의해 승인되었습니다. Rapamycin은 LC Laboratories(MA, USA)에서 구입했습니다. 라파마이신은 8주 동안 경구 위관 영양법을 통해 매일 12mg/kg으로 투여되었습니다. 대조군은 비히클(5% Tween-80, 5% PEG-400, 3% DMSO)로 처리했습니다.
PCA를 사용한 차원 축소
우리는 Python과 Scikit-learn 패키지63의 도움으로 PCA를 수행했습니다. 먼저 전체 교육 데이터 세트에 PCA 변환을 적용했습니다. 그러나 주요 구성 요소는 마우스 계통의 차이에 의해 지배되었습니다. 이 균주에 대한 모든 동물의 CBC 특징 값에서 선택한 균주에 대해 가능한 가장 이른 연령에 대해 계산된 CBC 특징의 평균값을 빼서 균주 차이를 제거했습니다.
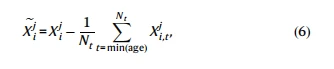
여기서 지수 i와 j는 각각 CBC 특징과 균주를 열거하고 동물의 나이입니다. 단순화를 위해 Peters4 데이터 세트64에 제시되지 않은 마우스 변종을 필터링했습니다.
전체 데이터 세트를 나타내는 데이터의 대부분의 분산은 동물의 성장 및 성숙과 관련이 있습니다. 첫 번째 PC 점수는 25주 후 가장 두드러지게 동물의 나이에 따라 증가했습니다(보충 그림 1). 반대로 두 번째와 세 번째 PC점수는 25주라는 같은 나이에 0이 아닌 수단을 획득한다. 이것은 쥐의 노화와 초기 발달이 다른 표현형임을 시사합니다. 그 후, 우리는 25주 이상 된 동물의 데이터를 사용하여 모든 계산을 수행했습니다.
사망률 데이터의 통계 분석
MPD 데이터세트 Peters4와 연결된 동물의 사망 기록은 MPD에서 Yuan223이라는 별도의 데이터세트로도 제공되었습니다. 이 데이터 세트에는 서로 겹치는 부분이 많은 다양한 동물 코호트가 포함되어 있습니다. 우리는 Peters4 데이터 세트에서 487마리의 동물에 대한 사망 기록을 찾았지만 393마리의 동물은 누락되었습니다. 실종 이유는 알려지지 않았다. 검열 기록을 생성하기 위해 최소 2개의 순차적 CBC 측정이 있는 모든 동물을 포함했습니다. 우리는 단일 CBC 측정을 제공받은 동물이 채혈 후 희생되었을 것이라고 가정했습니다. 따라서 동물이 한 번 이상의 CBC 측정을 하는 경우 마지막 측정에서 손실된 것으로 간주합니다. 전체적으로 우리는 이 조건을 만족하는 79마리의 동물을 찾았습니다. 사망 날짜가 알려지지 않은 나머지 314마리는 분석에서 제외되었습니다.
Spearman의 순위 상관 테스트는 마우스의 두 코호트에 대해 개별적으로 수행되었습니다. 첫 번째 집단에는 검열되지 않은 사망 기록이 있는 Peters4 데이터 세트의 모든 동물이 포함되었습니다. 두 번째 코호트는 Yuan1 24이라는 MPD 데이터세트에서 가져온 BW 및 IGF1 혈청 수준의 측정값과 함께 Peters4 데이터세트의 동물을 포함했습니다.
Python 및 Lifelines 패키지 65를 사용하여 Cox PH 회귀 분석을 수행했습니다. 먼저 나이, 성별 및 CBC 기능을 공변량으로 사용하고 Peters4의 모든 동물 데이터를 활용하여 감독 다변량 Cox-PH 모델을 생성했습니다. 검열 및 검열되지 않은 사망 사건을 모두 포함하는 데이터 세트. 모델의 출력인 대수 위험비(HRCBC)는 CBC 기능과 Cox-PH 모델의 각 계수를 포함하는 벡터의 내적입니다. 다음으로 Spearman의 순위 상관 테스트의 대안으로 같은 연령과 성별의 동물 코호트에서 dFI 점수와 함께 일 변량 Cox-PH 모델에서 HRCBC 기능의 연관성을 테스트했습니다 (보충 데이터 6 참조). 두 테스트 모두 서로 잘 일치했습니다.
AE/AR 신경망 훈련
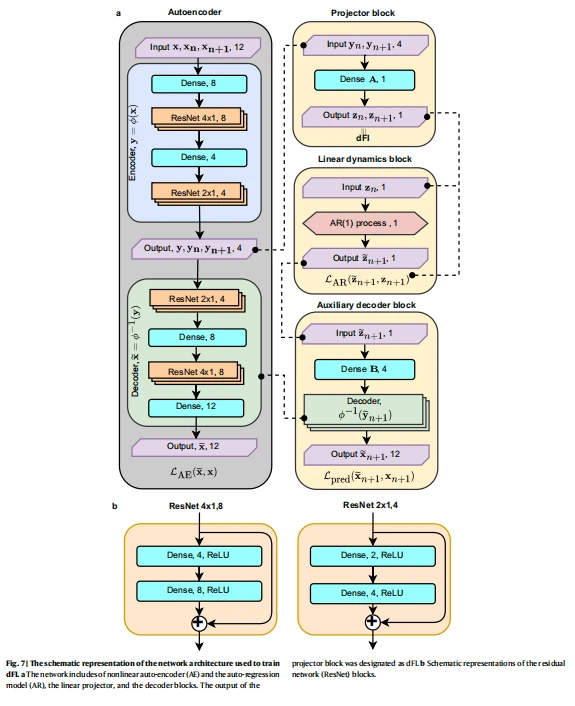
모달 분석(AE-AR 모델)을 위해 심층 AE와 간단한 AR 모델의 조합을 사용했습니다. 병목 지점에서 AE의 인코더 암은 입력의 압축된 4-차원 표현 y, 사용 가능한 CBC 측정에서 구축된 12-차원 생리학적 상태 벡터 x를 생성했습니다. 디코더 팔은 원래 12-차원 상태 ~x를 병목 현상 피처에서 재구성했습니다.
AE와 동시에, 우리는 선형화(g=0) 방정식의 버전. (1),
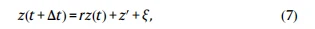
여기서 z는 AE 병목 현상의 최상의 선형 조합, r=expð ΔtÞ ≈ 1, z0는 각각 자동 회귀 계수와 상수 이동의 최적 값입니다. 여기서 ξ는 적합 오차(시스템의 잡음과 측정 오차의 조합)입니다.
우리는 ref에서 제안된 신경망 아키텍처를 채택했습니다. 45. 우리의 구현은 횡단면 데이터에 유리한 불균형으로 횡단면 및 종단 측정을 동시에 처리했으며, 이는 실제 임상 데이터에 일반적입니다. 입력으로 네트워크에는 CBC 매개변수로 표현되는 3개의 12-차원 벡터가 있습니다. 하나는 단면 데이터세트(x)용이고 다른 두 개는 현재(xn)와 미래(xn + 1)에 해당하는 세로 데이터세트용입니다. ) 샘플의 상태(그림 7a).
단면 샘플은 AE의 입력으로 사용되었습니다. 압축된 표현(yn, yn + 1)의 세로 샘플도 훈련 자동 회귀 부분에 참여했습니다. 신경망에 AE를 포함시키는 주요 이점은 효과적인 비선형 차원 감소 능력입니다. 잠재 차원의 축소된 크기는 정규화로 작동하며 더 큰 단면 데이터 세트에서 더 많은 샘플을 사용하여 작은 종단 데이터 세트에 과적합하지 않고 훈련하는 데 도움이 됩니다.

AE 블록은 입력(x)을 4-차원 벡터 y= φ(x)로 인코딩한 다음 원래 신호 e x=φ 1 ðyÞ로 다시 재구성합니다. AE는 완전히 연결된 밀집 계층과 잔여 네트워크 블록(ResNet)67의 스택으로 구현되었습니다. 조밀한 계층에는 훈련 가능한 가중치 행렬 W, 편향 벡터 b 및 기본적으로 선형 활성화 함수가 있습니다. 그림 7b에 표시된 ResNet 블록은 Leaky Recified Linear Unit(Leaky ReLU)의 활성화 기능을 가진 두 개의 조밀한 레이어 스택입니다. 입력과 출력은 요소별 덧셈을 적용하여 연결됩니다. ResNet 블록은 원래 입력에 비선형 정류 변환을 추가하여 비선형 변환 학습을 돕습니다. AE는 단면 및 종단 데이터 세트에서 동시에 훈련됩니다.
프로젝터 블록은 4-차원 벡터를 입력으로 사용하여 dFI라고 하는 스칼라 z=A ⋅ y로 변환합니다. 훈련하는 동안 한 쌍의 벡터가 입력에 공급됩니다. 하나는 시스템의 현재 상태에 대한 것이고 다른 하나는 미래 상태에 대한 yn 더하기 1입니다. 선형 동역학 블록은 자동 회귀 문제(7)를 해결하고 미래 상태 Zn + 1=ξ(rZn)=rzn + b를 예측합니다. 보조 디코더 블록은 AE 블록의 디코더 ϕ−1을 활용하여 선형 역학 블록 ezn plus 1의 출력에서 원래 12- 차원 CBC 벡터를 재구성합니다. e xn plus 1=ϕ 1 ðB ezn plus 1Þ.
Eq.의 솔루션에서 프로젝터 및 선형 역학 블록에서 A 및 B의 행렬을 왼쪽 및 오른쪽 고유 벡터로 강제하려면. (7) 다음 제약 조건을 추가했습니다.
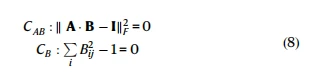
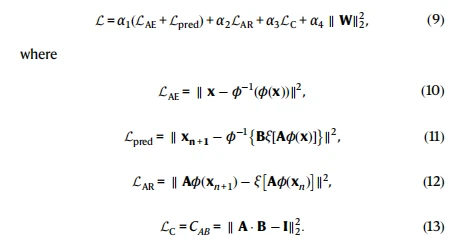
여기서 LAE는 AE 재구성 손실, Lpred는 미래 상태 재구성 손실, LAR은 자동 회귀 손실, LC는 Eq. (8) 및 용어 k Wk2 2는 과적합 문제를 피하기 위한 NN 가중치의 L2 정규화입니다.
가중치 1, 3 및 4는 각각 1, 100 및 0.01의 값에 할당되었습니다. 가중치 2는 훈련하는 동안 0에서 1로 점진적으로 증가했습니다. 이 모델은 0.001의 학습률과 Adam 옵티마이저 68로 600 epoch 동안 훈련되었습니다. 마지막 200 epoch는 0.0001의 학습률로 훈련되었습니다. AE/AR NN 아키텍처는 Python 및 TensorFlow 프레임워크69로 구현되었습니다.
순서 매개변수의 비선형 동역학은 사망률을 설명하는 데 중요합니다. 동시에 동물의 수명 t를 사망률 배증 시간 단위로 표현하는 무차원 매개변수 t ≫ {{1} }. 마우스에서 관찰된 dFI 배가율이 주어지면 t ~ 3이므로 선형 AR 모델은 합리적인 근사치일 뿐입니다. dFI와의 모드 결합 효과를 포함하여 AR 모델의 순위를 높여 향후 더 나은 dFI 변형을 얻어야 합니다.
모델 평가
이 모델은 AE-AR 모델의 교육에서 완전히 제외된 테스트 데이터 세트(보충 데이터 3 참조)에서 검증되었습니다. 테스트 데이터 세트는 나이와 성별이 다른 NIH 스위스 마우스 코호트(데이터 세트 MA0071), 15개월 동안 관찰된 NIH 스위스 수컷 마우스 코호트(데이터 세트 MA0072), 순진한 수컷 및 승인된 실험 종점에 도달한 후 인도적으로 안락사시킨 암컷 NIH Swiss 마우스(데이터 세트 MA0073).

트레이닝 및 테스트 세트(보충 데이터 4 및 보충 데이터 5)의 각 CBC 기능에 대한 평균 제곱근 오차(RMSE) 및 결정 계수 R2를 계산하여 AE의 재구성 오차를 추정했습니다. 테스트 세트의 평균 RMSE는 R2=0.55에서 229.6이었습니다. 트레이닝 세트에서 RMSE는 106.4 및 R2=0.77이었습니다. 최고의 재구성은 헤마토크리트(R2=0.95), 적혈구(R2=0.92) 및 림프구(R2=0.87)에 대해 달성되었습니다. 최악의 결과는 테스트 세트의 평균 미립자 헤모글로빈 농도(R2=− 0.82) 및 혈소판(R2=− 0.14)에 대한 것이었습니다. 정의에 따르면 −1 < R2 < 1(예: 70 참조)에 따라 훈련 또는 검증 세트에서 양이 음수일 수 있으며 이는 특히 적합하지 않은 경우를 나타냅니다.
dFI에 대한 약물의 영향 결정
우리는 개별 동물의 dFI 궤적에 대한 라파마이신의 영향에 대한 조사를 수행했습니다. 기술적으로, 우리는 후속 시점 사이의 치료 양에 따라 시간 간격으로 개인의 삶의 역사를 따라 dFI 수준의 증가를 비교했습니다. 이러한 분석은 dFI로 근사화되는 차수 매개변수에 대한 운동 방정식(7)에 명시적으로 의존합니다. 약물의 효과는 치료군과 대조군 모두에서 약물을 투여했을 때 측정치 사이의 dFI 증분을 감소시키고 약물을 투여하지 않을 때마다 효과가 없는(무력) "힘" 항으로 나타납니다.
따라서 노화 과정에 대한 약물의 영향을 결정하는 것은 식의 자기회귀 문제에서 "힘" 항을 결정하는 것과 동일합니다. (4). 동물 간 dFI 수준의 자연적 변동이 종종 높기 때문에 종단 연구는 표준 그룹 비교보다 더 많은 통계적 힘을 가져야 합니다. dFI는 AR 모델로 훈련되었습니다(7). 따라서 노화 방지 개입 효과의 종단 분석에서 신호 대 잡음비를 최대화하는 데 매우 적합합니다. 필요한 경우 자동회귀 모델은 동물의 실험 배치 또는 성별과 같은 교란 요인을 얼마든지 수용할 수 있습니다. 기술적으로 Eq의 오른쪽(4)에 각 공변량을 추가하여 목표를 달성할 수 있습니다.
노년기 사망률 및 생존 분석
마우스 사망률에 대한 데이터는 심판에서 가져 왔습니다. 25. 분석을 위해 대조군만 선택했습니다. 연구에서 제외된 마우스는 현재 생존 분석에서도 제외되었습니다. 마우스는 3개의 연구 센터 및 코호트 모두에서 함께 풀링되었고 성별에 따라 두 그룹으로 분리되었습니다. 전체적으로 3249마리의 수컷 쥐와 2978마리의 암컷 쥐가 있었습니다.
사망률 분석은 lifelines python 패키지 65의 Nelson-Aalen fitter의 도움으로 수행됩니다. 생존 및 기타 생존 분석의 Gompertz 적합을 위해 GitHub에 게시된 사용자 지정 코드를 사용했습니다.
보고 요약
연구 설계에 대한 추가 정보는 이 문서에 링크된 Nature Research Reporting Summary에서 확인할 수 있습니다.
데이터 가용성
이 연구 결과를 뒷받침하는 데이터는 MPD(RRID: SCR_003212)에서 확인할 수 있습니다. 모든 결과를 재현하기 위한 원시 데이터 파일 및 스크립트는 GitHub 웹 사이트에서 사용할 수 있습니다. 추가 데이터는 합당한 요청에 따라 해당 작성자에게 제공됩니다. 원본 데이터는 이 백서에서 제공됩니다.
코드 가용성
코드는 GitHub 웹 사이트에서 사용할 수 있습니다.
참조
1. Horvath, S. 인간 조직 및 세포 유형의 DNA 메틸화 연령. 게놈 바이오. 14, R115(2013).
2. Levine, ME 등. 수명과 건강에 대한 노화의 후생유전학적 바이오마커. 노화 10, 573(2018).
3. Antoch, MP 외. 생리학적 노쇠 지수(Physiological frailty index, pdf): 생쥐의 개별 생물학적 연령에 대한 정량적 수명 추정치. 노화 9, 615 (2017).
4. 푸틴, E. 외. 인간 노화의 심층 바이오마커: 바이오마커 개발에 대한 심층 신경망의 적용. 노화 8, 1021(2016).
5. Pyrkov, TV 외. 혈액 마커의 종단 분석은 회복력의 점진적인 손실을 보여주고 인간 수명의 궁극적인 한계를 예측합니다. Nat. 공동. 12, 2765(2019).
6. Schultz, MB 외. 마우스 노쇠에 대한 기계 학습 분석을 기반으로 한 연령 및 기대 수명 시계. Nat. 공동. 11, 1(2020).
7. Cohen, AA 등. 새로운 통계적 접근 방식은 노화 동안 다중 시스템의 생리적 조절 장애에 대한 증거를 보여줍니다. 메커니즘 노화 Dev. 134, 110(2013).
8. Mitnitski, AB, Mogilner, AJ & Rockwood, K. 노화의 대용 척도로 적자의 축적. ScientificWorldJournal 1, 323–336 (2001).
9. Mitnitski, A. et al. 연령 관련 허약함과 노화의 생물학적 지표와의 연관성. 비엠씨메드 13, 161(2015).
10. Blodgett, JM, Theou, O., Mitnitski, A., Howlett, SE & Rockwood, K. 연령과 성별에 따른 실험실 노쇠 지수와 불리한 건강 결과 사이의 연관성. 에이징메드 2, 11(2019).
11. Justice, J. et al. 특발성 폐 섬유증의 Senolytics: 최초의 공개 라벨 파일럿 연구 결과. ebiomedicine 40, 554–563 (2019).
12. Fahy, GM 외. 인간의 후성적 노화 및 면역노화 경향의 역전. 노화 세포 18, e13028 (2019).
13. 헤르만 하켄. 물리학 아스트론. 온라인 도서관
14. Scheffer, M. et al. 중요한 전환에 대한 조기 경고 신호. Nature 461, 53(2009).
15. Scheffer, M. et al. 인간과 다른 동물의 회복력 정량화. 절차 Natl Acad. 과학. 미국 115, 11883(2018).
16. Krotov, D., Dubuis, JO, Gregor, T. & Bialek, W. Morphogenesis at criticality. 절차 Natl Acad. 과학. 111, 3683(2014).
17. Kogan, V., Molodtsov, I., Menshikov, LI, Reis, RJS & Fedichev, P. 모델 유전자 네트워크의 안정성 분석은 노화 스트레스 저항성과 무시할 수 있는 노화를 연결합니다. 과학. 5, 13589 (2015).
18. Podolskiy, D. 유전자 네트워크의 중요한 역학은 노화 및 Gompertz 법칙의 메커니즘입니다.
19. Bogue, MA 등. 뮤린 수명 및 건강 수명의 유전자 분석을 위한 마우스 현상 데이터베이스의 데이터 리소스에 액세스합니다. J. 노인학. Ser. A71, 170(2016).
20. Fiedler, BE Dynamical Systems 핸드북, Vol. 2 (걸프 전문 출판, 2002).
21. Seydel, R. Practical Bifurcation and Stability Analysis, Vol. 1, p. 477(스프링거 과학 및 비즈니스 미디어, 2009).
22. Hughes, BG & Hekimi, S. 수명이 긴 마우스와 Caenorhabditis elegans 돌연변이의 장수의 다른 메커니즘은 사망률의 통계적 분석에 의해 밝혀졌습니다. 유전학 204, 905 (2016).
23. Yuan, R. et al. 근친 교배 마우스 계통 사이에서 순환하는 igf1을 통한 여성의 성 성숙 및 수명의 연령에 대한 유전적 공동 조절. 절차 Natl Acad. 과학. 109, 8224(2012).
24. Yuan, R. et al. 근친 교배 마우스의 노화: 중앙 수명 및 순환 igf1 수준에 대한 연구 설계 및 중간 보고서. 노화 세포 8, 277 (2009).
25. Harrison, DE 등. 삶의 후반기에 공급된 라파마이신은 유 전적으로 이질적인 마우스에서 수명을 연장합니다. 자연 460, 392(2009).
26. O'Connell, KE 외. 실용 쥐 혈액병리학: 연구에 대한 비교 검토 및 시사점. 비교 중간 65, 96(2015).
27. Patel, KV 외. 노인의 적혈구 분포 폭과 사망률: 메타 분석. J. Gerontol. 65A, 258(2010).
28. Baggiolini, M. Chemokines 및 백혈구 트래픽.
29. Harris, TB 외. 증가된 인터루킨-6 및 C-반응성 단백질 수치와 노인 사망률의 연관성. 오전. J. Med. 106, 506(1999).
30. Mahmoudi, S., Xu, L. & Brunet, A. 떠오르는 회춘 전략으로 시간을 되돌립니다. Nat. 세포비올. 21, 32(2019).
31. Kuilman, T., Michaloglou, C., Mooi, WJ & Peeper, DS 노화의 본질. 진 데브. 24, 2463(2010).
32. van Deursen, JM 노화에서 노화 세포의 역할. 자연 509, 439 (2014).
33. Hall, BM et al. 쥐의 노화는 노화 세포에 의해 젊은 쥐에서 유도될 수 있는 p16(Ink4a)- 및 갈락토시다아제 양성 대식세포 축적과 관련이 있습니다. 노화 8, 1294 (2016).
34. Kim, WY & Sharpless, NE 암과 노화에서 INK4/ARF의 조절. 셀 127, 265(2006).
35. Burd, CE et al. p16 INK4a-루시페라제 모델을 사용하여 생체 내 종양 형성 및 노화 모니터링. 셀 152, 340(2013).
36. Wilkinson, JE et al. 라파마이신은 쥐의 노화를 늦춥니다. 노화 세포 11, 675(2012).
37. Bitto, A. et al. 일시적인 라파마이신 치료는 중년 쥐의 수명과 건강 기간을 증가시킬 수 있습니다. elife 5, e16351 (2016).
38. 밀러, RA 외. 마우스에서 라파마이신 매개 수명 증가는 용량 및 성별 의존적이며 식이 제한과 대사적으로 구별됩니다. 노화 세포 13, 468(2014).
39. Balleza, E. et al. 유전자 조절 네트워크의 중요한 역학: 네 왕국의 예. PLoS One 3, e2456(2008).
40. Nakamura, E., Miyao, K. & Ozeki, T. 주성분 분석에 의한 생물학적 연령 평가. 기계 노화 데브. 46, 1(1988).
41. Park, J., Cho, B., Kwon, H. & Lee, C. 한국 남성의 노화에 대한 주성분 분석 및 임상 바이오마커를 이용한 생물학적 연령 평가식 개발. 아치. Gerontol. 노인병 49, 7 (2009).
42. Tarkhov, AE et al. 나이의 보편적인 transcriptomic 서명은 Caenorhabditis elegans 노화 궤적의 시간적 스케일링을 보여줍니다. 과학. 9, 1 (2019).
43. Johnstone, IM & Lu, AY 고차원의 주성분 분석을 위한 일관성 및 희소성. J.Am. 통계 협회 104, 682(2009).
44. Mardt, A., Pasquali, L., Wu, H. & Noé, F. VAMPnets(분자 동역학 심층 학습용). Nat. 공동. 9, 5(2018).
45. Lusch, B., Kutz, JN & Brunton, SL 비선형 역학의 범용 선형 임베딩을 위한 딥 러닝. Nat. 공동. 9, 4950 (2018).
46. Wu, T. & Tegmark, M. 감독되지 않은 학습을 위한 인공 지능 물리학자를 향하여. 물리학 E 100, 033311(2019).
47. Liu, Z. & Tegmark, M. Ai poincar\'e: 궤적에서 기계 학습 보존법. 물리학 레트 목사 126, 180604(2020).
48. Hofmann, B. Youngblood는 오래된 신체를 젊어지게 합니다. 카거 1, 45 (2018).
49. Beerman, I. et al. DNA 메틸화 환경의 증식 의존적 변경은 조혈 줄기 세포 노화의 근간이 됩니다. 세포 줄기 세포 12, 413(2013).
50. Franceschi, C. 외. Inflamm-aging: 면역 노화에 대한 진화론적 관점. 앤. 뉴욕 아카드. 과학. 908, 244(2006).
51. Pawelec, G. 면역노화 및 암. Biogerontology 18, 717 (2017).
52. Crooke, SN, Ovsyannikova, IG, 폴란드, GA & Kennedy, RB 면역노화 및 인간 백신 면역 반응. 면역. 노화 16, 25 (2019).
53. Pang, WW et al. 인간 골수 조혈 줄기 세포는 나이가 들면서 빈도가 증가하고 골수 편향됩니다. 절차 Natl Acad. 과학. USA 108, 20012(2011).
54. López-Otín, C., Blasco, MA, Partridge, L., Serrano, M. & Kroemer, G. 노화의 특징. 셀 153, 1194(2013).
55. Partridge, L., Fuentealba, M. & Kennedy, BK 약물 발견을 통해 노화를 늦추는 탐구. Nat. 마약 Discov 목사. 19, 513–532(2020).
56. Wang, Y. 외. 일상적인 실험실 데이터를 기반으로 한 노쇠 지수를 통해 원발성 폐암을 가진 고령 환자의 화학 요법 부작용 및 사망률 예측. 클린. 인터럽트 노화 14, 1187 (2019).
57. Kane, AE, Keller, KM, Heinze-Milne, S., Grandy, SA & Howlett, SE 임상 및 실험실 측정에 기반한 쥐의 노쇠 지수: 노쇠와 전염증성 사이토카인 사이의 연결은 성별에 따라 다릅니다. . J. Gerontol. Ser. A74, 275(2019).
58. Sacher, G. & Trucco, E. 사망률의 확률적 이론. 앤. 뉴욕 아카드. 과학. 96, 985(1962).
59. Yashin, AI, Manton, KG & Vaupel, JW 이질적인 인구의 사망률 및 노화: 관찰 및 비관찰 변수가 있는 확률적 프로세스 모델. 이론. 대중. 비올. 27, 154(1985).
60. Vaupel, JW 등. 수명의 생물 인구학적 궤적. 사이언스 280, 855(1998).
61. Pyrkov, TV, Sokolov, IS & Fedichev, PO 웨어러블 센서 데이터의 깊이 있는 세로 표현형은 수명, 스트레스 및 탄력성의 독립적인 마커를 나타냅니다. 에이징 13, 7900(2021).
62. Tarkhov, AE, Denisov, KA, & Fedichev, PO 노화 시계, 엔트로피, 연령 역전의 한계. bioRxiv(McGraw-Hill, 2022).
63. Pedregosa, F. et al. Scikit-learn: {P}ython에서 기계 학습. J. 마하. 배우다. 해상도 12, 2825(2011).
64. Peterset, LL al. 마우스의 응고 및 혈액학적 표현형에 대한 대규모, 고처리량 스크리닝. 피시올. Genomics.11, 185–193 (2002).
65. Davidson-Pilon, C. 라이프라인.
66. Hinton, GE & Salakhutdinov, RR 신경망으로 데이터의 차원 축소. 사이언스 313, 504(2006).
67. He, K., Zhang, X., Ren, S. & Sun, J. 이미지 인식을 위한 심층 잔차 학습. 2016 컴퓨터 비전 및 패턴 인식(CVPR)에 관한 IEEE 컨퍼런스, 2016, pp. 770–778(IEEE Computer Society, 2016).
68. Kingma, DP & Ba, JL Adam: 확률적 최적화 방법.
69. Abadi, M. TensorFlow: 이기종 시스템에서 대규모 기계 학습.
70. Steel, RGD & Torrie, JH 통계의 원칙 및 절차: 생물학에 대한 특별 참조. (맥그로 힐, 1960). 71. Avchaciov, K. AI 종적 데이터에서 노화 원리의 자율 학습.
감사의 말
p16-Luc 기자 마우스를 아낌없이 제공해 주신 Norman Sharpless에게 감사드립니다. 이 작업은 Roswell Park 종합 암 센터의 실험실 동물 및 번역 이미징 공유 리소스(MPA 및 AVG)의 사용과 Genome Protection, Inc.(MPA 및 평균). 저자는 유용한 논평과 토론에 대해 Gero의 M. Kholin에게 감사를 표합니다.
저자 기여
MPA와 EIA는 실험을 설계 및 수행하고 데이터를 분석 및 해석하고 원고를 검토했습니다. KA와 AET는 계산 및 데이터 분석을 수행하고 원고를 작성했습니다. OG, LIM, AVG 및 POF는 결과에 대해 논의하고 원고를 작성 및 검토했습니다.
경쟁 관심
POF는 Gero PTE의 주주입니다. LTD. AVG는 Gero PTE의 구성원입니다. LTD. 자문위원회. KA, AET, LIM, OB, POF는 Gero PTE의 직원입니다. LTD. AVG는 Genome Protection의 공동 설립자이자 주주입니다. EIA는 Genome Protection의 직원입니다. MPA는 경쟁 이해관계가 없습니다. 이 연구는 Gero PTE가 자금을 지원했습니다. LTD.
추가 정보
추가 정보온라인 버전에는 사용 가능한 보충 자료가 포함되어 있습니다.
서신 및 요청자료는 Peter O. Fedichev에게 전달해야 합니다.
피어 리뷰 정보Nature Communications는 Konstantin Arbeev, Arnold Mitnitski 및 이 작업의 동료 검토에 기여한 익명의 검토자에게 감사드립니다.
게시자 주Springer Nature는 출판된 지도 및 기관 제휴에 대한 관할권 주장에 대해 중립을 유지합니다.
오픈 액세스이 기사는 크리에이티브 커먼즈 저작자 표시 4에 따라 라이선스가 부여됩니다.0 원본 작성자에게 적절한 출처를 밝히는 한 모든 매체 또는 형식의 사용, 공유, 개작, 배포 및 복제를 허용하는 국제 라이선스입니다. ) 및 소스, 크리에이티브 커먼즈 라이센스에 대한 링크를 제공하고 변경 사항이 있는지 표시하십시오. 이 기사의 이미지 또는 기타 제3자 자료는 자료에 대한 크레디트 라인에 달리 명시되지 않는 한 기사의 크리에이티브 커먼즈 라이센스에 포함됩니다. 기사의 크리에이티브 커먼즈 라이선스에 자료가 포함되어 있지 않고 귀하의 의도된 사용이 법적 규정에 의해 허용되지 않거나 허용된 사용을 초과하는 경우 저작권 소유자로부터 직접 허가를 받아야 합니다.
자세한 정보: david.deng@wecistanche.com / WhatApp:86 13632399501