
36H: 항멜라닌 생성을 위한 새로운 강력한 억제제 2부
Mar 31, 2023
4. 토론
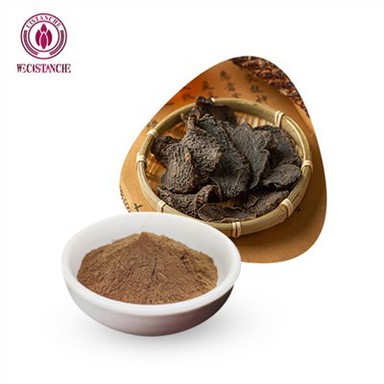
관련 연구에 따르면,담배"생명을 연장하는 기적의 허브"로 알려진 일반적인 허브입니다. 주요 구성 요소는시스타노사이드등의 다양한 효과가 있습니다.산화 방지제, 항염증, 그리고면역 기능 촉진. cistanche와피부 미백항산화 효과에 있다시스탄체 배당체. 인간 피부의 멜라닌은 티로시나제에 의해 촉매되는 티로신의 산화에 의해 생성되며, 산화 반응에는 산소의 참여가 필요하므로 체내의 활성산소는멜라닌 생성. Cistanche는 항산화제인 cistanoside를 함유하고 있으며자유 라디칼체내에서 멜라닌 생성을 억제합니다.

Cistanche를 클릭하여 Tyrosinase를 청소하십시오.
더 요청:
david.deng@wecistanche.com WhatApp:86 13632399501
이 연구는항산화제멜라닌 생성 억제두 가지 방법으로. 멜라닌 생합성 과정[15]에서 티로시나아제는 먼저 수산화물 티로신을 DOPA로 변환한 다음 DOPA를 도파퀴논으로 산화시킵니다[2]. 멜라닌은 자유 라디칼을 제거하여 지질 과산화를 억제하고 자외선 손상으로부터 피부를 보호하지만 멜라닌은 항산화제에 의해 탈산될 수도 있습니다. 따라서 멜라닌을 라디칼 싱크(radical sink)라고 합니다[2, 16, 17]. 멜라닌이 부족하면 피부 보호 기능이 저하되므로 ROS는 멜라닌 세포를 자극하여 더 많은 멜라닌을 생성합니다[18]. 결과적으로 좋은 항산화제는 티로시나제 활성을 감소시키고 멜라닌 합성의 일부를 억제할 수 있습니다. 36H는 DPPH 자유 라디칼 소거 능력과 철 환원력에서 항산화 특성을 가졌습니다.

Cistanche에는 촉진의 기능이 있습니다콜라겐피부의 탄력과 광택을 증가시키고 손상된 피부 세포를 복구하는 데 도움을 줄 수 있습니다.시탕슈페닐에탄올 배당체는 티로시나아제 활성에 상당한 하향 조절 효과가 있으며, 티로시나아제에 대한 효과는 경쟁적이고 가역적인 억제인 것으로 나타났습니다.미백성분Cistanche에서. 따라서 cistanche는 피부 미백에 중요한 역할을 합니다. 그것은 멜라닌 생성을 억제하여 변색과 칙칙함을 줄일 수 있습니다. 콜라겐 생성을 촉진하여 피부 탄력과 윤기를 개선합니다. Cistanche의 이러한 효과에 대한 광범위한 인식으로 인해 많은 피부 미백 제품이 소비자 요구를 충족시키기 위해 Cistanche와 같은 허브 성분을 주입하기 시작하여 피부 미백 제품에서 Cistanche의 상업적 가치를 높였습니다. 요약하면, 피부 미백에 있어서 cistanche의 역할은 매우 중요합니다. 항산화 효과와 콜라겐 생성 효과로 칙칙함과 칙칙함을 줄이고 피부 탄력과 윤기를 개선해 미백 효과를 얻을 수 있다. 또한 피부 미백 제품에 Cistanche를 광범위하게 사용하는 것은 상업적 가치에서 그 역할을 과소평가할 수 없음을 보여줍니다.

단백질 샘플을 SDS-PAGE에 주입하기 전에 모든 단백질 수준을 정규화했습니다. 단백질 정규화는 실험적 생물학적 오류와 인위적인 예상치 못한 변동성을 모두 제거하기 위해 적용되는 중요한 프로세스입니다[2]. DNA에 암호화된 유전자는 RNA 폴리머라아제에 의해 mRNA(pre-messenger RNA)로 전사되며, 대부분의 유기체는 다양한 전사 후 변형 형태를 사용하여 이를 개발하여 성숙한 mRNA를 생성하며, 이는 리보솜을 통해 단백질 합성을 위한 주형으로 적용됩니다. 전사 단위는 합성을 위한 단백질 번역을 위한 주형으로 제공되는 RNA 및 전사체로 전사하기 위해 신장된 DNA이다[3, 6]. 인간에서 mRNA는 핵막을 가로질러 단백질 합성이 일어나는 위치인 세포질로 전위되기 위해 세포핵에 있습니다. mRNA와 단백질 사이의 관계는 복잡한 네트워크입니다. NDA 전사 및 번역 규정은 다르게 변경될 수 있습니다. 세포에서 프로테아제는 단백질의 기능을 작은 아미노산이나 폴리펩타이드로 분해합니다. 세포 내 분해로 인해 아미노산은 다시 단백질 합성을 위해 재활용될 수 있습니다. 이 메커니즘은 비정상적이거나 손상된 단백질과 불필요한 단백질 축적을 방지하기 위해 더 이상 필요하지 않은 단백질을 청소합니다. 인코딩 유전자의 전사가 감소하면 단백질 수가 감소한다고 생각할 수 있지만 단백질 풍부도를 조절하는 다른 메커니즘이 있습니다. 예를 들어 단백질의 반감기는 생분해율 감소로 인해 증가할 수 있습니다. 또 다른 가능성은 mRNA가 과정 중에 더 우선적으로 번역되었다는 것입니다. 인간의 피부색은 또한 케라티노사이트에서 멜라노솜 조절 분해 autophagy에 의해 영향을 받습니다[19].


각질 세포가 UV에 노출되면[20] 멜라닌 세포 자극 호르몬(-MSH), 부신피질 자극 호르몬(ACTH) 및 프로스타글란딘 E2(PGE2)를 방출합니다[21]. 이러한 신호 분자는 멜라노사이트 막의 멜라노코르틴 1 수용체(Mc1R)를 통해 아데닐레이트 시클라제의 하류 신호 경로를 활성화하여 MITF, 티로시나제, TRP-1 및 TRP-2를 강화하여 멜라닌 생성을 유도합니다[22 ] 그리고 IP3/DAG 메커니즘을 통해 비활성 형태의 티로시나아제를 활성 형태로 활성화합니다. 우리의 작업은 36H가 MITF RNA 발현을 변화시켰지만 단백질 생산량에는 미미한 변화가 있음을 보여주었습니다. Tyrosinase는 멜라닌 생합성과 TRP-2 및 TRP-1에 영향을 미칩니다[23]. 도파크롬은 TRP- 2에 의해 5,6-디하이드록시 인돌-2카르복실산으로 촉매되고, 5,6-디하이드록시 인돌-2카르복실산은 인돌-2로 전환됩니다. {25}},6-퀴논 카르복실산은 TRP-1를 통해 [24], 유멜라닌으로 합성됩니다[16]. 버섯 티로시나아제 및 세포 티로시나아제 분석에서 36H는 티로시나아제 활성을 하향 조절했습니다. TRP-2 및 TRP-1는 RNA 수준에서 감소하였지만 대조군과 비교하여 단백질 수준의 차이는 미미하였다. 멜라노솜 성숙에서 Pmel17은 멜라노솜의 전구체입니다. 그것은 멜라노좀 미세구조의 기초가 되는 줄무늬 패턴을 형성하기 위해 단편으로 단백질 분해됩니다[25]. 웨스턴 블롯을 사용하여 Pmel17은 멜라노솜의 성숙을 방해하는 RNA 및 단백질 발현 모두에서 감소하는 것으로 나타났습니다.

인간 피부 멜라닌은 멜라닌 함유 멜라노좀이 HMC 수상돌기 말단에서 인접한 케라티노사이트로의 세포간 이동에 의해 구동됩니다. 멜라노솜은 액틴 필라멘트에 의해 운반될 때 세포외배출을 통해 수지상 꼬리 부분으로 이동하고 각질 세포로 운반됩니다[26]. 케라티노사이트로 전달되는 멜라닌의 양이 많을수록 피부색이 어두워집니다[27]. 미세소관의 움직임은 dynein-dynactin 모터 복합체에 따라 달라집니다. Mreg는 Rab-interacting lysosomal protein과 dynactin의 subunit인 p150(Glued)과 복합체를 형성한다[28]. Mreg는 HMC에서 케라티노사이트로 멜라노솜을 운반하는 셰딩 시스템을 조정합니다. 멜라노좀이 풍부한 패키지의 HMC로부터의 쉐딩 과정은 케라티노사이트의 식균작용을 겪습니다. 흘림은 주로 수지상 말단뿐만 아니라 중앙 영역 주변에서도 발생하며, 케라티노사이트에 부착되고, 형성 패키지 뒤에서 조여지고, 명백한 자가 이탈이 발생합니다[29]. 액틴 필라멘트의 움직임에는 연결 다리로서 Myo5a, Rab27a 및 MLPH가 필요합니다[30]. 36H는 Myo5a의 단백질 발현을 하향 조절하여 피부색이 어두워지는 것을 방지할 수 있습니다. 종합적으로, 데이터는 36H가 화장품 적용 가능성이 있는 효과적인 피부 미백제임을 보여줍니다(그림 7).

이해 상충
저자는 이 연구의 출판과 관련하여 경쟁적인 이해 관계가 없습니다.
저자의 기여
Li-Ching Lin, Byeong Hewang Hwang, Yueh-Hsiung Kuo, Hui-Min David Wang은 실험을 고안하고 설계했습니다. Li-Ching Lin, Chung-Yi Chen, Chia-Hung Kuo, Yun-Sheng Lin이 실험을 수행하고 데이터를 분석했습니다. Yueh-Hsiung Kuo는 시약, 재료 및 분석 도구를 제공했습니다. Li-Ching Lin, Chung-Yi Chen, Tina Kaiting Wang, Hui-Min David Wang이 논문을 작성했습니다. Li-Ching Lin과 Chung-Yi Chen이 이 작업에 동등하게 기여했습니다.

감사의 말
저자는 실험적 지원에 대해 Pei-Lun Liao에게 감사를 표합니다. 이 작업은 대만 과학 기술부의 보조금으로 지원되었습니다(MOST 104-2622-E-037-001, MOST104-2622-E-037-003- CC2, MOST104-2221-E -037-005-MY2 및 MOST104- 2628-E-037-001-MY3). 또한 저자는 대만 가오슝에 있는 가오슝 의과 대학 줄기 세포 연구 센터(KMU-TP104G00, KMU-TP104G01 및 KMU-TP104G02-05)의 프로젝트에 감사드립니다.
참조
[1] KC Chon, CY Wu, JY Chen et al., "BubR1은 MMP-2 및 MMP-9 조절을 통해 인간 구강 편평상피암 세포의 세포 운동성 촉진제 역할을 합니다." International Journal of 분자 과학, vol. 16, 아니. 7, pp. 15104–15117, 2015.
[2] HM Wang, CY Chen, ZH Wen, "인간 티로시나제를 표적으로 하여 시험관 내 및 생체 내 스크리닝 시스템을 사용하여 Cinnamomum subavenium의 멜라닌 생성 억제제 확인", Experimental Dermatology, vol. 20, 아니. 3, pp. 242–248, 2011.
[3] HM Wang, CY Chen 및 PF Wu, "Isophilippinolide a는 인간 흑색종 세포에서 세포 주기 진행을 정지시키고 항암 억제제에 대한 세포사멸을 유도합니다." Journal of Agricultural and Food Chemistry, vol. 62, 아니. 5, pp. 1057–1065, 2014.
[4] NP Edwards, "싱크로트론 X선 이미징 및 흡수 분광법을 통한 깃털의 멜라닌 원소 특성화", Scientific Reports, vol. 6, 아니오. 2016년 1월 1일.
[5] HM Wang, "Synsepalum Dulcifificum Daniell(사포타과) 줄기의 생체 성분은 인간 흑색종 증식을 억제하고, 버섯 티로시나제 활성을 감소시키며, 항산화 특성을 가집니다." Journal of the Taiwan Institute of Chemical Engineers, vol. 42, 아니. 2, pp. 204–211, 2011.
[6] BH Chen, HW Chang, HM Wang 등, "(-)-Anonaine은 DNA 손상을 유도하고 인간 폐암 H1299 세포의 성장 및 이동을 억제합니다." Journal of Agricultural and Food Chemistry, vol. 59, 아니. 6, pp. 2284–2290, 2011.
[7] YC Chou, JR Sheu, CL Chung 등, "N-2-(4-브로모페닐) 에틸 카페인에 의한 MMP-9 생성에 대한 NF-κB의 핵 표적 억제 인간 단핵구 세포에서," Chemico-Biological Interactions, vol. 184, 아니. 3, 403~412쪽, 2010년.
[8] WJ Li, YC Lin, HM Wang 및 CY Chen, "항산화제 및 항멜라닌 생성 특성을 지닌 Liriodendron tulipifera의 생체 기능 성분", International Journal of Molecular Sciences, vol. 14, 아니. 1, pp. 1698–1712, 2013.
[9] CH Liang, TH Chou 및 HY Dinget, "Origanum Vulgare의 새로운 오리가노시드에 의한 멜라닌 생성 억제", Journal of Dermatological Science, vol. 57, 아니. 3, pp. 170–177, 2010.
[10] VJ 히어링, "멜라닌 합성 경로의 결정," Journal of Investigative Dermatology, vol. 131, 아니오. E1, pp. E8–E11, 2011.
[11] X. Wu 및 JA Hammer, "Melanosome transfer: 주고 받는 것이 가장 좋습니다." Current Opinion in Cell Biology, vol. 29, pp. 1–7, 2014.
[12] M. Sckolnick, EB Krementsova, DM Warshaw 및 KM Trybus, "멜라노필린은 단순한 카고 어댑터 이상으로 미오신 Va의 진행을 연장하고 느리게 합니다." Journal of Biological Chemistry, vol. 288, 아니오. 41, pp. 29313–29322, 2013.
[13] 진은호, "프로폴리스의 Cafffeic acid phenyl ester는 matrix metalloproteinase-9의 강력한 억제제 및 침입 억제제: 분리 및 동정," Clinica Chimica Acta, vol. 362, 아니. 1-2, pp. 57–64, 2005.
[14] CY Chen, CC Chiu, CP Wu 및 HM Wang, "6-dihydro-ginger-dione을 통한 피부 세포 증식 및 이동의 향상", Journal of Agricultural and Food Chemistry, vol. 61, 아니. 6, pp. 1349–1356, 2013.
[15] BR Zhou, LW Ma, J. Liu, et al., "인간 피부의 자외선 B 유도 급성 광손상에서 콩 올리고펩티드의 보호 효과", Oxidative Medicine and Cellular Longevity, vol. 2016, 문서 ID 5846865, 13페이지, 2016.
[16] H. Ando, H. Kondoh, M. Ichihashi 및 VJ Hearing, "Tyrosinase의 품질 관리를 통한 멜라닌 생합성 억제제 식별에 대한 접근", Journal of Investigative Dermatology, vol. 127, 아니. 4, pp. 751–761, 2007.
[17] A. Ascenso, T. Pedrosa, S. Pinho et al., "UV-B 조사된 인간 각질 세포에 대한 리코펜 사전 노출의 효과", 산화 의학 및 세포 장수, vol. 2016, 문서 ID 8214631, 15페이지, 2016.
[18] PH Li, YP Chiu, HM Wang, et al., "Equisetum Ramosissimum 추출물의 생체 기능 활성: 산화, 흑색종 및 멜라닌 생성에 대한 보호 효과," Oxidative Medicine and Cellular Longevity, vol. 2016, 문서 ID 2853543, 9페이지, 2016.
[19] D. Murase, A. Hachiya, K. Takano 등, "Autophagy는 케라티노사이트에서 멜라노솜 분해를 조절하여 피부색을 결정하는 중요한 역할을 합니다." Journal of Investigative Dermatology, vol. 133, 아니오. 10, pp. 2416–2424, 2013.
[20] A. Gęgotek, P. Rybałtowska-Kawałko 및 E. Skrzydlewska, "UVA 및 UVB 방사선에 의해 변경된 섬유아세포에서 지질 대사 및 세포 신호 경로 상호 작용의 매개체로서의 루틴", 산화 의학 및 세포 장수, vol. 2017, 문서 ID 4721352, 20페이지, 2017.
[21] G. Yang 및 L. Chen, "심혈관 건강 및 질병에서 마이크로솜 프로스타글란딘 E Synthase-1 및 PGE2 수용체의 업데이트", Oxidative Medicine and Cellular Longevity, vol. 2016, 문서 ID 5249086, 9페이지, 2016.
[22] SJ Robinson 및 E. Healy, "인간 멜라노코르틴 1 수용체(MC1R) 유전자 변이체는 흑색종 세포 성장 및 세포외 기질에 대한 부착을 변경합니다." Oncogene, vol. 21, 아니. 52, pp. 8037–8046, 2002.
[23] A. Curnow 및 SJ Owen, "자외선 차단 피부과 제제의 잠재적 천연 성분으로서 Althea officinalis(마시멜로) 및 Astragalus 막에서 유래한 뿌리 파이토케미칼의 평가", Oxidative Medicine and Cellular Longevity, vol. 2016, 문서 ID 7053897, 9페이지, 2016.
[24] HL Chou, Y. Fong, HH Lin 등, "산화 스트레스 및 JNK 활성화 증가를 통해 인간 비소세포 폐암 세포에 대한 캄프토테신 감작제로서의 아세트아미드 유도체", 산화 의학 및 세포 장수, 권. 2016, 문서 ID 9128102, 13페이지, 2016.
[25] MS Marks 및 MC Seabra, "The melanosome: membrane dynamics in black and white," Nature Reviews Molecular Cell Biology, vol. 2, 아니오. 10, pp. 738–748, 2001.
[26] M. Fukuda, TS Kuroda 및 K. Mikoshiba, "Slac2-a/melanophilin, Rab27과 미오신 Va 사이의 누락된 링크: 멜라노좀 수송을 위한 삼중 단백질 복합체의 의미," Journal of Biological Chemistry , 권. 277, 아니. 14, pp. 12432–12436, 2002.
[27] C. Delevoye, "멜라닌 이동: 케라티노사이트는 대식가보다 더 많습니다." Journal of Investigative Dermatology, vol. 134, 아니오. 4, pp. 877–879, 2014.
[28] N. Ohbayashi, Y. Maruta, M. Ishida 및 M. Fukuda, "멜라노레귤린은 멜라닌세포에서 RILP-p150Glued 복합체와의 상호작용을 통해 역행성 멜라닌소체 수송을 조절합니다." Journal of Cell Science, vol. 125, 아니. 6, pp. 1508–1518, 2012.
[29] XS Wu, A. Masedunskas, R. Weigert, NG Copeland, NA Jenkins 및 JA Hammer, "멜라노레귤린은 멜라노사이트에서 각질 세포로 멜라닌소체 이동을 유도하는 쉐딩 메커니즘을 조절합니다." 국립 과학 아카데미 회보, vol. 109, 아니. 31, pp. E2101–E2109, 2012.
[30] T. Soldati 및 M. Schliwa, "세포 내이입 및 재활용에서 멤브레인 트래픽 강화", Nature Reviews Molecular Cell Biology, vol. 7, 아니오. 12, pp. 897–908, 2006.
추가 요청: david.deng@wecistanche.com WhatApp:86 13632399501