
당신이 알아야 할 알부민과 메갈린
Mar 20, 2022
연락하다:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
2부: 알부민의 신장 처리 - 초기 발견에서 현재 개념까지
Jakub Gburek, Bogusława Konopska 및 Krzysztof Goł ˛ab
1부로 이동하려면 여기를 클릭 // Ⅲ부를 보려면 여기를 클릭하십시오

3.3. 큐빌린
큐빌린로 확인되었다알부민Birn et al.의 수용체. 2000년 [64]. 고립 된 저자큐빌린고정된 알부민과 친화성 크로마토그래피를 사용하여 쥐의 신장 브러시 경계의 막에서. 그들은 또한 표면 플라즈몬 공명(Kd{1}}.63 uM)에 의해 복합체의 해리 상수를 결정하고큐빌린및 억제된 마우스메갈린발현은 상당한 양의 알부민을 소변으로 배출합니다. 더욱이, 그들은 또한 알부민 엔도사이토시스에서 두 수용체의 상호 상호작용을 나타내었다.
큐빌린분자량이 약 460 kDa인 세포외 당단백질입니다. 초기에는 토끼의 신장브러시(renal brush border) 주사 후 생성된 기형유발항체의 항원으로 확인되었다. 원래 당단백질 280(gp280)으로 알려진 이 단백질은 근위 세뇨관과 난황 상피에 위치했습니다. 그 발현은 회장, 자궁 및 태반에서도 발견되었습니다. 처음에는 이 단백질에 대한 리간드가 없었습니다. 이후의 연구에서는큐빌린소장에 존재하는 내인성인자-비타민 B12(IF-B12) 복합체의 수용체와 동일합니다. 수용체 단백질의 기능이 그것에 할당되었습니다[65]. 인간큐빌린유전자는 10p12.{2}}p13 염색체에 있었습니다. 이 단백질은 110개의 아미노산으로 구성된 N-말단 부분과 8개의 EGF-like(EGF-like) 도메인과 27개의 보체 C1r/C1s 유사 도메인으로 구성되어 있습니다. ), 골형성 단백질1(CUB).큐빌린막 횡단 도메인이 없습니다. N-말단은 막에 포함된 단백질을 담당합니다. 각 CUB 도메인은 110개의 아미노산 잔기로 구성됩니다. CUB 도메인의 구조는 5개의 역평행 시트로 구성된 2개의 레이어로 구성되어 있으며, 또한 -구조로 연결되어 있습니다. 그들은 분자의 가장 보수적인 영역을 구성하고 리간드 결합을 담당합니다. 뿐만 아니라알부민및 IF-B12, 철 함유 단백질(트랜스페린, 헤모글로빈, 미오글로빈), 아포지단백질 A1 및 비타민 D 결합 단백질도 56,59,66,67I에 결합할 수 있습니다. 시험관 내 발현에 대한 알부민 결합 분석큐빌린단편은 CUB 도메인 6-8 [68] 내의 결합 부위를 식별하는 것을 가능하게 했습니다. 이러한 부위는 HK-2 세포(인간 신장 근위 세뇨관, 성인 남성, 유두종 불멸화)를 사용한 경쟁 연구에서 입증된 바와 같이 헤모글로빈의 결합 부위와 부분적으로 겹칠 가능성이 있습니다[69].
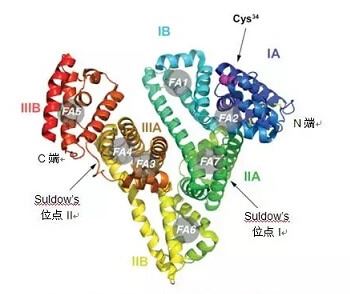
큐빌린완전히 독립적인 세포내이입 수용체가 아닙니다. 적절한 막 위치 및 안정성을 위해 AMN 단백질과 상호 작용해야 합니다. 또한 이 단백질은 다음을 담당합니다.큐빌린내면화. 최근에, AMN 세포질 도메인의 FNXNPXF 서열이 기능적으로 활성이고 어댑터 단백질인 비활성화된 단백질{0}}(Dab2) 및 상염색체 열성 콜레스테롤혈증 단백질(ARH)과 상호작용하여 복합체의 격리를 매개한다는 것이 입증되었습니다. CUBAM 내재화는 다음과의 연관을 통해서도 발생할 수 있습니다.메갈린[55,70]. 메갈린책임이 있는 것 같다.큐빌린세포막 유지. 동시 발산큐빌린Donnai-Barrow/FOAR 증후군(Facio-Oculo-Acustico-Renal Syndrome) 환자에서 세포질 보유로 이어지는 이 수용체 유전자의 기능적 돌연변이로 인해 막과 소변으로 소실되는 것이 발견되었습니다[71].
튜블러에서 CUBAM의 주요 역할알부민신장 특이적인 녹아웃이 있는 쥐를 대상으로 한 최근 연구에서 흡수가 입증되었습니다.큐빌린그리고메갈린, 중등도의 세뇨관 알부민뇨가 관찰되었습니다[54,72]. 이 관찰은 Imerslund-Gräsbeck 증후군 환자의 유전 및 표현형 분석에서도 확인되었습니다.큐빌린또는 AMN 유전자. 두 경우 모두 알부민 및 기타 리간드큐빌린소변으로 사라졌다[58].
재미있게,큐빌린그리고메갈린보고된 것과 유사한 패턴에 따라 쥐와 인간 사구체에서도 검출되었습니다.메갈린. 큐빌린족세포에서 표면 및 세포내 발현을 모두 나타냈다[73]. 더구나,큐빌린mRNA 발현은 mesangial 세포에서 감지되었지만 양막이 없다는 것은큐빌린이 세포에서 완전히 기능하지 않습니다. 그럼에도 불구하고,알부민endocytosis는 inducible하에서 상당히 손상되었습니다.메갈린안정적으로 형질도입된 간세포의 녹다운 조건 |74]. 이러한 발견은 사구체 병증을 더 잘 이해하는 데 중요할 수 있습니다.
cistanche 남성 혜택
3.4. 메갈린
메갈린로 확인되었다알부민Cui et al. 1996년 [75]. 연구는 콜로이드 금 또는 125I요오드 동위원소로 표지된 알부민 용액을 쥐의 근위 세뇨관에 주입하여 생체 내에서 수행되었습니다. 실험에서, 이들 단백질의 관상 흡수에 대한 많은 화합물의 영향이 결정되었다. 수용체 관련 단백질(RAP), 사이토크롬 C 감소 및 겐타마이신 투여는 표지된 알부민의 세뇨관 재흡수를 완전히 억제했습니다. 이러한 리간드는 높은 친화성을 특징으로 합니다.메갈린, 그리고 그들의 존재는 이 수용체를 통한 알부민의 결합을 효과적으로 방해합니다. 흡수를 억제하는 Ca2+이온의 킬레이트제인 EDTA에도 동일하게 적용됩니다. 이것은메갈린이 단백질의 세뇨관 재흡수에 기여합니다. 이러한 결론은 고정된 컬럼에서 친화성 크로마토그래피에 의해 확인되었습니다.메갈린.
메갈린원래 Heymann형 막성 신증에서 항원으로 발견되었으며 glycoprotein 330(gp 330)으로 불렸습니다. 1994년 성공적인 복제 시도 후 그 구조가 더 잘 알려졌고 현재 사용 중인 이름으로 변경되었습니다[76. 인간메갈린유전자는 염색체 2g{1}}g31에 있었습니다.메갈린저밀도 지단백질 수용체 계열에 속하는 큰 막횡단 단백질입니다. 근위 세뇨관에서는메갈린apical membrane과 clathrin-coated endocytic vesicles에서 발견된다. 이 단백질은 분자량이 600kDa이고 약 4600개의 아미노산 잔기로 구성되어 있습니다. 그만큼메갈린분자는 큰 N-말단 세포외 도메인, 단일 막횡단 도메인 및 짧은 C-말단 세포질 단편을 포함합니다. 세포외 도메인에는 시스테인이 풍부한 4개의 영역이 있으며 리간드 결합을 담당합니다. 표피 성장 인자(EGF)와 유사한 서열의 여러 반복과 YWTD 모티프를 포함하는 시스테인이 부족한 단편은 리간드 결합 영역을 임베딩 부분에서 분리합니다. 신호 서열은 산성 엔도솜 환경에서 리간드의 해리를 담당합니다. 세포질 부분에는 비활성화된 단백질-2(Dab2) 어댑터 단백질[77]을 통해 코팅된 구덩이에 수용체를 집중시켜 알부민 세포내이입 과정을 시작하는 3개의 NPXY 모티프가 포함되어 있습니다. 이 어댑터의 모집은 차례로 단백질 키나제 B(Aktl 및 Akt2)에 의해 촉매되는 인산화에 의존합니다[78,79].
메갈린또한 많은 다른 단백질에 결합하는 능력이 있습니다. 알부민 외에도 리간드에는 아포지단백질(B, E, HD), 비타민 수송 단백질(A, D, B12), 호르몬(안지오텐신 I, 상피 성장 인자, 렙틴), 효소 및 억제제(리소자임, 플라스미노겐)가 포함됩니다. 및 기타 [80]. 알부민의 경우 수용체 분자의 결합 부위는 아직 매핑되지 않았습니다. 또한 알부민을 포함한 CUBAM 복합체 및 리간드를 내부화합니다. 형성된 복합체는 초기 엔도솜의 형성과 함께 내재화됩니다. 엔도솜 환경의 산성화 후, 복합체는 해리되고 자유 수용체는 조밀한 정점 세관을 통해 세포 표면으로 재활용됩니다[59,66,67,81].
높은 포도당이 조절한다는 것은 언급할 가치가 있습니다.메갈린-신장 근위 세뇨관 세포에서 매개된 알부민 엔도사이토시스. 혈장 포도당 수치 상승 억제메갈린발현 및 결과적으로 알부민 엔도사이토시스[61].

cistanche 남성 혜택
3.5. 면역글로불린 단편의 신생아 Fc 수용체
신장 알부민 흡수에 대한 최근 연구는 여과액으로부터 알부민을 회수하고 세포내 분해로부터 이 단백질을 보호하는 과정에서 신생아 Fc 수용체(FcRn)의 중요한 역할을 나타냅니다. FcRn은 주요 조직적합성 복합체(MHC) 클래스 I 분자와 구조가 유사한 이종이량체 막횡단 단백질입니다. 내피세포와 상피세포에서 흔하다. 그것의 존재는 사구체 족세포와 근위 세뇨관에서 확인되었습니다. 산성 환경(pH 5-6)에서 알부민과 면역글로불린 IgG에 독립적으로 결합하는 능력이 있습니다. pH 값이 7 이상 증가하면 수용체에서 리간드가 방출됩니다[82]. 족세포의 FcRn은 산성 엔도솜 구획에 속하는 소포에 존재하며 사구체 모세혈관 내피를 통과한 면역글로불린과 알부민을 여과 공간으로 결합시키는 역할을 한다. 여과된 단백질은 endocytosis 및/또는 pinocytosis를 통해 족세포에 흡수된 다음 엔도솜의 산성 pH에서 FcRn에 결합됩니다. 단백질을 함유한 세포내 소포는 보우만 캡슐의 내강을 향해 트랜스사이토시스를 겪는다. pH가 증가하는 조건에서 단백질-수용체 복합체가 해리되고 손상되지 않은 단백질이 세포에서 1차 여과액으로 방출됩니다. 이 과정은 좁은 여과 슬릿이 큰 단백질로 막히지 않도록 보호해야 합니다[83,84]. 근위 세뇨관에서 여과 및 재흡수된 알부민의 일부는 세뇨관 상피의 리소좀에서 분해 대상이 아니며 세포내이입 과정에서 대부분 회복됩니다. 이 이론적 모델에서 FcRn은 수용체에서 방출되는 알부민에 결합합니다.메갈린/큐빌린산성 엔도솜 환경에서 복합체를 형성한 다음 트랜스사이토시스를 통해 관 상피 세포의 기저 부위로 보내지며 pH 증가의 결과로 간질 조직으로 방출됩니다[85]. 현재 연구 결과에 비추어 볼 때 근위세뇨관에서 FcRn을 포함한 트랜스사이토시스(transcytosis)에 의한 알부민의 회복은 일어나지만 이는 신체의 정상적인 알부민 항상성에 대한 한계 현상이다[56].

cistanche 남성 혜택