대장균에서 조작된 단일 가이드 RNA를 사용한 유전자 발현 수준의 CRISPRi 매개 조정 가능 제어
Oct 20, 2023
추상적인
Precise control of gene expression is essential for flux redistribution in metabolic pathways. Although the CRISPR interference (CRISPRi) system can effectively repress gene expression at the transcriptional level, it has still been difficult to precisely control the level without loss of specificity or an increase in cell toxicity. In this study, we developed a tunable CRISPRi system that performs transcriptional regulation at various levels. We constructed a single-guide RNA (sgRNA) library targeting repeat, tetraloop, and anti-repeat regions to modulate the binding affinity against dCas9. Each screened sgRNA could regulate the gene expression at a certain level between fully repressing and nonrepressing states (>45-배). 또한 이러한 sgRNA는 다양한 표적 DNA 서열로 모듈식 조절을 가능하게 했습니다. 우리는 이 시스템을 적용하여 대사 플럭스를 재분배하여 예측 가능한 비율로 바이올라신 유도체를 생산하고 리코펜 생산을 최적화했습니다. 이 시스템은 대사 공학 및 합성 생물학의 플럭스 최적화 프로세스를 가속화하는 데 도움이 됩니다.

cistanche tubeulosa - 면역 체계를 향상시킵니다.
Cistanche Enhance Immunity 제품을 보려면 여기를 클릭하십시오.
【추가 요청】 이메일:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
소개
유형 II CRISPR(Clustered Regularly Interspaced Short Palindromic Repeats)/CRISPR 관련(Cas) 시스템은 CRISPR RNA(crRNA), 트랜스 활성화 CRISPR RNA(tracrRNA) 및 Cas9 단백질로 구성된 RNA 유도 DNA 절단 시스템입니다(1 ,2). Streptococcus pyogenes의 Cas9는 잘 특성화된 특성으로 인해 게놈 공학에서 널리 사용되었습니다(3,4). spCas9 단백질, tracrRNA 및 crRNA의 복합체는 5'-NGG-3' 프로토스페이서 인접 모티프(PAM) 존재 하에서 crRNA의 20개 뉴클레오티드(nt) 스페이서 서열에 상보적인 표적 DNA 프로토스페이서에 결합하여 절단합니다. ) 순서 (5,6). 시스템을 단순화하기 위해 crRNA와 tracrRNA가 테트라루프라고 불리는 인공 링커에 의해 연결되는 키메라 단일 가이드 RNA(sgRNA)를 사용할 수 있습니다(5). 두 개의 개별 RNA를 단일 RNA 분자로 대체할 수 있어 시스템 관리가 더욱 쉬워집니다. CRISPR 기반 시스템 중 하나인 CRISPR 간섭(CRISPRi)은 각 엔도뉴클레아제 도메인의 특정 아미노산을 대체하여 촉매적으로 비활성인 Cas9(dCas9)를 활용합니다(7). 이 변형은 표적 DNA를 지시하고 결합할 수 있는 리보핵단백질(RNP) 복합체를 만들고 RNA 중합효소(RNAP)를 방해하여 전사 개시 또는 신장을 억제합니다(7). CRISPR/Cas9 시스템에 의한 녹아웃과 달리 CRISPR은 유도성 프로모터 하에서 dCas9 또는 sgRNA를 발현하여 유전자의 가역적 녹다운을 허용하여 유전자 조절에 더 많은 유연성을 허용합니다(7). CRISPRi 시스템은 표적 유전자를 수백 배 효과적으로 침묵시켰습니다(7,8). 표적 특이적 유전자 억제는 게놈 차원의 sgRNA 풀(9)을 사용하여 높은 처리량의 표현형 분석을 가능하게 하거나 조작된 박테리아의 탄소 흐름을 표적 화학 물질로 방향을 바꿉니다(10-12). 또한 다중 CRISPRi는 긴 crRNA 어레이, 발판 스위치 통합 및 비반복적 엑스트라롱 sgRNA 어레이를 포함하여 여러 sgRNA를 안정적으로 발현하기 위한 다양한 방법을 사용하여 다양한 호스트에서 입증되었습니다(13-16). 여러 유전자를 동시에 억제하는 이러한 기술은 독성 중간체 감소 또는 박테리아 발효에서 경쟁 경로 차단과 같은 보다 복잡한 작업을 수행하는 데 활용되었습니다(13,16-19). 그러나 대사공학에서는 완전한 억제가 항상 바람직한 것은 아닙니다. 유전자 발현 수준은 성장과 생산 경로 사이에서 최적의 효소 활성을 달성하고, 세포내 전구체 농도의 균형을 맞추고 독성 중간체의 축적을 방지하기 위해 정밀하게 제어되어야 합니다(20-22). CRISPRi의 억제 효율성을 설계하기 위해 다양한 기술이 개발되었습니다. sgRNA 및 dCas9 단백질의 양이나 sgRNA의 선택과 같은 여러 요인이 조작되었습니다. 유도성 프로모터를 사용하여 dCas9 발현 또는 dCas9와 sgRNA 발현을 모두 제어하면 표적 유전자 발현이 각각 30-배 또는 300-배 이상 조절됩니다(23,24). 그러나 dCas9 농도를 조절하면 서로 다른 프로토스페이서에서 억제 효율성이 일관되지 않을 수 있다는 것이 관찰되었습니다(23). 이용 가능한 유도성 프로모터의 제한된 수는 많은 노력에도 불구하고 설계 문제를 야기합니다(25). 또 다른 전략은 리간드 특이적 RNA 앱타머를 sgRNA에 삽입하는 것인데, 여기서 작은 동족 분자가 스페이서를 노출시켜 CRISPRi의 용량 의존적 제어를 가능하게 합니다(26). 적합한 리간드와 앱타머 쌍을 사용할 수 있는 경우 리간드 특이적 sgRNA가 도움이 됩니다. 전사 시작 부위와의 거리와 dCas9 결합 방향도 CRISPRi의 효율성에 영향을 미칩니다(7). sgRNA 결합 부위와 전사 시작 부위 사이의 거리를 조정하면 대사 공학의 경로를 최적화할 수 있습니다(17,27,28). 스페이서와 프로토스페이서 서열 사이의 혼성화 효율은 또한 RNP 복합체 결합 효율을 변화시킵니다(29-31). 따라서 CRISPRi 효율성을 다양화하기 위해 자유 에너지를 변경하기 위해 시드 영역 외부에 설계된 불일치가 도입되었습니다(31,32). 그러나 각각의 새로운 표적 서열에 대해 sgRNA를 설계해야 하며 불일치만으로 자유 에너지의 상당한 차이를 달성하는 것은 어려울 수 있습니다. 더욱이, 오프 타겟 결합이 증가할 가능성이 있다(33). 그럼에도 불구하고, 표적 서열에 관계없이 모듈식 방식으로 여러 유전자 발현을 정확하게 억제하는 데에는 여전히 제한이 있습니다. 이 연구에서 우리는 높은 정밀도와 예측 가능성으로 유전자 발현을 조절하는 조정 가능한 CRISPRi 시스템을 개발했습니다. 테트라루프와 그 측면 영역을 표적으로 하는 sgRNA 라이브러리의 반복적인 형광 기반 세포 분류를 통해 우리는 표적 DNA가 변경되는 경우에도 최대 45-배의 전사 억제 효율성을 달성했습니다. 이 시스템은 숙주 게놈이나 합성 경로를 조작하지 않고도 대사 플럭스의 예측 가능한 재분배를 허용하여 대사 경로를 최적화하기 위한 유망한 도구를 제공합니다.
재료 및 방법
박테리아 균주, 플라스미드 및 시약
본 연구에 사용된 대장균 균주 및 플라스미드는 보충 표 S1에 나열되어 있습니다. 본 연구에 사용된 프라이머는 보충 표 S2에 나열되어 있습니다. 복제 절차는 보충 방법에 설명되어 있습니다. CRISPR 시스템의 표적 유전자와 표적 DNA 서열은 보충 표 S3에 나와 있습니다. Mach1-T1R은 일반 복제에 사용되었습니다. 라이브러리는 NEB 5-alpha Electrocept E. coli(NEB)를 사용하여 구축되었습니다. 플라스미드와 균주를 만들기 위한 일반적인 배양은 Luria-Bertani(LB) 액체배지 또는 적절한 항생제(34 g/ml 클로람페니콜, 50 g/ml 스펙티노마이신)가 포함된 LB 한천 플레이트에서 37°C에서 수행되었습니다. PCR은 Q5® High-Fidelity DNA Polymerase(NEB)를 사용하여 수행되었습니다. 플라스미드 및 PCR 산물은 GeneAll® Exprep™ Plasmid SV Kit 및 Gel SV Kit(GeneAll Biotechnology)를 사용하여 정제되었습니다. sgRNA 돌연변이체의 억제 효율 밤새 배양 배지를 0.05의 OD600로 새로 고치고 0.6과 0.8 사이의 값에 도달할 때까지 배양했습니다. 그런 다음 배양 배지를 20ng/ml의 aTc를 사용하여 0.05의 OD600으로 희석하고 4시간 동안 배양했습니다. 단일 콜로니의 형광은 Hidex Sense microplate reader(Hidex)를 사용하여 575 nm/616 nm에서 측정하였고, OD600 값은 Jenway 7300 spectrophotometer(Jenway)를 사용하여 결정하였다. 상대 형광은 PC 값을 100%로 설정하여 OD600 값당 형광 단위로 계산되었습니다.
Cistanche tubeulosa의 효과 - 변비 치료
sgRNA 라이브러리 스크리닝
위에서 설명한 것과 동일한 문화적 방법이 사용되었습니다. 배양액을 [세포]로 희석했습니다.<10−7 cells/ml in PBS buffer (pH 7.4). The fluorescence distribution was obtained from 100,000 cells from each sample using S3e Cell Sorter (Bio-Rad), and 5000 cells for each fluorescence range were sorted in each iteration. Cells were overnight cultured in fresh media for the next iteration. Samples were obtained after the final iteration and spread to the LB agar plate. Each colony was inoculated into 100 l of LB media and overnight cultured in 96-well microplate shaking at 900 rpm by Hidex Sense microplate reader (Hidex). Overnight culture media was refreshed by diluting 3 l culture media in 97 l fresh media and incubated for 2 h. Culture media was re-diluted by mixing 6 l culture media with 94 l fresh media, and aTc was added. The fluorescence of every single colony was obtained at 575 nm/616 nm by Hidex Sense microplate reader (Hidex) after 6 h of incubation. The OD600 value from the microplate reader was converted to the OD600 value from the spectrophotometer.
RNA 추출
총 RNA는 RNAprotect Bacteria Reagent(Qiagen)로 처리하고 -80°C에서 보관한 후 sgRNA 정량을 위해 miRNeasy Mini Kit(Qiagen)을 사용할 때만 RNeasy Mini Kit(Qiagen)을 사용하여 추출했습니다. 추출 과정에서 RNase-Free DNase Set(Qiagen)을 사용한 On-column DNA 분해가 수행되었습니다. DNA 오염은 역전사 없이 PCR을 통해 확인되었습니다. 각 시료의 농도와 순도는 NanoDrop One(Thermo Scientific)을 사용하여 측정하였고, 품질은 LabChip GX Touch 24(PerkinElmer)에서 DNA 5K/RNA/CZE 24 LabChip(PerkinElmer)을 사용하여 평가했습니다.

cistanche tubeulosa - 면역 체계를 향상시킵니다.
RT-qPCR 분석
RT-qPCR용 프라이머는 실험실 재고에서 공급되거나 Primer3Plus 도구(34)를 사용하여 설계되었으며 보충 표 S4에 나열되어 있습니다. CysG 유전자는 모든 RT-qPCR 실험에 대한 참조 유전자(35)로 사용되었습니다. 템플릿을 107개/l에서 10−1개/l로 10-배 희석하여 표준 곡선을 생성했습니다. 정량 한계는 카피 수와 양성 증폭률을 시그모이드 함수에 맞추고 95% 양성 카피 수 값을 계산하여 결정했습니다. 선형 동적 범위는 역계산된 Cq 변화가 35% 미만인 가장 낮은 카피 수로 정의되었습니다. 30을 초과하는 Cq 값 또는 비템플릿 제어에서 증폭되지 않은 값이 검증되었습니다. 표준 곡선 데이터는 보충 표 S5 및 보충 그림 S1에서 확인할 수 있습니다. Luna® Universal One-Step RT-qPCR Kit(NEB)를 사용한 10μl RT-qPCR 반응에는 총 2.5ng의 총 RNA가 사용되었습니다. RT-PCR은 StepOnePlus™ RealTime PCR 시스템(Applied Biosystems)에서 다음 단계에 따라 3회 수행되었습니다: (i) 55°C에서 10분간 역전사한 후 95°C에서 1분간 변성시키는 단계; (ii) 95°C에서 10초, 60°C에서 1분 동안 40회의 열 주기; (iii) 95°C에서 15초, 60°C에서 1분 동안 용융 곡선 분석을 수행한 후 0.3°C/min의 속도로 60°C에서 95°C까지 상승합니다. RNA의 상대적 정량화는 delta-deltaCt 방법(36)을 사용하여 측정하고 StepOnePlus™ 소프트웨어(Applied Biosystems)로 분석했습니다.
RNA 서열분석(RNA-seq) 및 데이터 분석
1.5 in biological duplicate. Total RNA was extracted by the abovementioned method, and ribosomal RNA (rRNA) was depleted using Ribo-Zero plus rRNA Depletion Kit (Illumina). cDNA libraries were constructed using KAPA Stranded RNA-Seq Kits (Kapa Biosystems), with an additional size-selection step using AMPure XP (Beckman Coulter). Adapters and primers used in this study are listed in Supplementary Table S2. The concentration was measured using a Qubit 3.0 Fluorometer (Thermo Scientific), and the size distribution of the cDNA was measured using X-Mark LabChip (PerkinElmer) on the LabChip GX Touch 24 instrument. The average cDNA length ranged from 390 to 450 bps. RNA-Seq was performed as >19M reads of 41 bp paired-end using NextSeq 500/550 High Output Kit v2.5 (75 Cycles) (Illumina) on NextSeq 550 (Illumina). Data analysis was performed using the reference genome of E. coli BL21(DE3) complete genome (Genbank CP001509.3) with FastQC (v0.11.9) (http:// www.bioinformatics.babraham.ac.uk/projects/fastqc/) (37), Bowtie (v1.2.3) (38) with trim3 option value of 3, samtools (v1.10) (39), and cufflinks (v2.2.1) (40,41). All samples between replicates had R2 >{{0}}.92 FPKM(백만 매핑된 읽기당 기록의 킬로베이스당 조각)을 기준으로 합니다. 차별적으로 발현된 유전자는 1.5(log{4}} 기반) 및 0.01(q-값)의 임계값에서 얻어졌습니다.
프로비올라신 및 프로데옥시비올라신 생산 및 샘플링
violacein 및 prodeoxyviolacein 생산에는 다음 배지 조성이 사용되었습니다: 10.7 g/l K2HPO4, 5.2 g/l KH2PO4,1g/l NaCl, 1 g/l NH4Cl, 1 g/l MgSO4, { {17}}.2 g/l 효모 추출물 및 1{{20}} g/l 포도당. 밤새 배양 배지를 0.1의 OD600으로 새로 고치고 OD600이 0.6과 0.8 사이에 도달할 때까지 배양했습니다. 그런 다음 배양 배지를 0.1의 OD600으로 희석하고 500ng/ml aTc, 0.05mM IPTG 및 0.1g/l L-트립토판을 최종 부피 5ml로 보충했습니다. 배양액 300ℓ를 채취하여 14 000 rpm에서 5분간 원심분리하여 HPLC 분석을 위한 세포 펠릿을 얻었고, RNA 추출을 위해 배양액 300ℓ를 채취하였다.
HPLC 분석
비올라신 생합성 경로 분석을 위해 세포 펠렛을 {{0}} 부피의 메탄올에 재현탁하고 5분간 초음파 처리한 다음 원심분리하고 0.22-m 나일론 필터를 통해 여과했습니다. HPLC 분석은 Poroshell 120 EC-C18, 4.6 × 150 mm, 4 m 컬럼(Agilent)을 사용하여 방법(42)을 따랐습니다. 2개의 이동상(DDW에 0.1% 포름산이 포함된 A 및 아세토니트릴에 0.1% 포름산이 포함된 B)은 다음과 같은 구배 프로파일을 사용하여 0.6ml/분의 유속으로 사용되었습니다. 1.5분 동안 95% A, 95에서 A까지 램핑 4분 동안 %에서 2%로, 2분 동안 2% A를 유지하고, 30초 동안 A를 2%에서 95%로 높이고, 10분 동안 95% A를 유지합니다. 샘플은 PDA 검출기를 사용하여 검출하였고, HPLC 면적은 비올라신의 경우 600 nm, 프로데옥시비올라신의 경우 610 nm에서 결정되었습니다.
리코펜 생산 및 샘플링
리코펜 생산을 위해 다음 배지 조성을 사용했습니다: 13.56 g/l Na2HPO4,6g/l KH2PO4,2g NH4Cl, 1 g NaCl, 2 ml의 1 M MgSO4, 0.1 ml의 1 M CaCl2 및 4 g/l의 포도당(22). 27 g/ml 클로람페니콜과 50 g/ml 스펙티노마이신을 사용했습니다. 밤새 배양 배지를 0.1의 OD600로 최종 부피 5ml로 새로 고쳤습니다. OD6{35}}0이 0.5~0.6에 도달하면 aTc를 최종 농도 500ng/ml에 첨가하고, OD600이 0.9~1에 도달하면 IPTG를 최종 농도 0.02mM에 첨가했습니다. 리코펜은 참고문헌(22)에 설명된 대로 아세톤을 사용하여 추출되었습니다. 리코펜의 농도는 표준곡선을 사용하여 Jenway 7300 분광광도계를 사용하여 475 nm에서의 흡광도로부터 구했습니다. RNA 추출을 위해 300 l의 배양 배지를 샘플링했습니다.

남성의 면역체계 강화를 위한 시스탄체의 효능
결과 및 토론
CRISPR 시스템의 억제 효율에 대한 sgRNA의 돌연변이 효과
CRISPRi 시스템은 dCas9-sgRNA-DNA 삼원 복합체가 강하게 결합할 때 유전자 발현을 억제할 수 있습니다. 우리는 RNP 복합체 형성을 조절함으로써 CRISPRi 시스템의 억제 효율이 특정 수준으로 변경될 수 있다는 가설을 세웠습니다. CRISPR 시스템의 억제 효율을 정량화하기 위해 우리는 S. pyogenes의 dCas9가 안히드로테트라사이클린(aTc)에 의해 유도되고 리포터 유전자(mCherry)와 sgRNA 변이체가 구성적으로 발현되는 유전 회로를 기반으로 하는 형광 보고 시스템을 설계했습니다(그림 1A). aTc가 배지에 추가되면 dCas9-sgRNA- DNA 삼원 복합체는 리포터 유전자의 전사를 차단하고 형광 수준은 역으로 CRISPR 시스템의 억제 효율성을 나타냅니다. sgRNA에는 총 96개의 뉴클레오티드(nt)가 포함되어 있습니다. 스페이서 영역(처음 20nt)은 표적 DNA 서열에 결합하고 나머지 76nt는 복합체 형성 및 안정성에 기여합니다. 스페이서 영역의 불일치는 CRISPR 기반 시스템에서 특이성을 잃고 표적 외 효과를 증가시킬 수 있으므로(33,43) 조작할 수 있는 sgRNA의 최대 길이는 76nt입니다. 이 경우 476(약 1045)의 라이브러리 크기를 얻어야 하는데 너무 커서 구축할 수 없다. 따라서 sgRNA의 특정 위치를 결정하여 라이브러리의 크기를 줄이는 것이 필요합니다. 우리는 먼저 각 영역의 sgRNA 돌연변이가 CRISPR 시스템의 억제에 어떻게 영향을 미치는지 조사했습니다. 이전 연구에서는 줄기 루프 1(sg mut01 및 sg mut02)의 돌연변이로 인해 Cas9의 뉴클레아제 활성이 크게 감소한 반면, 줄기 루프 2(sg mut03) 또는 줄기 루프 3(sg)의 돌연변이가 발생했다고 보고했습니다. mut04)는 활동에 영향을 미치지 않았습니다(44). 스템-루프 1 영역과 반복, 테트라루프, 항반복 및 스템-루프 2 영역에 돌연변이를 포함하는 재구성된 sgRNA(sg mut05)도 뉴클레아제 활성을 감소시켰습니다(44). 그러나 CRISPRi 시스템에서는 5가지 sgRNA 변이체 모두 야생형 sgRNA(sg WT)에 비해 억제 효율에 거의 영향을 미치지 않았으며, 각 변이체는 스페이서 영역이 없는 양성 대조군과 비교하여 2~4%의 형광 수준을 나타냈습니다. sg PC)(그림 1B). 이러한 결과는 dCas9-sgRNA 복합체의 형성이 CRISPR/Cas9 시스템과 달리 CRISPRi 시스템의 스템-루프 1 영역의 서열 변형에 덜 민감하다는 것을 시사합니다. 우리는 복합체의 안정성과 관련된 영역을 제거하는 것이 여러 수준에서 발현을 추가로 제어하는 출발점이 될 수 있다는 가설을 세웠습니다. 이를 위해 우리는 링커, 스템 루프 2 및 스템 루프 3이 없는 잘린 sgRNA(sg trcSL1)를 구성했습니다. 이 잘린 sgRNA는 최소한의 구성 요소를 가지며 CRISPR/ Cas9 시스템(5,44). CRISPRi 시스템에서 테스트했을 때, 이 결함이 있는 돌연변이는 sg PC에 비해 8%의 형광 수준을 나타냈는데, 이는 dCas9에 결합하여 삼항 복합체 안정성이 감소하더라도 특정 수준에서 관심 유전자를 억제할 수 있음을 시사합니다(그림 1B). RNP 복합체의 구조 분석은 sgRNA의 링커, 스템-루프 2 및 스템-루프 3 영역이 dCas9의 뉴클레아제 도메인과의 상호작용을 통해 복합체를 안정화하는 역할을 담당하며, 이로 인해 indel이 크게 감소함을 시사합니다. CRISPR/Cas9 시스템의 효율성(44). 대조적으로, sgRNA의 반복: 항반복 영역 및 스템-루프 1은 주로 dCas9의 인식 도메인 및 PAM 상호작용 도메인과 상호작용하며 CRISPR/Cas9 시스템의 인델 효율성에 큰 영향을 미치지 않습니다(44). 이 결과는 sg trcSL1이 CRISPR/Cas9 시스템에서 뉴클레아제 활성의 상당한 감소를 보인 반면 CRISPRi 시스템의 결합 친화력에는 약간만 영향을 미친다는 관찰을 뒷받침합니다.

그림 1. 시스템 구축 및 sgRNA 돌연변이가 억제 효율에 미치는 영향. (A) 억제 효율의 정량화를 위한 두 개의 플라스미드 시스템. p15A 기원의 한 플라스미드는 aTc 유도성 프로모터 아래에 dCas9 유전자와 구성적 프로모터 아래에 mCherry 유전자를 포함합니다. cloDF13 기원의 다른 플라스미드는 구성적 프로모터 아래 야생형 또는 돌연변이 sgRNA를 포함합니다. (B) sg PC와 비교한 각 sgRNA 돌연변이(sg mut01 ~ sg mut05 및 sg trcSL1) 및 sg WT의 상대 형광. +1 ~ + 20는 mCherry 유전자에 결합하는 스페이서 서열입니다. sg PC: 양성 대조군으로서 스페이서가 없는 sgRNA, sg WT: 야생형 sgRNA. 오차 막대는 표준 편차(n=3)를 나타냅니다. P-값은 짝을 이루지 않은 t-테스트에 의해 결정되었습니다. ns: 중요하지 않음, **P< 0.01
다중 수준 발현 제어를 위한 복합체 형성 효율 변화
Tetraloop는 CRISPR-Cas9 시스템에서 crRNA와 tracrRNA를 연결하는 인공 링커입니다(5). dCas9, crRNA 및 tracrRNA로 구성된 삼원 복합체의 결정 구조는 테트라루프와 그 5 및 3 측면 영역이 dCas9와 거의 접촉하지 않는다는 것을 보여주었습니다(44). 동시에, 반복:반복 방지 및 스템-루프 1 영역은 기능 복합체에 중요합니다(44). dCas9와 직접적으로 상호작용하지 않기 때문에 테트라루프와 그 측면 영역은 sgRNA에 추가 단백질을 모집하기 위해 앱타머 서열을 통합하는 등 추가 구성 요소를 사용하여 sgRNA를 조작할 수 있는 잠재적인 위치로 탐색되었습니다(45,46). 이 영역의 돌연변이가 복합체를 완전히 파괴하지 않고도 sgRNA와 dCas9 사이의 결합 친화력을 다양화할 수 있다는 것은 타당합니다. sgRNA와 dCas9 사이의 복합체 형성 효율을 더욱 낮추기 위해 sg trcSL1을 주형으로 사용하여 12- mer 무작위 라이브러리(각각 4nt의 테트라루프 영역과 4nt의 5 및 3 측면 영역)를 구축했습니다(그림 2A). ). 우리는 sg WT(완전 억제 상태)와 sg PC(비억제 상태) 사이의 억제 효율을 다루는 다양한 sgRNA 돌연변이를 얻기 위해 2단계 정렬 전략을 적용했습니다. 우리는 원본 라이브러리를 다양한 형광 강도 범위를 갖는 더 작은 라이브러리로 나눈 다음 더 작은 라이브러리에서 각 sgRNA 변이체의 형광을 개별적으로 식별했습니다. 유세포분석으로 얻은 원본 라이브러리의 형광 분포는 sg PC의 형광 분포와 거의 동일했습니다(그림 2B). 그러나 3개의 연속 정렬 단계 후에 각 라이브러리(고, 중간 및 저)는 sg PC에 비해 각각 63%, 24% 및 14% 중앙 형광 수준을 나타냈습니다(그림 2B). 82개의 콜로니가 이러한 작은 라이브러리에서 분리되었으며, 형광 수준은 8%~104% 범위였습니다(그림 2C). 이러한 결과는 테트라루프와 sgRNA의 측면 영역을 돌연변이시키는 것이 다양한 억제 효율을 위해 dCas9와 sgRNA 사이의 결합 친화력을 조절할 수 있음을 시사합니다. 82개의 sgRNA 콜로니 중 sg WT와 sg PC 사이의 다양한 형광 신호를 갖는 10개의 sgRNA 돌연변이체(sg trcSL1c1-sg trcSL1c10, 보충 표 S6)의 역전사 정량적 PCR(RT-qPCR) 분석은 mCherry 전사체가 증가함에 따라 형광 수준이 선형적으로 증가함을 보여주었습니다. 이는 우리의 CRISPRi 시스템이 전사 수준에서 유전자 발현을 제어한다는 것을 나타냅니다(보충 그림 S2). 조정 가능한 CRISPRi 시스템은 최대 45-배의 억제 제어를 달성할 수 있는 조작된 sgRNA를 활용하여 dCas9 또는 sgRNA의 양을 변경하지 않고도 억제 효율성을 미세 조정할 수 있습니다. 우리 시스템의 주목할만한 장점은 추가 복제가 필요하더라도 의도하지 않은 결과가 발생할 가능성 없이 특정 sgRNA 변이체를 통해 억제 효율성을 미세 조정할 수 있다는 것입니다. 또한, 성장 곡선은 우리 시스템이 상당한 세포 부담을 부과하지 않음을 시사합니다(보충 그림 S3). 또한, 다양한 수준의 억제 효율을 갖는 3개의 sg trcSL1 변이체에 대한 RNA-Seq는 sg WT에서 변경된 262개 유전자와 대조적으로 51~83개 유전자의 발현이 변경되었음을 보여주었습니다(보충 그림 S4). 이러한 결과는 sg trcSL1 변종이 기존 CRISPRi 시스템보다 표적 이탈 효과가 훨씬 낮음을 시사합니다. 이는 특히 대사 경로 최적화에 여러 유전자의 조작이 포함되는 대사 공학 응용 분야와 관련이 있습니다. 부정적인 부작용을 일으키지 않고 유전자 발현을 미세 조정할 수 있는 능력은 최적화 프로세스를 크게 가속화하고 시스템의 전반적인 효율성과 생산성을 향상시킬 수 있습니다.
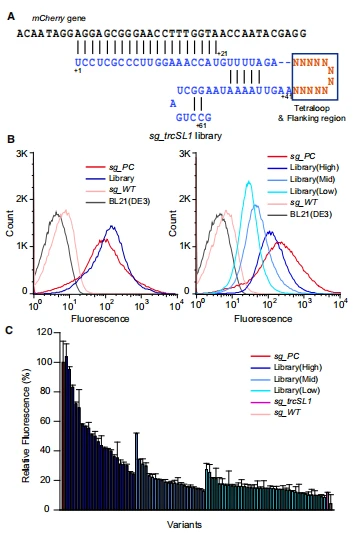
그림 2. sgRNA 라이브러리의 구조 및 라이브러리 스크리닝. (A) 본 연구에 사용된 sgRNA 스캐폴드. tetraloop와 그 측면 서열을 포함하는 12-머는 sg trcSL1에서 무작위로 돌연변이되어 sgRNA 라이브러리를 얻습니다. (B) 분류 전(왼쪽)과 분류 후(오른쪽) 유세포 분석에서 얻은 형광 분포. 각 분포에는 100,000 셀이 포함됩니다. (C)(B)에서 얻은 단일 콜로니의 형광. 오차 막대는 표준 편차(n=2)를 나타냅니다.
dCas9 및 sgRNA의 양이 억제 효율에 미치는 영향
dCas9 또는 sgRNA의 양을 조절하면 CRISPRi 시스템의 억제 효율이 변경될 수 있으므로(23,24), dCas9 및 sgRNA 양이 억제 효율에 미치는 영향을 조사하는 것이 필수적입니다. 우리는 10개의 sgRNA 돌연변이체(sg trcSL1c1-sg trcSL1c10)를 사용하여 dCas9 및 sgRNA의 양을 변경하여 다양한 조건에서 시스템 성능을 테스트했습니다. 세 가지 다른 농도(20, 100, 500ng/ml)의 유도제가 dCas9 발현에 사용되었습니다. 20ng/ml의 유도제를 사용한 경우의 dCas9 mRNA 수준과 비교하면 15-배(100ng/ml) 및 22-배(500ng/ml) 더 증가했습니다(보충 그림 S5A). ). dCas9의 높은 수준은 세포에 독성이 있을 수 있거나(47,48) 때로는 그렇지 않을 수 있기 때문에(49) dCas9의 과발현에 대한 우려가 있습니다. 그러나 다양한 유도제 농도에서의 성장 곡선에 따르면 최대 500ng/ml의 aTc를 사용한 경우 성장률은 10% 미만으로 감소했습니다(보충 그림 S6). 이는 dCas9의 양이 테스트된 조건에서 대장균에 독성 영향을 미치지 않았음을 시사합니다. dCas9의 양이 다르게 발현되면 억제 효율이 약간 변경되었습니다(그림 3A). CRISPRi 시스템이 [aTc]에서 최대 억제 효율에 도달했다는 것은 이전 연구와 일치했습니다.< 5 ng/ml when the same replication origin and promoter were used for the expression of CRISPRi components (24). We set the inducer concentration to 500 ng/ml to sufficiently supply dCas9 for further applications such as multiple gene regulation. The property that our system is less sensitive to the amount of dCas9 has advantages over the strategy of adjusting inducer concentration, as the dose-dependent induction of dCas9 might be varied due to the promoters, plasmid copy numbers, or host strains (50–53). Additionally, using CRISPR-based systems allows for the simultaneous targeting of multiple genes for editing or repression, making it an effective tool for multiplexing gene regulation (54). Our tunable CRISPRi system allows for the precise modulation of repression efficiency through sgRNA variants. With this approach, it would be possible to target multiple genes with varying levels of repression simultaneously. The previous study reported that stronger promoters for sgRNA expression lead to higher repression efficiency (24). To investigate the effect of the amount of sgRNA on repression efficiency in our system, two different promoters having different strengths were used (BBa J23100; J23100 and BBa K2753055; UPJ23119). Promoter UPJ23119 contains a UP element that interacts with E. coli RNA polymerase and expresses 16-fold more transcript than J23100 (55). However, the exact fold change may vary depending on the plasmids, genes, and host strains used. Our results showed that UPJ23119 doubled sgRNA expression in our system and had higher repression efficiency (Figure 3B and Supplementary Figure S5B). These results suggest that adjusting the amount of sgRNA can further expand the dynamic range of multi-level expression and provide precise modulation of repression efficiency.

그림 3. 조정 가능한 CRISPRi 시스템의 특성화 및 모듈성. (A) 다양한 aTc 농도(20, 100 및 500ng/ml)에서의 상대 형광. (B) 다른 프로모터(J23100 및 UPJ23119) 하의 상대 형광. (C) 다른 프로토스페이서 하의 상대 형광. x축은 mCherry의 상대적 형광을 나타내고, y축은 lacI33-mCherry(빨간색)와 araC33-mCherry(파란색)의 상대적 형광을 나타냅니다. lacI 및 araC의 추가 시퀀스 33bp가 mCherry(56)의 5-끝에 추가되었습니다. (D) 12-mer의 자유 에너지와 상대 형광. 점선은 95% 예측 구간을 나타내고 실선은 회귀선을 나타냅니다. sg trcSL1c2의 dG 값은 mFold를 사용하여 얻을 수 없으므로 분석에서 제외되었습니다. (A–D) 모든 오차 막대는 표준 편차(n= 3)를 나타냅니다.
조정 가능한 CRISPRi 시스템의 모듈성
표적 DNA에 대한 특정 발현 수준을 유지하기 위해 특정 sgRNA 변이체를 사용하는 우리의 접근 방식은 모듈식 시스템으로 사용될 가능성이 있습니다. 다양한 프로토스페이서를 표적으로 하는 조정 가능한 CRISPRi 시스템의 타당성을 입증하기 위해 우리는 lacI 및 araC에서 33bps의 시퀀스를 추가하여 두 개의 융합 유전자(lacI{0}}mCherry 및 araC33-mCherry)를 구성했습니다. 5 -mCherry(56) 끝까지. E. coli BL21(DE3)(GenBank: CP001509.3)의 게놈에는 lacI33- mCherry에 대한 프로토스페이서 서열 사본 두 개와 araC33-mCherry에 대한 사본 한 개가 포함되어 있습니다. 그러나 이러한 염색체 서열에는 PAM 서열이 없으므로 dCas{11}}sgRNA 복합체의 표적이 될 수 없습니다(43). siRNA가 각 프로토스페이서를 표적으로 삼도록 설계되었을 때, lacI33, araC33 및 mCherry의 모든 프로토스페이서에 대해 억제 효율이 일관되게 유지되었습니다(그림 3C). 이러한 발견은 우리의 조정 가능한 CRISPRi 시스템이 프로토스페이서 서열에 관계없이 특정 수준에서 유전자 발현을 효과적으로 조절할 수 있음을 시사합니다. RNP 복합체 형성과 억제 효율 사이의 관찰된 관계에 대한 한 가지 잠재적인 설명은 복합체가 형성될 때 자유 에너지의 변화입니다. 인공 테트라루프 링커와 그 측면 영역은 두 개의 A:U 및 G:C Watson-Crick 염기쌍과 A:G 비Watson-Crick 염기쌍을 포함합니다(44). crRNA와 tracrRNA의 결합이 복합체 형성에 중요하기 때문에 테트라루프를 표적으로 하는 돌연변이는 dCas9와 sgRNA 사이의 결합 친화도에 영향을 미칠 것입니다. 이 친화력은 경계 상태와 무한 상태 사이의 자유 에너지 차이로부터 계산할 수 있습니다. 그러나 경계 상태의 자유 에너지를 계산하는 것은 어렵습니다(57). 우리는 라이브러리에서 분류된 sgRNA가 그 기능을 완전히 방해하지 않았기 때문에 경계 상태의 전체 구조와 안정성이 변하지 않는다고 가정했습니다. 더욱이, 테트라루프와 그 측면 영역은 dCas9와 거의 접촉하지 않습니다(44). 따라서 dCas9와 sgRNA 사이의 결합 친화력은 주로 테트라루프의 2차 구조와 그 측면 서열의 안정성에 의해 영향을 받을 것입니다. 이 아이디어를 바탕으로 우리는 Mold(58)를 사용하여 테트라루프와 그 측면 시퀀스의 자유 에너지를 계산했습니다. 돌연변이로 인한 접힘 자유 에너지의 차이는 돌연변이된 서열과 야생형 서열의 자유 에너지 간의 차이로 정의됩니다. 야생형 서열의 접힘 에너지는 -4.3 kcal/mol로 일정하기 때문에 돌연변이 접힘의 자유 에너지로부터 직접 계산할 수 있습니다. 접힘의 자유 에너지가 증가함에 따라 형광 신호가 증가했습니다(그림3D). 억제 효율은 테트라루프 함유 영역의 접힘 에너지가 0 kcal/mol 이하일 때 가장 높았고, 접힘 에너지가 0 kcal/mol을 초과하면 선형적으로 감소했습니다. 이러한 관찰은 dCas9와 sgRNA 사이의 복합체 형성 효율이 테트라루프 영역의 2차 구조에 의해 결정된다는 것을 시사하며, 이는 우리 시스템의 모듈성을 설명하는 데 도움이 됩니다. 이 관계를 추가로 검증하기 위해 라이브러리와 다른 12-mer 서열을 갖는 추가 85개 sgRNA의 억제 효율을 측정했습니다. 또한 sg trcSL1 변종(그림 3D 및 보충 표 S7)에서 관찰된 상관 관계를 보여 주었으며, 이는 테트라루프 링커가 RNP 복합체를 형성하는 데 중요한 역할을 하며 이 영역의 돌연변이가 CRISPR 시스템의 효율성에 영향을 미칠 수 있음을 시사합니다. 또한, 이 관계는 원하는 억제 효율을 갖는 sgRNA 변이체의 컴퓨터 기반 설계 가능성을 보여줍니다.
대장균의 violacein 생합성 경로에서 플럭스 재분배를 위한 조정 가능한 CRISPRi 시스템 적용
Redistributing the metabolic flux is an important process in metabolic engineering to maximize the yield of target products (59,60). Because our system could precisely control gene expression by targeting any protospacer, we chose the violacein biosynthetic pathway as a model system for pathway redistribution. Violacein is an indole derivative compound that exhibits a deep purple color, originally produced by Chromobacterium violaceum (Figure 4A) (61). This compound is synthesized from L-tryptophan by five enzymes encoded by vioA, vioB, vioE, vioD, and vioC (62). Along with violacein (V), other indole derivatives such as proviolacein (PV), deoxyviolacein (DV), and prodeoxyviolacein (PDV) with different colors can also be produced (Figure 4A) (62). The production of violacein and deoxy violacein is an enzymatic process mediated by vioC, while the production of PV and PDV is a non-enzymatic process. We expressed the violacein biosynthetic pathway under the IPTG inducible promoter (63), and different trcSL1 variants were designed to target vioD to redirect the flux. It could effectively modulate the expression of vioD at the transcriptional level (Figure 4B). vioC was repressed by sg WT and showed high variation (Supplementary Figure S7), but the absolute copy number was kept at low levels (>표준 곡선에서 계산할 때 다른 유전자와 비교하면 100-배)입니다. 대조적으로, 비올라신 경로에서 조절되지 않는 다른 효소(vioA, vioB 및 vioE)의 발현은 변하지 않은 채로 유지되었습니다. 이러한 결과는 우리 시스템이 경로의 다른 유전자에 영향을 주지 않고 개별 유전자의 발현을 구체적으로 표적으로 삼고 조절할 수 있음을 시사합니다. HPLC 분석을 위한 상업적으로 이용 가능한 표준이 부족하여 PV 및 PDV의 직접적인 정량화가 불가능했습니다. 따라서 우리는 HPLC 피크 면적을 사용하여 임의 단위로 역가를 측정했습니다. 제품의 역가는 유도 후 8시간에 최대값에 도달한 후 점진적으로 감소했습니다(보충 그림 S8). 이는 아마도 알려지지 않은 메커니즘에 의해 제품이 크로모비리단과 같은 다른 부산물로 전환되었기 때문일 수 있습니다(42,64). HPLC 스펙트럼에서 관찰된 작은 피크는 추가적인 작은 부산물이 있음을 나타냅니다. 이전 연구에서는 임의 단위의 각 생성물 역가의 로그가 비올라신 생합성 경로에 관여하는 각 유전자의 프로모터 강도의 선형 조합에 의해 예측될 수 있음을 입증했습니다(42). 이 로그 선형 회귀 모델은 우리 시스템에서도 유효했으며 vioD 성적표의 증가는 PV 생산량의 증가와 관련이 있었습니다(그림 4B). violacein 생합성 경로에 관여하는 각 유전자의 프로모터 또는 5 -UTR을 조작하면 플럭스 재분배 및 경로 최적화가 가능해진 것으로 알려져 있습니다(65,66). 우리 시스템은 짧고 1단계 방법으로 조립할 수 있는 합성 sgRNA를 사용하여 경로에 관련된 프로모터를 조작하지 않고 전사 제어를 설명하는 대체 방법으로 작동할 수 있습니다. 조정 가능한 CRISPRi 시스템을 통한 스크리닝을 통해 숙주 균주나 유전자 카세트를 직접 조작하기 전에 예측 가능한 흐름으로 경로의 방향을 바꿀 수 있어 잠재적으로 프로세스를 가속화할 수 있습니다.
리코펜 생산 대장균에서 탄소 흐름의 균형을 맞추기 위해 조정 가능한 CRISPRi 시스템 적용
대사공학에서 귀중한 화합물을 효율적으로 생산하려면 탄소 흐름의 균형이 필요합니다. 메틸에리트리톨 4-인산염(MEP) 경로는 이소프레노이드 빌딩 블록인 디메틸알릴 피로인산염 및 이소펜테닐 피로인산염을 생성하기 위해 피루베이트 및 글리세르알데히드 3-인산염(GAP)과 같은 간단한 전구체를 사용하는 대사 경로입니다(67,68) . 이들 분자는 게라닐 피로인산염을 합성하고, 이는 파르네실 피로인산염(FPP)으로 전환됩니다(67,68). 강력한 항산화 특성과 다양한 산업 분야에서 다양한 용도를 지닌 매우 가치 있는 카로티노이드인 리코펜은 crtE, crtB 및 crtI의 일련의 효소 반응을 통해 FPP에서 합성됩니다(그림 4C)(22,70). GAP 전구체는 MEP 경로뿐만 아니라 해당과정 경로에도 필수적입니다(22). 해당과정 경로에서 글리세르알데히드-3-인산염 탈수소효소(GAPDH)를 암호화하는 gapA 유전자의 발현 감소는 GAP 풀을 증가시켜 리코펜 생산을 향상시키는 것으로 나타났습니다(22). 따라서 우리는 다양한 억제 효율성을 보여주는 3개의 sg trcSL1 변종(sg trcSL1c2, sg trcSL1c5 및 sg trcSL1c6), sg PC 및 sg WT를 포함하여 5개의 변종으로 gapA를 목표로 삼았습니다. 그러나 gapA는 완전히 파괴될 수 없는 필수 유전자이다(71,72). sg WT를 사용하여 기존 CRISPRi로 gapA를 억제하려는 시도는 tet 프로모터 하에서 dcas9의 누출이 낮음에도 불구하고 성공하지 못했습니다(73). 반면, 조정 가능한 CRISPRi 시스템을 사용한 gapA 유전자 발현의 다중 수준 억제는 성장 결함 없이 달성되었으며 gapA 유전자를 완전히 발현하는 균주에 비해 리코펜 생산에서 sg trcSL1c6의 2.{26}}배 증가를 가져왔습니다. 재배 15시간 후(그림 4D 및 보충 그림 S9). gapA 유전자의 자연 발현의 10%만이 해당과정 경로의 하류 대사산물(예: 2-포스포글리세레이트 및 3-포스포글리세레이트)에 큰 변화 없이 GAP 풀을 증가시키는 것으로 보고되었습니다( 22). 종합적으로, 이러한 결과는 조정 가능한 CRISPRi가 염색체 조작 없이 여러 수준에서 유전자 발현을 정확하게 억제할 수 있음을 보여줍니다.

그림 4. 바이올라신 생합성 경로를 위한 조정 가능한 CRISPRi 시스템의 적용. (A) Violacein 생합성 경로 및 플라스미드 구성. violacein 생성을 담당하는 5개의 유전자(vioA, vioB, vioC, vioD 및 vioE)를 dCas9-발현 플라스미드에 클로닝했습니다. 4가지 주요 제품(비올라신, 프로비올라신, 데옥시비올라신, 프로데옥시비올라신)이 생산됩니다. vioC의 경우 sg WT 및 vioD의 경우 5개의 sg trcSL1 변이체(sg trcSL1c2, sg trcSL1c5, sg trcSL1c6, sg trcSL1c8 및 sg trcSL1c9)가 다른 억제 효율을 보여 다른 플라스미드에 복제되었습니다. Trp: L-트립토판, V: 비올라신, PV: 프로비올라신, PDV: 프로데옥시비올라신, DV: 데옥시비올라신, PDVA: 프로토데옥시비올라신산, PVA: 프로토비올라신산. (B) vioD 전사체, mCherry 형광, PDV 및 PV 역가 간의 관계. x축은 RT-qPCR에서 얻은 상대 vioD RNA를 나타내고, 왼쪽의 y축은 그림 3의 상대 mCherry 형광을 나타내며, 오른쪽의 y축은 HPLC 영역의 비율을 나타냅니다. vioD RNA 값이 가장 높은 샘플을 정규화를 위해 100%로 설정했습니다. (C) 리코펜 생합성 경로 및 플라스미드 구성. 리코펜 생산을 담당하는 세 가지 유전자(crtE, crtB, crtI)를 dCas9-발현 플라스미드에 클로닝했습니다. gapA는 sg trcSL1 변이체(sg trcSL1c2, sg trcSL1c5, sg trcSL1c6)로 표적화되었고 sg PC는 다른 플라스미드에 클로닝되었습니다. Glc: 포도당, GAP: 글리세르알데히드 3-인산염, 1,3-BPG: 1,3-비스포스포글리세레이트, DMAPP: 디메틸알릴 피로인산염, IPP: 이소펜테닐 피로인산염, FPP: 파르네실 피로인산염. (D) gapA 전사체, mCherry 형광 및 리코펜 생산 간의 관계. x축은 RT-qPCR에서 얻은 상대 갭 RNA를 나타내고, 왼쪽의 y축은 그림 3의 상대 mCherry 형광을 나타내고, 오른쪽의 y축은 리코펜의 역가를 나타냅니다. (B, D) 모든 오차 막대는 표준 편차(n= 3)를 나타냅니다.
결론
우리는 원하는 수준에서 유전자 발현을 정확하게 제어할 수 있는 조정 가능한 CRISPRi 시스템을 설계했습니다. 테트라루프와 그 측면 영역을 돌연변이시킴으로써 다양한 프로토스페이서 서열을 표적으로 하는 합성 sgRNA는 특정 수준에서 유전자를 조절할 수 있습니다. 우리는 이 시스템을 성공적으로 적용하여 violacein 생합성 경로에서 관심 있는 대사 흐름을 방향 전환하여 예측 가능한 비율로 인돌 유도체를 생산했습니다. 또한 조정 가능한 CRISPRi를 사용하면 리코펜 생산량이 2.7-배 증가하여 다른 귀중한 화합물의 생산을 개선하기 위한 시스템의 다양성이 강조되었습니다. 이 시스템은 프로모터 또는 5-UTR 서열 교체와 같은 숙주 유전 정보를 영구적으로 조작하기 전에 플럭스 최적화 프로세스를 가속화합니다.

cistanche tubeulosa - 면역 체계를 향상시킵니다.
참고자료
1. Sapranauskas,R., Gasiunas,G., Fremaux,C., Barrangou,R., Horvath,P. 및 Siksnys, V. (2011) Streptococcus thermophilus CRISPR/Cas 시스템은 대장균에 면역력을 제공합니다. Nucleic Acids Res., 39, 9275-9282.
2. 가시우나스,G., 바랑구,R., 호바스,P. 및 Siksnys, V. (2012) Cas9-crRNA 리보핵산단백질 복합체는 박테리아의 적응 면역을 위해 특정 DNA 절단을 매개합니다. 진행 Natl. Acad. 과학. 미국, 109, E2579–E2586.
3. Cong, L., Ran, FA, Cox, D., Lin, S., Barretto, R., Habib, N., Hsu, PD, Wu, X., Jiang, W., Marraffini, LA 외 . (2013) CRISPR/Cas 시스템을 사용한 다중 게놈 엔지니어링. 과학, 339, 819-823.
4. Ran, FA, Hsu, PD, Wright, J., Agarwala, V., Scott, DA 및 Zhang, F. (2013) CRISPR-Cas9 시스템을 사용한 게놈 엔지니어링. Nat. 프로토콜., 8, 2281-2308.
5. Jinek, M., Chylinski, K., Fonfara, I., Hauer, M., Doudna, JA 및 Charpentier, E. (2012) 적응성 박테리아 면역에서 프로그래밍 가능한 이중 RNA 유도 DNA 엔도뉴클레아제. 과학, 337, 816-821.
6. 앤더스,C., Niewoehner,O., Duerst,A. 그리고 Jinek, M. (2014) Cas9 엔도뉴클레아제에 의한 PAM 의존적 표적 DNA 인식의 구조적 기초. 자연, 513, 569-573.
7. Qi, LS, Larson, MH, Gilbert, LA, Doudna, JA, Weissman, JS, Arkin, AP 및 Lim, WA (2013) CRISPR를 유전자 발현의 서열 특이적 제어를 위한 RNA 유도 플랫폼으로 용도 변경. 세포, 152, 1173-1183.
8. Larson, MH, Gilbert, LA, Wang, X., Lim, WA, Weissman, JS 및 Qi, LS (2013) 유전자 발현의 서열 특이적 제어를 위한 CRISPR 간섭(CRISPRi). Nat. 프로토콜., 8, 2180-2196.
9. McGlincy, NJ, Meacham, ZA, Reynaud, KK, Muller, R., Baum, R. 및 Ingolia,NT(2021) 게놈 규모의 CRISPR 간섭 가이드 라이브러리를 사용하면 효모에서 포괄적인 표현형 프로파일링이 가능합니다. BMC 유전체학, 22, 205.
10. 윤제이. 및 Woo,HM(2018) 호모부티레이트 생산을 위한 Corynebacterium 글루타미쿰의 CRISPR 간섭 매개 대사 공학. 생명공학. Bioeng., 115, 2067-2074.
11. Cleto, S., Jensen, JV, Wendisch, VF 및 Lu, TK (2016) CRISPR 간섭(CRISPRi)을 사용한 Corynebacterium 글루타미쿰 대사 공학. ACS 신디사이저. Biol., 5, 375-385.
12. 장, GQ, 렌, XN, 리앙, XH, 왕, YQ, 펑, DX, 장, YJ, 시안, M. 및 Zou, HB (2021) 아미노산의 미생물 생산 개선: 기존 접근 방식부터 최근 추세까지. 생명공학. Bioproc. E, 26, 708-727.
13. Kim, SK, Seong, W., Han, GH, Lee,DH 및 Lee, SG (2017) 대장균에서 대사 플럭스를 리디렉션하기 위한 내인성 경쟁 경로 유전자의 CRISPR 간섭 유도 다중 억제. 미생물. 세포 사실., 16, 188.
14. 엘리스, NA, 김, B., 퉁, J. 및 Machner, MP (2021) 레지오넬라 뉴모필라(Legionella pneumophila)의 독성 유전자 조사를 위한 다중 CRISPR 간섭 도구입니다. 커뮤니케이터 Biol., 4, 157.
15. 시우, KH 및 첸, W. (2019) 프로그래밍 가능한 CRISPR-Cas9 기능을 위한 리보조절된 발판 게이트 gRNA. Nat. 화학. Biol., 15, 217-220.
16. Reis,AC, Halper,SM, Vezeau,GE, Cetnar,DP, Hossain,A., Clauer,PR 및 Salis,HM (2019) 비반복적인 추가 길이 sgRNA 어레이를 사용하여 여러 박테리아 유전자를 동시에 억제합니다. Nat. 생명공학, 37, 1294-1301.
17. Tian,T., 강, JW, 강, A. 및 Lee, TS (2019) 대장균에서 이소펜테놀 생산을 위한 조합 다중 CRISPRi 매개 억제를 통한 대사 흐름 방향 전환. ACS 신디사이저. Biol., 8, 391-402.
18. Gauttam, R., Seibold, GM, Mueller, P., Weil, T., Weiss, T., Handrick, R. 및 Eikmanns, BJ (2019) Corynebacterium 글루타미쿰의 다중 유전자 표적화를 위한 간단한 이중 유도 CRISPR 간섭 시스템. 플라스미드, 103, 25-35.
19. 야오, L., Cengic, I., Anfelt, J. 및 Hudson,EP (2016) CRISPRi를 사용한 시아노박테리아의 다중 유전자 억제. Acs 신디사이저. Biol., 5, 207-212.
20. 임현수, 노민화, 정진화, 박상. 및 Jung,GY(2016) 대장균의 글리세롤에서 3-히드록시프로피온산 생산 경로의 최적 재균형. ACS 신디사이저. Biol., 5, 1247-1255.
21. 양, Y., 린, Y., 리, L., 린하르트, RJ 및 얀, Y. (2015) 천연물의 생합성 강화를 위해 합성 안티센스 RNA를 통한 말로닐-CoA 대사 조절. 메타탭. Eng., 29, 217–226.
22. Jung,J., Lim,JH, Kim,SY, Im,DK, Seok,JY, Lee,SV, Oh,MK 및 Jung,GY (2016) gapA 발현의 미세 제어를 통한 이소프레노이드 생산을 위한 정확한 전구체 재균형화 대장균. 메타탭. 영어, 38, 401-408.
23. Li, XT, Jun, Y., Erickstad, MJ, Brown, SD, Parks, A., Court, DL 및 Jun, S. (2016) tCRISPRi: 조정 가능하고 가역적이며 유전자 발현을 1단계로 제어합니다. 과학. Rep., 6, 39076.
24. Fontana, J., Dong, C., Ham, JY, Zalatan, JG 및 Carothers, JM (2018) E. coli에서 sgRNA의 조절된 발현은 CRISPRi를 조정합니다. 생명공학. J., 13, e1800069.
25. Kim, NM, Sinnott, RW 및 Sandoval, NR (2020) 비모델 박테리아의 전사 인자 기반 바이오센서 및 유도 시스템: 현재 진행 상황 및 미래 방향. 현재 의견. 생명공학, 64, 39-46.
26. Kundert, K., Lucas, JE, Watters, KE, Fellmann, C., Ng, AH, Heineike, BM, Fitzsimmons, CM, Oakes, BL, Qu, J., Prasad, N. 외. (2019) 리간드 활성화 및 리간드 비활성화 sgRNA로 CRISPR-Cas9 제어. Nat. 공동체., 10, 2127.
27. 페레이라(Ferreira), R., 스크레카스(Skrekas), C., 헤딘(Hedin), A., 산체스(Sanchez), BJ, Siewers, V., Nielsen, J. 그리고 데이비드, F. (2019) dCas9- 기반 규제를 통해 효모의 중앙 탄소 대사에 대한 모델 지원 미세 조정. ACS 신디사이저. Biol., 8, 2457-2463.
28. Su, T., Guo, Q., Zheng, Y., Liang, Q., Wang, Q. 그리고 Qi,Q. (2019) 대장균에서 5-아미노레불린산 생산을 증가시키기 위해 CRISPRi를 사용하여 hemB를 미세 조정합니다. 앞쪽. 미생물., 10, 1731.
29. Zheng, T., Hou, Y., Zhang, P., Zhang, Z., Xu, Y., Zhang, L., Niu, L., Yang, Y., Liang, D., Yi, F . 외. (2017) 단일 가이드 RNA 특이성을 프로파일링하면 불일치에 민감한 핵심 서열이 드러납니다. 과학. Rep., 7, 40638.
30. 장(Jiang), W., 비카르드(Bikard), D., 콕스(Cox), D., 장(Zhang), F. 및 Marraffini, LA (2013) CRISPR-Cas 시스템을 사용한 박테리아 게놈의 RNA 유도 편집. Nat. 생명공학,
31, 233-239. 31. 반 게스텔(van Gestel), J., 호킨스(Hawkins), JS, 토도르(Todor), H. 및 Gross, CA (2021) 불일치-CRISPRi를 위한 가이드 RNA 설계를 위한 전산 파이프라인. STAR 프로토콜, 2, 100521.
32. Hawkins, JS, Silvis, MR, Koo, BM, Peters, JM, Osadnik, H., Jost, M., Hearne, CC, Weissman, JS, Todor, H. Gross, CA (2020) Mismatch-CRISPRi는 대장균(Escherichia coli)과 고초균(Bacillus subtilis)에서 필수 유전자의 공변 발현-적합성 관계를 보여줍니다. 세포 시스템, 11, 523-535.
33. Fortin, J.-P., Tan, J., Gascoigne, KE, Haverty, PM, Forrest, WF, Costa, MR 및 Martin, SE (2019) 다중 유전자 표적화 및 불일치 내성은 게놈 분석을 혼란스럽게 할 수 있습니다. 넓은 풀링된 CRISPR 화면. 게놈생물학, 20, 21.
34. 로젠, 에스. 그리고 Skaletsky, H. (2000) 일반 사용자와 생물학자 프로그래머를 위한 WWW의 Primer3입니다. 방법 몰. Biol., 132, 365-386.
35. Zhou, K., Zhou, L., Lim, Q., Zou, R., 스테파노풀로스, G. 및 Too,HP (2011) 정량적 PCR을 통해 단백질 과발현에 대한 대장균의 전사 반응을 정량화하기 위한 새로운 참조 유전자. BMC 몰. Biol., 12, 18.
36. Livak, KJ 및 Schmittgen, TD (2001) 실시간 정량 PCR 및 2(-Delta Delta C(T)) 방법을 사용한 상대 유전자 발현 데이터 분석. 방법, 25, 402-408.
37. 앤드류스, S. (2010) FastQC: 높은 처리량의 시퀀스 데이터를 위한 품질 관리 도구입니다. v0.11.9 ed.
38. 랭미드,B., 트랩넬,C., 팝,M. 및 Salzberg,SL (2009) 인간 게놈에 대한 짧은 DNA 서열의 초고속 및 메모리 효율적인 정렬. Genome Biol., 10, R25.
39. Danecek, P., Bonfield, JK, Liddle, J., Marshall, J., Ohan, V., Pollard, MO, Whitwham, A., Keane, T., McCarthy, SA, Davies, RM 외. (2021) SAMtools 및 BCFtools의 12년. 기가사이언스, 10, giab008.
40. Trapnell, C., Williams, BA, Pertea, G., Mortazavi, A., Kwan, G., van Baren, MJ, Salzberg, SL, Wold, BJ 및 Pachter, L. (2010) RNA-Seq에 의한 전사체 조립 및 정량화는 세포 분화 중 주석이 없는 전사체 및 이소형 전환을 나타냅니다. Nat. 생명공학, 28, 511-515.
41. Trapnell, C., Hendrickson, DG, Sauvageau, M., Goff, L., Rinn, JL 및 Pachter, L. (2013) RNA-seq을 사용한 전사체 분해에서 유전자 조절의 차등 분석. Nat. 생명공학, 31, 46-53.
42. Lee, ME, Aswani, A., Han, AS, Tomlin, CJ 및 Dueber, JE (2013) 고처리량 분석이 없는 경우 다중 효소 경로의 발현 수준 최적화. Nucleic Acids Res., 41, 10668-10678.
43. Hsu, PD, Scott, DA, Weinstein, JA, Ran, FA, Konermann, S., Agarwala, V., Li, Y., Fine, EJ, Wu, X., Shalem, O. 외. (2013) RNA 유도 Cas9 뉴클레아제의 DNA 표적화 특이성. Nat. 생명공학, 31, 827-832.
44. Nishimasu,H., Ran,F., Hsu,P., Konermann,S., Shehata,S., Dohmae,N., Ishitani,R., Zhang,F. 그리고 누레키,O. (2014) 가이드 RNA 및 표적 DNA와 복합체를 이루는 Cas9의 결정 구조. 세포, 156, 935-949.
45. Fu,Y., Rocha,PP, Luo,VM, Raviram,R., Deng,Y., Mazzoni,EO 및 Skok,JA (2016) CRISPR-dCas9 및 sgRNA 스캐폴드를 사용하면 위성 시퀀스의 이중 색상 실시간 이미징이 가능합니다. 반복적으로 강화된 개별 유전자좌. Nat. Commun., 7, 11707.
46. Khosravi,S., Schindele,P., Gladilin,E., Dunemann,F., Rutten,T., Puchta,H. 그리고 Houben, A. (2020) 압타머의 적용으로 식물 텔로미어의 CRISPR 기반 라이브 이미징이 향상됩니다. 앞쪽. 식물 과학, 11, 1254.
47. Nielsen, AA 및 Voigt, CA (2014) 호스트 규제 네트워크와 인터페이스하는 다중 입력 CRISPR/Cas 유전자 회로. 몰. 시스템. Biol., 10, 763.
48. Lee, YJ, Hoynes-O'Connor, A., Leong, MC 및 Moon, TS (2016) 44, 2462-2473을 사용한 박테리아 유전자 발현의 프로그래밍 가능한 제어.
49. Vigouroux,A., Oldewurtel,E., Cui,L., Bikard,D. 및 반 티펠렌(van Teeffelen), S. (2018) 전사를 차단하는 dCas9의 능력을 조정하면 박테리아 유전자를 강력하고 소음 없이 녹다운할 수 있습니다. 몰. 시스템. Biol., 14, e7899.
50. 장,Y., 샹,X., 라이,S., 장,G., 리앙,Y. 그리고 갔다. (2012) 코리네박테리움 글루타미쿰의 유도물질 흡수를 촉진하여 아라비노스 유도 발현 시스템의 개발 및 적용. 신청 환경. 미생물., 78, 5831-5838.
51. 톰슨, MG, Sedaghatian, N., Barajas, JF, Wehrs, M., Bailey, CB, Kaplan, N., Hillson, NJ, Mukhopadhyay, A. 및 Keasling, JD (2018) pSC101 기원에서 카피수를 증가시키는 새로운 돌연변이의 분리 및 특성화. Sci Rep-UK, 8, 1590. 52. Fricke, PM, Link, T., Gatgens, J., Sonntag, C., Otto, M., Bott, M. 그리고 폴렌, T. (2020) 아세트산 박테리아인 글루코노박터 옥시단스에 대한 조정 가능한 L-아라비노스 유도 발현 플라스미드. 신청 미생물. 생명공학, 104, 9267-9282.
53. Nguyen,TT, Nguyen, NH, Kim, Y., Kim, JR 및 Park, S. (2021) 슈도모나스 데니트리피칸스(Pseudomonas denitrificans)에서 3-히드록시프로피온 탈수소효소의 유도성 프로모터 시스템의 생체 내 특성 분석. 생명공학 Bioproc E, 26, 612-620.
54. 맥카티, NS, 그레이엄, AE, 스투데나, L. 그리고 Ledesma-Amaro,R. (2020) 유전자 편집 및 전사 조절을 위한 다중화된 CRISPR 기술. Nat. Commun., 11, 1281.
55. 얀,Q. 및 Fong,SS (2017) 대장균에서 UP 요소 서열과 결합된 구성적 프로모터를 사용하여 시험관 내 전사 결합 효과 및 노이즈에 대한 연구. J. Biol. 영어, 11, 33.
56. 서승우, 양JS, 김I., 양J., 민, 비, 김S. 및 Jung, GY (2013) 원핵생물 번역 효율을 제어하기 위한 mRNA 번역 개시 영역의 예측 설계. 메타탭. 영어, 15, 67–74. 57. Kappel, K., Jarmoskaite, I., Vaidyanathan, PP, Greenleaf, WJ, Herschlag, D. 그리고 다스, R. (2019) RNA-단백질 결합 친화도 예측에 대한 블라인드 테스트. 진행 Natl. Acad. 과학. 미국, 116, 8336-8341.
58. 주커, 엠. (2003) 핵산 접힘 및 혼성화 예측을 위한 Mfold 웹 서버. Nucleic Acids Res., 31, 3406-3415.
59. Xiong, B., Zhu, Y., Tian, D., Jiang, S., Fan, X., Ma, Q., Wu, H. 그리고 Xie,X. (2021) 대장균에서 l-트립토판의 효율적인 생산을 위한 중앙 탄소 대사의 플럭스 재분배. 생명공학. Bioeng., 118, 1393-1404.
60. 야오, R., 리, J., 펑, L., 장, X. 그리고 Hu, H. (2019) (13)C 글리세롤에서 향상된 아세톨 생산을 위한 대장균의 대사 플럭스 분석 기반 대사 공학. 생명공학. 바이오연료, 12, 29.
61. 듀란, 엔. 및 Menck,CF (2001) Chromobacterium violaceum: 약리학적 및 산업적 관점에 대한 검토. 치명타 Rev. Microbiol., 27, 201-222.
62. Balibar, CJ 및 Walsh, CT (2006) Chromobacterium violaceum의 VioA-E 효소에 의한 L-트립토판의 violacein의 시험관 내 생합성. 생화학, 45, 15444-15457.
63. 권다, 석, JY, 정기, 이재우 (2021) 바이오아세인 생산을 위한 바이오센서 보조 적응 실험실 진화. 국제 J.Mol. 과학, 22, 6594.
64. 산체스, C., 브라나, AF, 멘데스, C. 및 Salas, JA (2006) 비올라세인 생합성 경로 및 인돌로카바졸 생합성과의 관계 재평가. 화학. 바이오. 화학., 7, 1231-1240.
65. Jones, JA, Vernacchio, VR, Lachance, DM, Lebovich, M., Fu, L., Shirke, AN, Schultz, VL, Cress, B., Linhardt, RJ 및 Koffas, MA (2015) ePathOptimize: 대사 경로의 전사 균형을 위한 조합적 접근법. 과학. Rep., 5, 11301.
66. 장, Y., 첸, H., 장, Y., 인, H., 조우, C. 그리고 왕, Y. (2021) 대장균에서 바이올라신의 효율적인 생산성을 위한 생합성 유전자 클러스터의 직접 RBS 엔지니어링. 미생물. 셀 팩트., 20, 38.
67. Hunter, WN (2007) 이소프레노이드 전구체 생합성의 비메발로네이트 경로. J. Biol. 화학., 282, 21573-21577.
68. 로머, M. (1999) 박테리아, 조류 및 고등 식물에서 이소프레노이드 생합성을 위한 메발로네이트 독립적 경로의 발견. Nat. 찌르다. Rep., 16, 565-574.
69. 뮐러,L., 카리스-베이라트,C., 로우,G. 및 Bohm,V. (2016) 심혈관 질환 예방에 있어서 리코펜과 그 항산화 역할 – 비판적 검토. 치명타 식품 과학 목사. Nutr., 56, 1868-1879.
70. Miura, Y., Kondo, K., Saito, T., Shimada, H., Fraser, PD 및 Misawa, N. (1998) 식품 효모 Candida utilis에서 카로티노이드 리코펜, 베타카로틴 및 아스타잔틴 생산. 신청 환경. 미생물., 64, 1226-1229.
71. Goodall,ECA, Robinson,A., Johnston,IG, Jabbari,S., Turner,KA, Cunningham,AF, Lund,PA, Cole,JA 및 Henderson,IR (2018) Escherichia coli K의 필수 게놈 {2}}. Mbio, 9, e02096-17.
72. Baba,T., Ara,T., Hasegawa,M., Takai,Y., Okumura,Y., Baba,M., Datsenko,KA, Tomita,M., Wanner,BL 및 Mori,H. (2006) Escherichia coli K-12 인프레임, 단일 유전자 녹아웃 돌연변이의 구축: Keio 컬렉션. 몰. 시스템. Biol., 2, 2006.0008.
73. 버트람, R. 그리고 힐렌, W. (2008) 원핵생물 유전자 조절 및 발현에 Tet 억제인자의 적용. 미생물. 생명공학, 1, 2-16.