FOXO는 항균 펩타이드의 발현을 조절하고 새우 항균 면역에서 혈액 세포의 식균 작용을 촉진합니다
Aug 31, 2023
추상적인
무척추동물은 병원성 감염에 저항하기 위해 체액성 및 세포성 면역을 포함한 선천성 면역에 의존합니다. 이전 연구에서는 포크헤드 박스 전사 인자 O(FOXO)가 포유류의 점막 면역 반응과 무척추동물의 장 체액 면역 조절에 참여하는 것으로 나타났습니다. 그러나 FOXO가 무척추동물의 전신 및 세포 면역 조절에 관여하는지 여부는 아직 알려지지 않았습니다. 현재 연구에서 우리는 새우(Marsupenaeus japonicus)에서 FOXO를 확인하고 이것이 일반 새우에서는 상대적으로 기초 수준으로 발현되었지만 Vibrio anguillarum에 감염된 새우에서는 상당히 상향 조절되었음을 발견했습니다. FOXO는 새우의 항균 펩타이드(AMP) 발현을 위한 면역 결핍(IMD) 경로의 전사 인자인 Relish의 발현을 촉진함으로써 혈림프 및 장내 미생물 항상성을 유지하는 데 중요한 역할을 했습니다. 우리는 또한 병원체 감염이 FOXO를 활성화시키고 세린/트레오닌 키나제 AKT 활성을 감소시킴으로써 FOXO의 핵 전위를 유도한다는 것을 발견했습니다. 핵에서 활성화된 FOXO는 박테리아 감염에 대한 표적 Amp 및 Relish 유전자의 발현을 직접 조절했습니다. 또한, FOXO는 식균 수용체 제거 수용체 C(Src)의 발현을 상향 조절하여 혈구의 식균 작용을 촉진하고, 리소좀으로의 식세포 이동과 관련된 두 개의 작은 GTPase인 Rab5 및 Rab7을 촉진하여 세포 면역에 관여하는 것으로 확인되었습니다. 세포질에서. 종합적으로 말하자면, 우리의 결과는 FOXO가 일반 새우의 IMD 경로를 활성화하고 직간접적으로 AMP 발현을 촉진하고 박테리아에 감염된 새우에서 병원체에 대한 혈구의 식균 작용을 강화함으로써 혈림프와 장내 미생물의 항상성에 영향을 미친다는 것을 나타냅니다. 이 연구는 무척추동물의 점막(국소) 및 전신 항균 면역에서 FOXO의 다양한 기능을 밝혀냈습니다.
cistanche 보충 혜택 - 면역 체계를 강화하는 방법
Cistanche Enhance Immunity 제품을 보려면 여기를 클릭하십시오.
【추가 요청】 이메일:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
소개
포크헤드 박스 전사 인자 O 계열 단백질(FOXO)은 세포 주기 조절, 손상된 DNA 복구, 항암 면역 및 수명 조절을 포함하여 유기체의 다양한 중요한 생물학적 과정에 관여합니다[1,2]. 포유류에는 네 가지 FOXO 단백질(FOXO1, FOXO3, FOXO4 및 FOXO6)이 있습니다. 그러나 무척추동물은 Caenorhabditis elegans에서 Daf-16라고도 알려진 단 하나의 FOXO를 가지고 있습니다[3]. FOXO의 전사 활성은 인산화, 아세틸화, 메틸화 및 유비퀴틴화와 같은 여러 종류의 번역 후 변형에 의해 조절됩니다. 이러한 변형은 FOXO 핵 전좌 또는 핵으로부터의 탈출, 그리고 FOXO 활성을 촉진 또는 감소시키고 다양한 생물학적 기능을 중재할 수 있는 보조억제인자 및 보조활성인자와의 상호작용에 영향을 미칩니다[5,6]. 활성화된 후 FOXO는 다양한 표적 유전자의 전사를 조절하여 많은 생리학적 기능에 참여합니다[7]. FOXO는 성장 인자, 사이토카인, 호르몬을 포함한 다양한 세포외 자극에 의해 활성화됩니다. 인슐린 또는 인슐린 유사 성장 인자 1(IGF-1)과 같은 성장 신호는 인슐린 경로의 수용체와 상호작용하고 포스파티딜이노시톨 3-키나제(PI3K) 신호를 활성화하여 FOXO의 인산화를 유도합니다. 세린/트레오닌 키나제, 단백질 키나제 B(AKT) [9]. 인산화된 FOXO는 핵에서 세포질로 이동하거나 세포질에서 핵으로의 이동을 방지하여 유비퀴틴화되어 프로테아좀에 의해 분해됩니다[10]. 대조적으로, 외부 성장 신호가 없으면 PI3K-AKT 신호 전달 경로는 비활성화되고 인산화되지 않은 FOXO는 핵으로 이동하여 표적 유전자 전사를 촉진합니다[11]. FOXO는 또한 무척추동물의 항박테리아 및 항바이러스 선천 면역 반응에도 참여합니다[12,13]. 초파리의 노화된 장에서 FOXO의 만성 활성화는 펩티도글리칸 인식 단백질 SC2(면역 결핍(IMD) 경로의 음성 조절인자)의 발현을 억제하고 장의 면역 항상성을 파괴합니다[14]. FOXO는 기아 스트레스에 반응하여 감염되지 않은 초파리의 상피 조직에서 항균 펩타이드(AMP) 유전자를 직접 조절하며, 이는 병원체 반응 선천 면역 경로와 무관합니다[15]. 그러나 병원체 감염은 장세포 FOXO가 Drosophila 내장의 세포질에서 핵으로 직접 들어가도록 유도할 수도 있습니다[12]. AMP의 FOXO 의존적 조절은 포유동물의 상피 조직에서도 발생하는데, 이는 이것이 동물에서도 진화적으로 보존된다는 것을 시사합니다[16]. 여러 연구에 따르면 FOXO는 점막 면역 반응에서 병원균이나 사이토카인 자극에 의해 활성화되는 것으로 나타났습니다. 핵으로의 전이와 표적 유전자의 프로모터와의 결합은 미토겐 활성화 단백질(MAP) 키나제 경로에 의해 자극되고 PI3K/AKT 경로에 의해 억제됩니다. FOXO의 표적 유전자에는 전염증성 신호 분자, 접착 분자 및 케모카인 수용체가 포함됩니다 [17]. FOXO가 병원체에 대한 전신 면역 반응에 관여하는지 여부는 아직 불분명합니다. 병원체에 대한 AMP의 발현을 촉진하는 것은 무척추동물의 체액 선천 면역의 중요한 메커니즘입니다[18]. 초파리 선천성 면역에서 Toll 및 IMD 경로는 AMP 발현 조절에 관여하며 AMP는 침입한 병원체를 제거하는 데 중요한 역할을 합니다[19-21]. 곤충 면역과 유사하게 Toll, IMD 및 Janus 키나제(JAK)/신호 변환기 및 전사 활성화제(STAT) 경로는 갑각류의 AMP 발현 조절에 관여합니다[22,23]. FOXO가 갑각류의 병원체 감염에 대해 Toll, IMD 및 JAK/STAT 경로와 독립적으로 AMP의 발현을 조절할 수 있는지 여부에 대한 설명이 필요합니다. 체액성 면역 외에도 무척추동물은 병원체 감염에 대해 선천성 면역 기능을 수행하기 위해 세포성 면역에도 의존합니다. 혈구에 의한 식균 작용은 병원체 감염에 대한 세포 면역의 중요한 메커니즘 중 하나입니다 [24]. 이전 연구에서는 자연살해(NK) 세포 발달에 FOXO1-매개 자가포식이 필요하다는 사실이 밝혀졌습니다[25]. 더욱이, FOXO는 호중구에 의한 세균성 식균 작용을 촉진하는데 관여합니다 [26]. 갑각류에는 NK 세포나 호중구와 같은 특화된 면역 세포가 없지만 새우 혈구는 식균 작용을 통해 병원성 박테리아 감염에 대해 전신 선천 면역을 발휘할 수 있습니다 [27]. 그러나 FOXO가 새우의 혈구 세포의 병원체 식균 작용에 참여하는지 여부는 불분명합니다. 새우 양식업은 세계에서 가장 빠르게 성장하는 동물성 단백질 생산 산업 중 하나이며 전 세계적으로 증가하는 동물성 단백질 수요를 충족시키는 데 크게 기여해 왔습니다. 현재 전 세계 새우 생산량은 약 488만 톤이며 그 가치는 약 390억 달러에 달합니다[28]. 그러나 많은 수의 동물을 함께 사육하는 것은 상당한 동물 스트레스를 초래하고, 이로 인해 박테리아, 바이러스 등 병원체의 증식과 임상질병이 촉진되어 산업계에 큰 경제적 손실을 초래하게 된다[29]. 새우 면역 메커니즘에 대한 연구는 질병 예방 및 통제를 위한 새로운 전략을 제공할 수 있습니다[30]. 본 연구에서는 구루마새우(Marsupenaeus japonicus)에서 FOXO를 확인했습니다. Foxo 발현을 녹다운시킨 후 Vibrio anguillarum 챌린지에 이어 박테리아 제거 능력과 새우 생존율이 크게 감소하는 것을 발견했습니다. 추가 연구에 따르면 FOXO는 직접 또는 간접적으로 AMP의 발현을 촉진하고 새우에서 박테리아의 식균 작용을 향상시키는 것으로 나타났습니다. 새우의 병원체 감염에 대한 FOXO 효과의 가능한 메커니즘을 분석했습니다.
cistanche tubeulosa - 면역 체계를 향상시킵니다.
결과
FOXO는 공격받지 않은 새우에서 기본 수준으로 발현되며 V. anguillarum에 감염된 새우에서는 상향 조절됩니다.
M. japonicus의 혈구 전사체 시퀀싱을 통해 Foxo(GenBank 수탁 번호: MW080526)의 전체 길이 cDNA 서열을 얻었습니다. 도메인 비교는 예측된 FOXO 단백질이 FOXO1, FOXO3, FOXO4 및 FOXO6을 포함하는 호모사피엔스 FOXO와 유사하고 유사한 AKT 인산화를 나타내는 Forkhead(FH) 도메인을 가지고 있음을 보여주었습니다(S1A 그림). 계통발생 분석 결과, FOXO는 척추동물과 무척추동물 FOXO의 두 군집으로 나뉘었고, 계통수에서는 새우 FOXO가 무척추동물 가지에 군집되어 있는 것으로 나타났다(S1B Fig). 인간 FOXO와 유사하게[31], 새우 FOXO는 세포외 조절 키나제(ERK) 인산화 변형 부위와 CREB 결합 단백질(CBP) 아세틸화 변형 부위를 가지고 있지만 시르투인 1(SIRT1) 탈아세틸화 변형 부위와 c-JUN N 말단은 없습니다. 키나제(JNK) 인산화 변형 부위(S2 그림). 새우 FOXO를 인식하는 다클론 항체는 대장균에서 발현된 FOXO의 재조합 FH 도메인을 사용하여 제조되었습니다(그림 1A). mRNA 및 단백질 수준에서 FOXO의 조직 분포를 분석한 결과, 테스트된 모든 조직에서 FOXO가 발현되는 것으로 나타났습니다(그림 1B). V. anguillarum에 감염된 새우의 혈구와 내장에서 FOXO 발현의 시간 경과를 qPCR과 웨스턴 블랏을 사용하여 분석했습니다. 결과는 FOXO가 mRNA 수준(그림 1C 및 1D)과 단백질 수준(그림 1E 및 1F)에서 혈구 및 장에서 상향 조절되었음을 보여주었습니다. 이러한 결과는 FOXO가 V. anguillarum 감염에 대한 반응에 관여하고 있음을 시사하고 새우 면역에서 FOXO의 기능을 탐구하도록 촉발했습니다.
FOXO는 건강한 새우의 혈림프와 장내 미생물의 항상성 조절에 참여합니다.
새우의 혈림프 및 장내 미생물 항상성에서 FOXO의 기능을 탐색하기 위해 RNA 간섭을 수행하고 박테리아 부하를 분석했습니다. 결과는 Foxo-RNAi 새우에서 Foxo의 발현이 크게 감소한 것으로 나타났습니다(그림 2A 및 2B). Foxo RNAi의 표적외 효과도 다른 Fox 계열 유전자(Foxk2 및 Foxn3 포함)의 발현을 검출하여 분석했습니다. 결과는 Foxo의 녹다운이 Foxk2 또는 Foxn3의 발현 수준을 감소시키지 않음을 보여주었습니다(S3A-S3C 그림). Western blotting과 형광 면역 세포 화학 분석을 사용하여 우리는 Foxo의 침묵 후 박테리아에 의해 공격을 받은 새우의 장과 혈구에서 FOXO의 세포 내 분포를 추가로 관찰했습니다. 결과는 dsGfp 그룹과 비교하여 새우가 V. anguillarum (S3D–S4E '그림)에 감염된 경우에도 Foxo-RNAi 새우에서 핵의 FOXO 수준이 크게 감소한 것으로 나타났습니다. 위의 모든 결과는 우리의 Foxo RNAi 분석이 혈액 세포와 내장(세포질과 핵 포함)에서 Foxo를 특이적으로 침묵시킬 수 있음을 시사했습니다. 다음으로 우리는 정상적인 조건(박테리아 공격 없음)에서 새우의 Foxo를 녹다운한 후 체액과 장의 박테리아 부하를 분석했습니다. 결과는 Foxo 발현이 성공적으로 억제된 후 혈림프와 장의 박테리아 수가 크게 증가한 것으로 나타났습니다(그림 2C 및 2D). 우리는 박테리아 공격 없이 Foxo-RNAi 새우의 생존율을 추가로 분석한 결과 Foxo-knockdown 새우의 생존율이 대조군에 비해 현저히 감소한 것으로 나타났습니다(그림 2E). 이러한 결과를 더욱 검증하기 위해 항생제를 처리한 Foxo-RNAi 새우의 생존율을 분석한 결과 dsGfp 그룹과 비교하여 무균 새우의 생존율이 크게 감소하지 않은 것으로 나타났습니다(그림 2F). 모든 결과는 FOXO가 정상적인 조건에서 새우의 생체 내 미생물군(혈액 및 장내 미생물군 포함)의 항상성에 역할을 한다는 것을 시사합니다.

cistanche 보충 혜택 - 면역력 증가
FOXO는 건강한 새우에서 Relish 및 Amp 발현을 촉진하여 혈림프 및 장내 미생물 항상성 조절에 참여합니다.
이전 연구에 따르면 건강한 새우에는 순환하는 혈림프에 박테리아 수가 적지만 안정적으로 존재하고, 위장관에 박테리아 수가 일정하기는 하지만 높으며, 핵인자 카파 B(NF)에 의해 조절되는 항균 펩타이드(AMP)와 같은 면역 이펙터가 포함되어 있는 것으로 나타났습니다. -κB) 경로와 이중 산화효소(DUOX) 경로에 의해 조절되는 활성산소종(ROS)은 항상성 혈액림프와 장내 미생물총에서 필수적인 역할을 합니다[32-34]. 정상적인 조건에서 혈림프 및 장내 미생물 항상성 조절에 FOXO가 관여하는 메커니즘을 조사하기 위해 우리는 먼저 정상적인 조건에서 혈액 세포와 장에서 FOXO의 세포 내 분포를 감지했습니다. 결과는 정상적인 조건 하에서 새우 혈구 세포와 장 세포의 핵에서 FOXO의 약한 신호를 보여 주었고(그림 3A 및 3B), 이는 정상적인 조건에서 새우의 생체 내 미생물군에 의해 약간의 FOXO가 활성화되었음을 시사합니다. AMP 발현은 Drosophila 장의 IMD 경로에 의해 조절됩니다[35]. 따라서 우리는 전사 인자인 Relish가 FOXO의 표적 유전자일 수 있다고 가정했습니다. 우리는 Foxo의 녹다운 후 새우 혈구와 내장에서 IMD 경로의 전사 인자인 Relish의 mRNA 발현을 검출했습니다. 결과는 Foxo-knockdown 새우에서 Relish 발현이 크게 감소한 것으로 나타났으며(그림 3C 및 3D), 단백질 수준에서도 유사한 결과가 얻어졌습니다(그림 3E 및 3E'). 결과는 FOXO가 Relish의 발현을 촉진하고 IMD 경로를 활성화할 수 있음을 시사했습니다. FOXO가 IMD 신호 전달을 통해 혈액 림프 및 위장관 항상성에 참여하는지 확인하기 위해 무균 새우를 얻었고(그림 3F) RELISH 활성화 및 AMP 발현이 감지되었습니다. 대조구와 비교하여 장 세포 및 혈구 핵의 FOXO 및 RELISH 양이 크게 감소했습니다(그림 3G 및 3H). 한편, FOXO 및/또는 RELISH에 의해 조절될 수 있는 Crustin(CrusI{15}} ~ 5) 및 항지질다당류 인자(Alf A1, B1, C1, D1 및 E1)를 포함한 AMP의 발현이 세균에서 스크리닝되었습니다. -무료 새우, 결과에 따르면 새우의 혈구와 내장에서 CrusI-3, Alf-B1 및 Alf-C1의 발현이 크게 감소한 것으로 나타났습니다(그림 3I 및 3J). Alf-B1과 Alf C1의 발현이 IMD 경로에 의해 조절된다는 점을 고려하면[36], 이러한 결과는 FOXO가 IMD 경로를 통해 정상 조건에서 혈림프 및 위장관의 항상성 조절에 참여하여 Alf-B1의 발현을 촉진한다는 것을 시사합니다. 앰프.

그림 1. FOXO는 V. anguillarum에 감염된 새우에서 상향조절되었습니다. (A) 대장균에서 FOXO의 FH 도메인의 재조합 발현 및 토끼에서 제조된 FOXO에 대한 다클론 항체를 사용하여 FOXO를 검출하기 위한 웨스턴 블롯팅. 레인 1, Foxo-pGEX4T-1를 포함하는 E. coli의 전체 단백질. 레인 2, IPTG 유도 후 박테리아의 총 단백질. 레인 3, 정제된 재조합 FOXO. 레인 4, 처리되지 않은 새우 장의 FOXO가 웨스턴 블랏을 사용하여 검출되었습니다. M, 단백질 분자 질량 마커. (B) mRNA(상부 패널) 및 단백질(하부 패널) 수준에서 Foxo의 조직 분포는 각각 RT-PCR 및 웨스턴 블롯팅에 의해 검출되었습니다. ACTB는 -actin의 약어입니다. (C, D) 혈구(C)와 내장(D)에서 Foxo의 mRNA 발현 패턴을 내인성 제어 유전자로 -actin 및 Ef{11}}의 기하 평균 발현을 사용하여 qPCR로 분석했습니다. (E, F) 혈구(E)와 내장(F)에서 FOXO의 단백질 발현 패턴을 웨스턴 블랏으로 검출했습니다. 세 번의 반복 실험에 대한 통계 분석 결과가 하단 패널에 표시되었습니다. Western blot의 밴드는 ImageJ 소프트웨어를 사용하여 3개의 독립적인 반복에서 밴드를 스캔하여 디지털화되었습니다. FOXO/-actin의 상대적인 발현 정도는 평균±SD로 표시하였고, 대조새우의 값을 1로 설정하였다. 그림의 오류 막대는 SD(3회 반복)를 나타냅니다.
FOXO는 V. anguillarum 공격에 의해 새우에서 활성화되며 혈림프와 내장의 병원체 제거에 참여합니다.
FOXO는 박테리아 또는 사이토카인 자극에 의해 활성화될 수 있으며 포유류에서 특정 표적 유전자의 발현을 조절하기 위해 핵으로 전위되는 것으로 보고되었습니다[17]. FOXO가 박테리아에 감염된 새우에서 활성화되었는지 여부를 확인하기 위해 웨스턴 블랏을 사용하여 새우 장 내 FOXO의 세포 내 분포를 분석했습니다. 결과는 장 세포의 세포질에 있는 FOXO의 양이 V. anguillarum 공격 후 2시간에서 4시간까지 점차적으로 감소한다는 것을 보여주었습니다(그림 4A). 대조적으로, 장 세포 핵의 FOXO 양은 V. anguillarum 감염 후 크게 증가했습니다 (그림 4B). 전신 면역에서 FOXO의 역할을 분석하기 위해 형광 면역세포화학적 분석을 사용하여 V. 연간 larum 자극 후 2시간 동안 새우의 혈구에서 FOXO의 핵 전위를 관찰했습니다. 우리는 박테리아 공격에 의해 유발된 FOXO의 핵 내 전좌가 크게 증가했지만 PBS에 감염된 새우에서는 뚜렷한 변화가 없음을 발견했습니다(그림 4C 및 4C'). 핵으로 전위된 FOXO가 병원체 제거에 관여하는지 여부를 조사하기 위해 박테리아 공격 6시간 후 Foxo-knockdown 새우의 혈림프와 장의 박테리아 부하를 분석했습니다. 우리는 Foxo를 녹다운한 후 혈림프와 장의 박테리아 부하가 대조군에 비해 크게 증가한다는 것을 발견했습니다(그림 4D). 더욱이 V. anguillarum에 감염된 Foxo-knockdown 새우의 생존율은 대조군에 비해 유의하게 감소하였다(도 4E). 이러한 결과는 FOXO가 장 세포와 혈액 세포에서 활성화되었음을 나타내며, FOXO가 세균 감염에 대한 국소 및 전신 면역 반응에 참여한다는 것을 시사합니다.

그림 2. FOXO는 장(국소) 및 전신 항균 면역 반응에 참여합니다. (A, B) qPCR(A) 및 웨스턴 블롯팅(B)을 사용하여 결정된 새우의 혈구(A) 및 내장(B)에서 Foxo-RNAi의 효율성. 내인성 대조 유전자로서 -actin 및 Ef-1의 기하 평균 발현을 사용한 qPCR 날짜 분석. 오류 막대에는 SD가 표시됩니다. (C) 고체 LB 배양에 의한 Foxo-knockdown 새우의 체액 림프 박테리아 검출(3회 반복); dsGfp 주입이 대조군으로 사용되었습니다. 희석비율은 1:10 이었습니다. (디). 박테리아 공격 없이 Foxo 녹다운 새우와 dsGfp 주입 새우의 체액 및 내장에 있는 박테리아 수. (이자형). 박테리아 공격 없이 Foxo-RNAi 새우의 생존율. dsGfp 주입이 대조군으로 사용되었습니다. (에프). 항생제 처리된 Foxo-RNAi 새우의 생존율. dsGfp 주입이 대조군으로 사용되었습니다. 정상: 항생제 처리를 하지 않은 야생형 새우.

그림 3. 기본량의 FOXO가 혈액 세포 및 장 세포의 핵으로 이동하여 Relish 발현을 촉진하고 이어서 IMD 경로를 활성화하여 정상적인 조건에서 혈림프 및 장내 미생물 항상성을 조절합니다. (A) 정상 새우의 혈구에서 FOXO의 세포내 분포를 검출하기 위해 면역세포화학을 사용했습니다. 스케일 바=20 μm. Cy: 세포질; 누: 핵. (B) 웨스턴 블랏을 사용하여 일반 새우와 V. anguillarum에 감염된 새우의 장 세포에서 FOXO의 세포내 분포를 감지했습니다. (C) 내인성 제어 유전자로서 -actin 및 Ef{4}}의 기하 평균 발현을 사용하여 qPCR에 의해 Foxo를 녹다운한 후 새우의 혈구에서 mRNA 수준의 Relish 발현이 검출되었습니다. (D) Foxo의 녹다운 후 새우 장의 mRNA 수준에서 Relish의 발현은 내인성 제어 유전자로서 -actin 및 Ef-1의 기하 평균 발현을 사용하여 qPCR에 의해 검출되었습니다. (E) RELISH 수준은 Foxo를 녹다운한 후 새우에서 웨스턴 블롯팅을 사용하여 검출되었습니다. (E') ImageJ 소프트웨어를 사용하여 패널 E의 3개 복제를 디지털화했습니다. (F) 항생제 치료 24시간 후 새우의 혈림프와 내장의 박테리아 부하. (G) 핵의 FOXO는 항생제 처리 24시간 후 새우의 혈구와 내장에서 웨스턴 블랏을 사용하여 검출되었습니다. (H) 핵의 RELISH는 항생제 처리 후 24시간에 새우 혈구와 내장에서 웨스턴 블롯팅을 사용하여 검출되었습니다. (I, J) 무균 새우의 혈구(I)와 내장(J)에서 Amps의 발현은 -actin과 Ef-1를 내부 참조 유전자로 사용하여 qPCR에 의해 결정되었습니다. 대조군으로는 일반 새우(H2O 주입)를 사용하였다.
이전 연구에서는 FOXO 전사 활성이 인산화 변형에 의해 조절되며 세린/트레오닌 키나제 AKT가 Forkhead 전사 인자를 인산화하고 불분명한 전위를 억제함으로써 Forkhead 전사 인자의 활성을 조절한다는 것을 나타냈습니다[9,37]. 병원성 세균 감염 후 핵 내 FOXO의 증가가 AKT에 의해 영향을 받는지 조사하기 위해 먼저 새우의 Akt를 녹다운시킨 후 웨스턴 블롯팅을 통해 세포질과 핵 내 FOXO 함량을 검출했습니다. 결과는 V. anguillarum 감염 2시간 후 새우에서 Akt 발현이 녹다운된 후(그림 5A 및 5B) 혈구 및 장 세포의 핵에서 FOXO의 양이 크게 증가한 것으로 나타났습니다(그림 5C 및 5C'). 실험 결과를 확인하기 위해 우리는 또한 Akt의 녹다운 후 새우의 혈구에서 FOXO의 세포 내 분포를 관찰하기 위해 면역 세포 화학 분석을 사용했습니다. 결과는 Akt가 V. anguillarum에 감염되고 2시간 후에 쓰러졌을 때 FOXO가 혈구 세포의 핵에서 유의하게 증가했음을 보여주었습니다(그림 5D 및 5D'). 병원체 감염이 AKT 활성에 영향을 미치는지 알아보기 위해 인간 p-AKT(Ser473) 항체(새우 AKT의 인산화 부위는 Ser486)를 사용하여 병원체 감염 후 AKT의 인산화 변화를 감지했으며 인산화된 AKT 수준이 V. anguillarum 감염 30분 후 새우의 혈구 및 내장(그림 5E 및 5F). 이러한 결과는 병원체 감염이 인산화된 AKT의 수준을 감소시켜 효소 활성을 억제하고 AKT가 FOXO를 인산화하는 능력을 감소시킬 수 있음을 시사합니다. 인산화되지 않은 FOXO는 핵으로 들어가 표적 유전자의 발현을 유도합니다. 그림은 SD를 나타냅니다.

시스탄체 추출물
병원체 감염은 AKT의 활성을 감소시키고 FOXO 핵 전위를 유도합니다
FOXO는 박테리아에 감염된 새우의 항균 펩타이드 발현을 조절하여 침입하는 박테리아에 대한 면역 방어를 발휘합니다.
FOXO가 새우의 박테리아 감염에 대한 반응에 영향을 미치는 메커니즘을 탐색하기 위해 우리는 먼저 FOXO에 의해 조절되는 면역 효과 유전자를 확인했습니다. V. anguillarum 챌린지가 있거나 없는 새우의 혈구 및 내장에서 Foxo를 성공적으로 녹다운시킨 후 CrusI-3, Alf-B1, Alf-C1 및 Alf-E1의 발현 수준은 침묵 새우에서 크게 감소했습니다. 대조군에 속한 사람들과 함께(그림 6A 및 6B). 결과를 추가로 확인하기 위해 Akt의 녹다운 후 4개의 AMP 발현도 감지했습니다. 결과는 4개의 AMP의 발현이 대조군과 비교하여 V. anguil larum 감염 후 6시간에 유의하게 증가한 것으로 나타났습니다(그림 6C 및 6D). 정상 조건(그림 3I 및 3J)에서 상향 조절된 AMP(Alf-B1 및 Alf-C1 포함)와 비교하여(그림 3I 및 3J), V에 감염된 새우에서는 추가 AMP 유전자(CrusI-3, Alf-E1)도 상향 조절되었습니다. anguillarum(그림 6A 및 6B). 우리의 이전 연구에서는 RELISH가 새우에서 Alf-B1 및 Alf-C1의 발현을 촉진하는 것으로 나타났습니다[36]. 이러한 결과는 FOXO가 IMD 신호 경로 방식과 관계없이 CrusI-3 및 Alf-E1과 같은 AMP 발현을 직접 조절할 수 있음을 나타냅니다. 가설을 확인하기 위해 FOXO가 Alf-E1의 프로모터에 결합할 수 있는지 여부를 감지하기 위해 ChIP 분석을 수행했습니다. Alf-E1의 프로모터 서열이 얻어졌고(S4 그림) FOXO 결합 부위가 예측되었습니다(그림 6E). ChIP 결과는 FOXO가 Alf-E1 프로모터에 결합할 수 있음을 보여주었습니다(그림 6F). 이러한 결과는 FOXO가 새우의 AMP 발현을 직접 조절함으로써 항균 면역에도 참여한다는 것을 시사합니다.

그림 4. V. anguillarum이 공격한 새우의 핵으로 FOXO가 이동했습니다. (A, B) 웨스턴 블롯팅(A와 B의 하단 패널)을 사용하여 분석한 박테리아에 감염된 새우 장 세포의 세포질(A)과 핵(B)의 FOXO 분포 패턴입니다. Western blotting 밴드는 ImageJ 소프트웨어를 사용하여 세 번의 반복에서 밴드를 스캔하여 디지털화되었습니다. FOXO/-actin 또는 FOXO/Histone 3의 상대적 발현 수준은 평균±SD로 표시하였고, 대조새우의 값을 1로 설정하였다. (C) V 후 2시간 동안 새우의 혈구에서 FOXO의 핵 전이. 앵귈라룸 감염은 형광 면역세포화학 분석을 사용하여 검출되었습니다. PBS 주입을 대조군으로 사용했습니다. 스케일 바=20 μm. (C') 패널 C의 통계 분석 혈구에서 FOXO와 DAPI 염색 핵의 공동 국소화를 WCIF ImageJ 소프트웨어로 분석했습니다. (D) V. anguillarum 주입 후 Foxo-knockdown 새우의 혈림프와 내장의 박테리아 수; 박테리아 주입 후 새우에 dsGfp 주입을 대조군으로 사용했습니다. (E) V. anguillarum에 감염된 Foxo-RNAi 새우의 생존율. dsGfp 주입이 대조군으로 사용되었습니다.
FOXO는 SRC 발현을 촉진하여 박테리아에 대한 혈액 세포의 식균작용을 촉진합니다.
이전 연구에서는 FOXO가 CXCR2 및 CD11b의 프로모터 영역과 직접 상호작용하여 포유류에서 호중구의 식세포작용을 조절한다고 보고했습니다[26]. FOXO가 새우 항균 면역에서 혈구 식균 작용과 관련이 있는지 테스트하기 위해 우리는 다양한 방법을 사용하여 Foxo와의 간섭 후 식균 속도를 조사했습니다. Foxo를 녹다운한 후 Foxo-knockdown 그룹의 식세포 속도와 식세포 지수는 대조군(dsGfp)에 비해 현저히 낮았습니다(그림 7A 및 7A'). 우리는 또한 Foxo의 침묵 후 혈구의 식세포 속도를 정량화하기 위해 유세포 분석을 사용했습니다. 결과는 Foxo-RNAi 그룹의 파지 세포증식 속도도 dsGfp 그룹과 비교하여 크게 감소했음을 보여주었습니다(그림 7B 및 7B'). 이러한 결과를 추가로 검증하기 위해 Akt의 녹다운 후 식세포 속도도 조사했습니다. 그 결과, 대조군에 비해 식세포작용 속도와 식세포지수가 유의하게 증가한 것으로 나타났다(도 7C 및 도 7C'). 이러한 결과는 FOXO가 새우에서 혈구의 식균작용을 촉진한다는 것을 시사합니다. FOXO가 새우의 혈구 식균 작용을 어떻게 향상시키는 지 알아보기 위해 이전에 보고된 새우의 식균 작용과 관련된 유전자의 발현을 감지했습니다. 스캐빈저 수용체 클래스 B(SRB) 및 클래스 C(SRC)는 혈구 식세포작용에 관여하는 것으로 보고되었습니다[38,39]. 우리는 Srb가 아닌 Src의 mRNA 발현 수준이 hemocytes와 내장에서 Foxo의 침묵 후에 크게 감소한 반면 (그림 7D 및 7E), 새우에서 Akt의 녹다운 후에 Src의 발현이 크게 증가한 것을 발견했습니다 (그림 7F). 단백질 수준에서도 유사한 결과가 얻어졌습니다(그림 7G 및 7G'). 이러한 결과는 FOXO가 SRC 발현을 촉진함으로써 새우에서 병원균의 혈구 식균 작용을 촉진한다는 것을 시사합니다.
FOXO는 새우의 식균 작용 동안 RAB5 및 RAB7의 발현을 촉진합니다
이전 연구에서는 작은 GTPase인 RAB5 및 RAB7이 새로 세포내이입된 소포를 초기 및 후기 엔도솜으로 수송하는 주요 조절자임을 보여주었습니다[40]. RAB5는 초기 융합 사건의 핵심 조절자이며 초기 엔도솜의 마커입니다[41,42]. RAB7은 후기 포식체-리소좀 융합에 필요하며 후기 엔도솜의 마커입니다[43]. RAB5와 RAB7이 새우의 병원체 제거에 관여하는지 여부를 조사하기 위해 먼저 Rab5와 Rab7의 발현 패턴을 분석한 결과 두 개의 작은 GTPase가 박테리아에 감염된 새우에서 상향 조절된다는 사실을 발견했습니다(S5A-S5D 그림). 우리는 박테리아 감염 후 Rab5-RNAi 및 Rab7-RNAi 새우의 생존율을 추가로 분석한 결과 Rab5 및 Rab7 녹다운 새우의 생존율이 대조군에 비해 현저히 감소한 것으로 나타났습니다( S5E 및 S5F 그림). 이러한 결과는 RAB5와 RAB7이 박테리아 병원체에 대한 저항성에 중요한 기능을 한다는 것을 시사합니다. RAB5와 RAB7이 FOXO 매개 식세포 작용에 관여하는지 알아보기 위해 새우에서 Foxo 발현을 방해한 후 Rab5와 Rab7의 mRNA 발현 수준을 조사했습니다. 결과는 Rab5와 Rab7의 발현 수준이 혈액 세포와 장에서 크게 감소한 것으로 나타났습니다 (그림 8A 및 S6A). Rab5와 Rab7의 발현은 새우에서 Akt가 녹다운된 후에 크게 증가했습니다(그림 8B). 위 결과를 추가로 확인하기 위해 Foxo 또는 Akt 녹다운 새우에서 RAB5 및 RAB7의 단백질 수준도 검출되었습니다. dsGfp 주입 그룹과 비교하여 RAB5 및 RAB7 수준은 Foxo-knockdown 새우의 혈액 세포와 내장에서 크게 감소했지만 V. anguillarum에 의한 자극 후 2시간에 Akt-knockdown 새우에서는 크게 증가했습니다(그림 8C-8D', S6B). 및 S6B'). 이러한 결과는 RAB5와 RAB7이 새우에서 FOXO 매개 파지 세포증식에 참여한다는 것을 시사합니다. 우리는 RAB5와 RAB7이 새우 혈구에서 V. anguillarum과 함께 공존한다는 것을 추가로 발견했습니다 (그림 9). 종합하면, 결과는 RAB5와 RAB7이 새우의 FOXO 매개 식세포작용에 관여한다는 것을 시사합니다.

그림 5. 병원체 감염은 AKT 활성을 감소시켰고, 이는 새우의 혈구와 장 세포에서 FOXO 핵 전위를 촉진했습니다. (A, B) 내인성 제어 유전자(A) 및 웨스턴 블랏팅(B)으로서 -actin 및 Ef{3}}의 기하 평균 발현을 사용하여 qPCR에 의해 결정된 새우의 혈구 및 장에서 Akt-RNAi의 효율성. (C) Akt-knockdown 새우의 세포질과 장핵 내 FOXO의 양을 Western blotting으로 분석하였다. dsGfp가 컨트롤로 사용되었습니다. (C') 패널(C)의 통계 분석. ImageJ 소프트웨어는 3회 반복 사진을 스캔하여 밴드를 디지털화하는 데 사용되었습니다. (D) Akt-knockdown 새우의 혈구에서 FOXO의 핵 전좌는 형광 면역세포화학적 분석을 사용하여 V. anguillarum 챌린지 2시간 후에 검출되었습니다. dsGfp가 컨트롤로 사용되었습니다. 스케일 바=20 μm. (D') (D)의 통계적 분석. WCIF ImageJ 소프트웨어를 사용하여 노출 값을 고정한 후 혈구에서 항FOXO(녹색)와 DAPI 염색 핵(파란색)의 형광 강도 비율로 공동 위치를 분석했습니다. (E, F) V. anguillarum이 공격한 새우의 혈구(E) 및 내장(F)에서 인산화된 AKT(p-AKT)의 함량 변화. 하단 패널은 각각 웨스턴 블롯팅 및 통계 분석 밴드를 기반으로 한 (E) 및 (F)의 디지털화된 수치입니다.
시스탄체 차
논의
FOXO는 매우 중요한 전사 인자로서 많은 생리적, 대사적 기능에 참여합니다[44,45]. 본 연구에서는 새우(M. japonicus)에서 FOXO를 동정하였고, 이것이 정상적인 조건에서 AMP 발현을 조절함으로써 혈림프와 장내 미생물의 항상성 조절에 참여한다는 것을 발견했습니다. FOXO는 새우의 박테리아 감염에 의해 활성화되어 핵으로 이동하여 AMP의 발현을 직간접적으로(IMD 경로를 통해) 조절합니다. FOXO는 SRC, 소형 GTPases, RAB5 및 RAB7과 같은 식균 작용 관련 유전자의 발현을 상향 조절하여 병원균에 대한 혈구 식균 작용을 촉진했습니다. 따라서 새우 FOXO는 병원체에 대한 전신 및 국소(장) 면역 반응에서 서로 다른 역할을 합니다(그림 10). 인간 FOXO와 비교하여 새우 FOXO는 상대적으로 보존된 아미노산 서열과 AKT 인산화 부위를 가지고 있습니다. 그러나 새우 FOXO의 두 번째 AKT 인산화 부위는 세린 대신 트레오닌입니다. FOXO의 AKT 인산화는 FOXO의 핵 및 세포질 수송을 제어합니다[9]. 본 연구에서 우리는 AKT가 FOXO의 핵 진입 통제와 관련이 있음을 발견했습니다. V. anguillarum 감염 후 인산화된 AKT의 수준이 현저히 감소했는데, 이는 병원체에 감염된 새우에서 AKT 활성이 감소하여 FOXO의 핵 보유 또는 핵 전위가 증가하고 이후 표적 유전자의 발현을 유도함을 나타냅니다. Relish 및 Amp와 같은 병원체 감염에 저항합니다. 이전 연구에서는 FOXO가 펩티도글리칸 인식 단백질 SC2(IMD 경로의 음성 조절자)의 발현을 억제하여 AMP 발현 경로를 활성화함으로써 초파리 장내 미생물의 항상성에 참여한다는 사실을 발견했습니다[14]. RELISH는 초파리의 저산소증 내성 조절에서 FOXO의 주요 표적 유전자로 보고되었습니다[46]. 다른 동물과 마찬가지로 새우의 위장관에는 상대적으로 높고 일정한 미생물군이 포함되어 있습니다. 새우를 포함한 일부 수생 무척추동물의 혈림프에도 안정적인 양의 박테리아가 존재한다는 증거가 늘어나고 있습니다 [47]. 우리의 이전 연구에서는 C형 렉틴이 AMP의 발현을 유지함으로써 혈림프 미생물군의 항상성 조절에 참여한다는 것을 발견했지만[34], AMP 발현의 조절에 어떤 신호 경로가 관여하는지 알지 못합니다. 여기에서 우리의 결과는 FOXO가 정상적인 조건에서 IMD 신호 전달을 통해 혈림프 및 장내 미생물 항상성의 조절에 관여한다는 것을 시사했습니다. 감염되지 않은 새우의 경우 Foxo의 녹다운으로 인해 Relish의 발현이 크게 감소했으며 세균 감염이 없어도 새우 생존율이 크게 감소했습니다. 우리는 또한 정상적인 새우 세포의 핵에서 소량의 FOXO를 발견했습니다. 따라서 우리는 FOXO가 Relish 발현을 촉진하고 이후 IMD 경로에 의해 AMP 발현을 향상시킴으로써 정상적인 조건에서 혈림프 및 장내 세균총의 항상성 조절에 참여한다고 생각합니다. 이러한 결과는 FOXO가 새우의 혈림프와 위장관의 미생물군 항상성을 촉진하기 위해 국소 및 전신 면역에 참여한다는 것을 시사합니다. 체액성 면역은 역으로 AMP 배터리 생산을 통해 병원체 감염에 대한 저항성에 중요한 역할을 합니다[21,48]. 체액성 반응은 전신 반응으로 혈림프 내로 방출되거나 국소 반응으로 표피 표면이나 위장관강으로 방출되는 AMP의 유도성 합성 및 분비로 구성됩니다. AMP 발현은 주로 초파리의 Toll/Dif 및 IMD/Relish 신호 전달 경로에 의해 조절됩니다[49]. 현재 크러스틴, 항지질다당류 인자(Alfs) 및 페나에이딘을 포함하여 새우에서 여러 종류의 AMP가 확인되었습니다 [50]. 본 연구에서는 FOXO가 CrusI-3, Alf-B1, Alf-C1 및 Alf-E1을 포함한 AMP의 발현을 직접 또는 간접적으로(IMD/Relish 신호를 통해) 조절할 수 있음을 보여주었습니다. 우리는 정상적인 조건에서 새우의 혈구와 내장에서 FOXO의 낮은 활성화가 Foxo의 핵심 표적 유전자인 Relish를 조절하여 생체 내 미생물군의 항상성을 유지할 수 있다고 생각했습니다. 감염 중에 침입한 병원균은 FOXO를 활성화하며, 대부분은 핵으로 이동하여 Relish 외에도 Alf-E1 및 CrusI-3와 같은 일부 AMP를 포함한 더 많은 표적 유전자를 조절합니다. 종합하면, FOXO는 혈림프 및 위장관에서 IMD 신호 전달의 기초 수준 활성화를 통해 건강한 새우의 혈림프 및 장내 미생물 항상성 조절에 참여합니다. 병원체 감염은 AKT 활성을 감소시켜 FOXO를 활성화시키고 전신 면역 및 국소(장) 면역에서 직접 및 간접적으로 AMP 발현을 촉진합니다. 식균 작용은 입자 또는 병원체가 특정 세포막 수용체에 결합하여 유발되는 수용체 매개, 액틴 및 ATP 의존 현상이며, 숙주가 병원체로부터 자신을 보호할 수 있는 중요한 면역 과정을 나타냅니다. RAB5 및 RAB7과 같은 작은 GTPase는 식균작용에서 지속적인 막 리모델링 및 소포 이동에 관여합니다. 우리의 이전 연구에서는 청소부 수용체인 SRB와 SRC가 새우의 수용체로서 혈구 식세포작용에 관여한다고 보고했습니다[38,39]. 본 연구에서 우리는 Foxo의 녹다운 후 Src 발현이 현저하게 감소하고 혈구 식균 작용 속도가 유의하게 감소하여 Src가 FOXO의 표적 유전자이고 FOXO가 병원성 박테리아의 SRC 매개 식균 작용에 관여한다는 것을 발견했습니다. FOXO는 또한 두 개의 작은 GTPase인 RAB5와 RAB7의 발현을 촉진할 수 있습니다. 이러한 작은 GTPase는 초기 및 후기 포식체의 순차적 수송에 관여하며 이를 결정하는 핵심 요소입니다[51]. Phagosome은 세포 주변에서 세포내 영역으로 이동하며, 운반 중에 RAB5가 RAB7로 대체되고, 최종 물품은 분해를 위해 리소좀으로 운반됩니다[52,53]. 우리는 또한 RAB5와 RAB7이 hemocytes의 병원체와 함께 위치할 수 있다는 것을 발견했습니다. 이는 병원체가 리소좀에서 최종적으로 분해되기 전에 초기 및 후기 phagosome을 통과하여 새우의 hemocytes에 의해 식세포화되었음을 나타냅니다. 따라서 FOXO는 혈구의 식균 작용을 촉진하여 세포 면역 반응에 관여합니다. 결론적으로, 우리의 결과는 FOXO가 정상적인 조건에서 미생물군 항상성 조절에 참여할 뿐만 아니라 AMP의 발현과 혈구의 식세포작용을 촉진함으로써 감염된 새우에서 병원성 박테리아의 제거에도 관여한다는 것을 나타냅니다.

그림 6. FOXO는 AMP의 발현을 조절하여 새우에서 항균 역할을 수행합니다. (A, B) 내인성 제어 유전자로서 -actin 및 Ef{3}}의 기하 평균 발현을 사용하여 qPCR에 의해 결정된 Foxo-knockdown 새우의 혈구(A) 및 내장(B)에서 Amps의 발현. 새우에 dsGfp 주입을 대조군으로 사용했습니다. 데이터는 Mann-Whiteny U 테스트를 사용하여 통계적으로 분석되었습니다. (C, D) Akt 녹다운 새우의 혈구(C) 및 내장(D)에서 Amps의 발현을 내인성 제어 유전자로서 -actin 및 Ef-1의 기하 평균 발현을 사용하여 qPCR로 분석했습니다. 새우에 dsGfp 주입을 대조군으로 사용했습니다. 일원 분산 분석(one-way ANOVA)을 사용하여 유의미한 차이를 분석했습니다. (E) Alf-E1 프로모터에서 FOXO의 예상 결합 부위에 대한 개략도. (F) ChIP 및 RT-PCR을 사용하여 프라이머(Alf-E1-F 및 Alf-E1-R, 표 1)를 사용하여 Alf-E1 프로모터 서열에 대한 FOXO 결합을 감지했습니다. RT-PCR은 또한 ChIP를 사용하여 RT-PCR 프라이머(Alf-E1-RT-F 및 Alf-E1-RT-R. 표 1)로 Alf-E1의 인코딩 영역을 증폭하는 데 사용되었습니다. DNA를 주형으로 얻었습니다. 대조군으로는 IgG 항체를 사용하였고, 표적 밴드를 확인하기 위해 정상 게놈 DNA 증폭 단편을 사용하였다.

그림 7. FOXO는 SRC 발현을 촉진하여 새우 병원균의 혈구 식균 작용을 향상시킵니다. (A)형광현미경 하에서 형광 면역세포화학적 분석을 사용하여 관찰된 V. anguillarum의 혈구 식균작용. V. anguillarum은 FITC(녹색)로 표지되었고 세포핵은 DAPI(파란색)로 염색되었습니다. 빨간색 화살표는 식세포 적혈구를 나타냅니다. 스케일 바=20 μm. (A') Foxo-knockdown 새우의 식세포 속도와 식세포 지수에 대한 통계적 분석. dsGfp 주입 그룹이 대조군으로 사용되었습니다. 각 실험에서 형광 현미경으로 500개의 혈액 세포를 계수했습니다. 데이터는 스튜던트 t-테스트를 사용하여 통계적으로 분석되었습니다. (B) 유세포 분석을 사용하여 분석된 혈구에 의한 세균 식균작용. IDEAS Application v6.0 소프트웨어를 사용하여 혈구 내 표지된 박테리아의 형광 신호를 기반으로 박테리아가 포함된 식균 혈구(R2)를 비식균 혈구(R3)에서 분리했습니다. (B') 유세포 분석 데이터를 기반으로 한 혈구의 식세포 속도입니다. 각 분석에 대해 3,000개의 혈액 세포를 계산하고 3회 반복을 수행했습니다. dsGfp 그룹이 컨트롤로 사용되었습니다. (C) Akt 녹다운 새우의 V. anguillarum의 혈구 식균작용은 형광 현미경으로 관찰됩니다. 스케일 바=10 μm. (C') 패널(C)의 데이터를 기반으로 한 식세포 속도 및 식세포 지수의 통계 분석. (D) 내인성 제어 유전자로서 -actin 및 Ef{11}}의 기하 평균 발현을 사용하여 qPCR로 분석한 Foxo 녹다운 새우의 혈구에서 Srb 및 Src의 mRNA 발현 수준. dsGfp 주입이 대조군으로 사용되었습니다. (E) Foxo-RNAi 새우 장에서 Srb 및 Src의 mRNA 발현은 내인성 제어 유전자로서 -actin 및 Ef-1의 기하 평균 발현을 사용하여 qPCR로 분석되었습니다. (F) 내인성 제어 유전자로서 -actin 및 Ef-1의 기하 평균 발현을 사용하여 qPCR로 분석한 Akt-RNAi 새우의 혈구에서 Src의 mRNA 발현. (G) Western blotting을 사용하여 분석한 Foxo-RNAi 또는 Akt-RNAi 새우의 혈구에서 SRC의 단백질 수준. dsGfp 주입이 대조군으로 사용되었습니다. (G') 패널(G)의 3회 반복 데이터를 기반으로 한 통계 분석입니다.
재료 및 방법
윤리성명서
모든 동물 실험은 중국 국가 지침(GB 14922.2-2011 및 GB 14925-2010)에 따라 수행되었습니다. 본 연구에서 항체 제조를 위한 토끼 실험은 산둥대학교 생명과학대학 동물보호복지위원회(SYDWLL-2021-54)에서 승인한 프로토콜에 따라 수행되었습니다. 우리 연구에서는 더 넓은 지역 사회에서 자주 소비되는 제한된 수의 일반 새우를 사용했기 때문에 우리 연구에서 새우 사용에 관한 규정에 따른 승인은 필요하지 않았습니다.
동물
무게가 약 6~10g인 건강한 새우(Marsupenaeus japonicus)를 중국 산둥성 칭다오 수산물 시장에서 구입했습니다. 실험 전, 새우는 새로운 환경에 적응하기 위해 23~25˚C의 폭기된 해수를 사용하는 새우 양식 시스템에서 최소 1일 동안 양식되었습니다.

그림 8. RAB5와 RAB7은 FOXO 매개 새우 혈구 식균작용에 관여합니다. (A, B) qPCR을 사용하여 박테리아 감염 유무에 관계없이 Foxo-knockdown 새우(A) 및 Akt-knockdown 새우(B)의 혈구에서 Rab5 및 Rab7의 mRNA 발현 수준을 분석했습니다. qPCR은 -actin 및 Ef-1의 기하 평균 발현을 내인성 제어 유전자로 사용했습니다. (C) V. anguillarum 공격 2시간 후 Foxo-knockdown 새우의 혈구에서 RAB5 및 RAB7의 단백질 수준은 웨스턴 블롯팅을 사용하여 결정되었습니다. (C') 패널(C)의 3개 복제 데이터를 기반으로 한 통계 분석입니다. (D) V. anguillarum 공격 2시간 후 Akt-knockdown 새우의 혈구에서 RAB5 및 RAB7의 단백질 수준을 웨스턴 블랏팅을 사용하여 결정했습니다. (D') 패널(D)의 3개 반복 데이터를 기반으로 한 통계 분석입니다.
생물정보학 분석
Foxo의 전체 길이 cDNA 서열은 M. japonicus(BGI, Shenzhen, China)의 혈구 및 장내 전사본 시퀀싱을 통해 얻었습니다. 서열 확인을 위해 한 쌍의 프라이머(Foxo-EX-F 및 Foxo-EX-R; 표 1)를 사용하여 Foxo의 오픈 리딩 프레임(ORF)을 증폭시켰습니다. 해당 cDNA는 ExPASy-Translation 도구(http://cn.expasy.org/)를 사용하여 추론된 단백질 서열을 얻기 위해 개념적으로 번역되었습니다. 유사성 분석은 BLAST(http://blast.ncbi.nlm.nih.gov/Blast.cgi/)를 이용하여 수행하였고, 도메인 아키텍처 예측은 SMART(http://smart.emblheidelberg.de)를 이용하여 수행하였다. 다양한 종의 FOXO 계통수는 MEGA 6.0 프로그램을 사용하여 구성되었습니다[54].
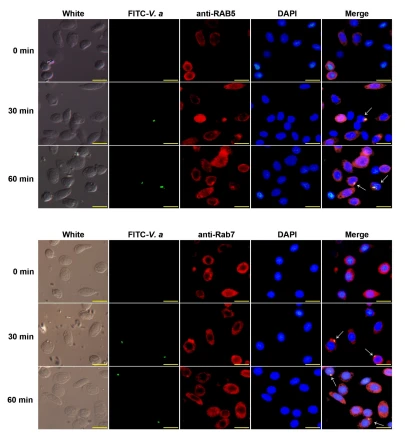
그림 9. RAB5와 RAB7은 V. anguillarum과 함께 위치합니다. FITC 라벨이 붙은 -V와 RAB5 및 RAB7의 공동 위치화. 새우 혈구의 앵귈라럼(형광 면역세포화학 분석법을 사용하여 분석). 박테리아를 FITC(녹색)로 라벨링하고 새우에 주입했습니다. 박테리아 주입 후 30분 및 1시간 후에 5마리의 새우로부터 혈액 세포를 수집하고 항-RAB5 또는 항 RAB7 항체와 함께 배양했습니다. 2차 항체는 항토끼 IgG Alexa-546(빨간색)였습니다. 핵은 DAPI(파란색)로 염색되었습니다. 혈구의 공동 위치화는 흰색 화살표로 표시됩니다. 스케일 바=10 μm.

그림 10. 새우의 국소 및 전신 선천 면역에 대한 FOXO 관련의 도식적 표현. (A) 감염되지 않은 조건에서 FOXO는 Relish와 그에 따른 AMP 발현을 촉진하여 혈림프와 장내 미생물의 항상성을 유지합니다. (B) 감염된 상태에서는 병원체 감염으로 인해 AKT 인산화가 감소하여 핵의 FOXO 함량이 증가합니다. FOXO는 Relish와 AMP의 발현을 직접적으로 촉진하여 침입성 병원균을 제거합니다. 반면, FOXO는 SRC 매개 식균 작용 경로를 통해 병원체의 식균 작용을 촉진합니다.
박테리아 챌린지 및 샘플 수집
Vibrio anguillarum(ATCC 43305)은 산둥대학교 해양대학(중국 웨이하이)에서 입수하여 현재 우리 연구실에 보관되어 있습니다. V. anguillarum을 LB 배지에서 37˚C로 밤새 배양한 후 둘째 날 1:100 접종으로 4시간 동안 재배양하였다. 대수 성장 단계의 박테리아를 4˚C에서 5분 동안 5000 x g에서 원심분리하여 수집하고 인산염 완충 식염수(PBS: 10 mM Na2HPO4, 140 mM NaCl, 2.7 mM KCl 및 1.8 mM KH2PO4, pH 7.4). 새우 공격을 위해 V. anguillarum을 인산염 완충 식염수에 재현탁했습니다. 대략 2×10⁷ 집락 형성 단위(CFU)/새우를 마이크로 주사기를 사용하여 각 새우의 복부에 주입했습니다. 대조군에는 동일한 양의 PBS를 주입하였다. RNA 및 단백질 추출을 위해 적어도 세 마리의 새우로부터 적혈구, 심장, 간췌장, 아가미, 위 및 내장을 수집했습니다. 혈구 수집을 위해 0.8ml의 항응고제 완충액(10% 구연산 나트륨)이 미리 로드된 주사기를 사용하여 복측동에서 혈림프를 추출한 다음 혈구 분리를 위해 700 x g에서 4˚C에서 8분간 신속하게 원심분리했습니다.
RNA 및 단백질 추출, cDNA 합성
TRIzol (ET101, Transgen, Beijing, China)을 사용하여 새우의 혈구와 다른 기관에서 총 RNA를 추출했습니다. RIPA(Radioimmunoprecipitation Assay) 용해 완충액(P0013B, Beyotime, Jiangsu, China)을 사용하여 여러 기관의 단백질을 추출했습니다. 첫 번째 가닥 cDNA 합성은 제조업체의 지침에 따라 cDNA 합성 키트(5x All-in-One RT MasterMix; Applied Biological Materials-abm, Vancouver, Canada)를 사용하여 수행되었습니다.
표 1. 본 연구에 사용된 프라이머의 서열.

마스터믹스; Applied Biological Materials(캐나다 밴쿠버 소재 Abm)에서 제조업체의 지침을 따릅니다.
재조합 발현 및 항체 제조
Foxo의 cDNA 서열은 프라이머 Foxo-EX-F 및 Foxo-EX-R을 사용하여 역전사 중합효소 연쇄반응(RT-PCR)에 의해 증폭되었습니다(표 1). 정제된 PCR 생성물을 제한 효소를 사용하여 분해하고 플라스미드 pGEX-4T-1(GE Healthcare, Piscataway, NJ, USA)에 연결했습니다. 구축된 플라스미드는 Escher ichia coli Rosseta(DE3) 세포로 형질전환되었다. 37˚C에서 1mM 이소프로필- - D-티오 갈락토피라노시드를 사용하여 단백질 발현을 유도했습니다. 재조합 단백질은 제조업체의 지침에 따라 글루타티온(GST) 수지(C600031, BBI, Shanghai, China)를 사용하여 친화성 크로마토그래피를 수행했습니다. FOXO에 대한 토끼 항혈청은 이전에 설명한 방법에 따라 준비되었습니다[55].
웨스턴 블로팅
서로 다른 장기 또는 혈구에서 추출한 단백질을 10% 나트륨 도데실 황산 폴리아크릴아미드 겔 전기영동(SDS-PAGE)을 사용하여 분리했습니다. SDS-PAGE 겔의 단백질을 전달 완충액(25 mM Tris-HCl, 20 mM 글리신, 0.037% mM SDS 및 20% 에탄올)을 사용하여 질산셀룰로오스 막으로 옮겼습니다. Tris 완충 식염수(TBS: 150mM NaCl, 10mM Tris HCl, pH 8.0)에 있는 5% 탈지유 또는 3% 소 혈청 알부민(BSA)에서 실온에서 가볍게 흔들면서 1시간 동안 배양했습니다. 그런 다음 막을 1차 항혈청과 함께 배양했습니다: 1:100 희석의 항-FOXO, 1:25의 항-RAB5, 1:25의 항 Rab7, 1:250의 항-베타 액틴(ACTB)(우리 실험실에서 준비됨) ); 히스톤-3 폴리클로날 항체(A2348, ABclonal, 중국 우한, 1:2500); 항인산화(p)-AKT 다클론 항체(WLP001a, Wanleibio, Shenyang, China, 1:500)를 넣고 밤새 4˚C에서 가볍게 흔들어 줍니다. TBST(TBS에 첨가된 0.1% Tween-20)로 3회 세척한 후, 멤브레인을 2차 항체(ZB2308 ZSGB-Bio, Beijing, China, 1:5,000)와 함께 배양했습니다. ZB2301 ZSGB-Bio, 베이징, 중국, 1:5,000) 부드럽게 흔들면서 실온에서 3시간 동안. 면역반응성 단백질 밴드는 어두운 조건에서 니트로테트라졸륨 블루 클로라이드(A610379, BBI) 및 P-톨루이딘 염(A610072, BBI) 용액을 사용하거나 향상된 화학발광(ECL)을 사용하여 개발되었습니다. -액틴 또는 히스톤-3이 참조로 사용되었습니다.s.
박테리아에 감염된 새우의 조직 분포 및 발현 패턴
혈구, 심장, 아가미, 가래, 위 및 내장에서 Foxo/FOXO의 조직 분포는 프라이머 Foxo-F 및 Foxo-R(표 1)을 사용한 RT-PCR과 항FOXO 항체를 사용한 웨스턴 블롯을 사용하여 분석되었습니다. 각기. PCR 절차는 94˚C에서 3분 동안 초기 배양으로 구성되었습니다. 이어서 94˚C에서 30초, 50˚C에서 30초, 72˚C에서 30초의 35주기가 이어집니다. 그 다음 72˚C에서 10분간 가열합니다. PCR 산물은 아가로스 겔 전기영동(1.5% 아가로스)을 사용하여 분석되었습니다. -actin 유전자(-actin-F 및 -actin-R, 표 1)를 내부 대조군으로 사용했습니다. V. anguillarum에 감염된 새우의 RNA 및 단백질 수준에서 Foxo/FOXO의 시간 경과에 따른 발현 패턴은 열 순환기(qTOWER3, ANALYTIK JENA AG, 독일 예나)에서 정량적 실시간 PCR(qPCR)을 사용하여 분석되었습니다. 각각 서부 블로팅. qPCR 절차는 다음과 같이 구성되었습니다: 95˚C에서 10분; 95˚C에서 10초, 60˚C에서 50초 동안 40사이클; 그런 다음 65˚C에서 95˚C까지 녹는 기간을 갖습니다. Foxo의 발현 프로파일 파일은 정규화를 위해 -actin과 Ef-1의 두 내부 제어 유전자의 기하 평균을 사용하는 2-ΔΔCT 방법[56]을 사용하여 생성되었습니다. qPCR에서 프라이머 쌍의 효율성은 선형 표준 곡선을 생성하기 위해 cDNA 혼합물의 10-배 대수 희석을 사용하는 MIQE 방법[57]에 따라 분석되었습니다.
핵 및 세포질 단백질의 분리
새우로부터 장 조직을 해부하고 PBS로 3회 세척하였다. 단백질 추출은 핵 및 세포질 단백질 추출 키트(R0050, Solarbio, Beijing, China)를 사용하여 제조사의 지시에 따라 수행하였다. 개인차를 없애기 위해 단백질 추출에는 최소 3마리 이상의 새우를 사용하였습니다.
RNA 간섭 분석
유전자 기능을 분석하기 위해 RNA 간섭(RNAi) 분석을 수행했습니다. T7 프로모터 서열을 포함하는 여러 쌍의 프라이머(Foxo-RI-F 및 Foxo-RI-R; Rab5-RI-F 및 Rab5 -RI-R; Rab7-RI- F 및 Rab7 -RI-R; Akt-RI-F 및 Akt-RI-R. 표 1)은 dsRNA 합성을 위한 주형을 증폭하도록 설계되었습니다. T7 RNA 중합효소(EP0111, Thermo Fisher Scientific, Waltham, MA, USA)와 cDNA 템플릿을 사용하여 dsRNA 단편을 합성했습니다. 이중 가닥 녹색 형광 단백질 dsGfp RNA는 dsGfp 합성을 위한 프라이머로 Gfp-RI-F 및 Gfp-RI-R(표 1)을 사용하여 증폭된 대조군 역할을 했습니다. 그런 다음 dsRNA 단편(50 ug/각)을 마이크로 주사기를 사용하여 M. japonicus의 복부 부분에 주입하고 12시간 후에 동일한 용량을 사용하여 두 번째 주입을 수행했습니다. RNA 간섭 효율은 정량적 실시간 역전사 PCR(qRT-PCR, cDNA를 형성하기 위한 RNA의 역전사를 포함하는 qRT-PCR) 또는 두 번째 주입 후 24시간 동안 웨스턴 블롯팅을 사용하여 분석되었습니다. -actin이 내부 참조로 사용되었습니다.
참고자료
1. Calnan DR, Brunet A. FoxO 코드. 종양 유전자. 2008; 27(16):2276–2288. https://doi.org/10.1038/onc.2008.21 PMID: 18391970.
2. Tran H, Brunet A, Grenier JM, Datta SR, Fornace AJ, DiStefano PS 등. Gadd45 단백질을 통해 포크헤드 전사 인자 FOXO3a에 의해 자극된 DNA 복구 경로. 과학. 2002; 296(5567):530–534. https://doi.org/10.1126/science.1068712 PMID: 11964479.
3. Martins R, Lithgow GJ, Link W. FOXO 만세: 노화와 수명 연장에서 FOXO 단백질의 역할을 밝혀냅니다. 노화세포. 2016년; 15(2):196–207. https://doi.org/10.1111/acel.12427 PMID: 26643314.
4. Vogt PK, Jiang H, Aoki M. FOXO 단백질의 삼중층 제어-인산화, 아세틸화 및 유비퀴틴화. 세포주기. 2005년; 4(7):908-913. https://doi.org/10.4161/cc.4.7.1796 PMID: 15917664. 5. Daitoku H, Sakamaki J, Fukamizu A. 아세틸화 및 단백질-단백질 상호작용에 의한 FoxO 전사 인자의 조절. Bba-Mol 세포 해상도. 2011; 1813(11):1954~1960. https://doi.org/10.1016/j. bbamcr.2011.03.001 PMID: 21396404.
6. 왕 Y, Zhou YM, 그레이브스 DT. FOXO 전사 인자: 임상적 중요성과 조절. Biomed 해상도 Int. 2014년; 2014:1–13. https://doi.org/10.1155/2014/925350 PMID: 24864265.
7. 머피 CT, McCarroll SA, Bargmann CI, Fraser A, Kamath RS, Ahringer J 등. 예쁜꼬마선충(Caenorhabditis elegans)의 수명에 영향을 주기 위해 DAF-16의 하위 흐름에 작용하는 유전자. 자연. 2003년; 424(6946):277– 284. https://doi.org/10.1038/nature01789 PMID: 12845331. 8. Sergi C, Shen F, Liu SM. 인슐린/IGF-1R, SIRT1 및 FOXO 경로는 뼈와 골육종에 대한 흥미로운 상호 작용 플랫폼입니다. 전면 내분비놀(로잔). 2019; 10:93~103. https://doi.org/10. 3389/fendo.2019.00093 PMID: 30881341.
9. Brunet A, Bonni A, Zigmond MJ, Lin MZ, Juo P, Hu LS 등. Akt는 포크헤드 전사 인자를 인산화하고 억제함으로써 세포 생존을 촉진합니다. 셀. 1999년; 96(6):857–868. https://doi.org/10.1016/s0092-8674(00)80595-4 PMID: 10102273.
10. Huang H, Regan KM, Wang F, Wang DP, Smith DI, van Deursen JMA 등 Skp2는 유비퀴틴 매개 분해를 통해 종양 억제에서 FOX01을 억제합니다. P Natl Acad Sci USA. 2005년; 102(5):1649–1654. https://doi.org/10.1073/pnas.0406789102 PMID: 15668399.
11. Ogg S, Paradis S, Gottlieb S, Patterson GI, Lee L, Tissenbaum HA 등. 포크 헤드 전사 인자 DAF-16는 C. elegans에서 인슐린 유사 대사 및 수명 신호를 변환합니다. 자연. 1997년; 389(6654):994–999. https://doi.org/10.1038/40194 PMID: 9353126.
12. Fink C, Hoffmann J, Knop M, Li Y, Isermann K, Roeder T. Drosophila의 구강 감염에서 생존하려면 장의 FoxO 신호 전달이 필요합니다. 점막 면역. 2016년; 9(4):927-936. https://doi.org/10.1038/mi. 2015.112 PMID: 26627459.
13. 스펠버그 MJ, 마르 MT. FOXO는 Drosophila의 RNA 간섭을 조절하고 RNA 바이러스 감염으로부터 보호합니다. P Natl Acad Sci USA. 2015; 112(47):14587–14592. https://doi.org/10.1073/pnas. 1517124112 PMID: 26553999.
14. Guo LL, Karpac J, Tran SL, Jasper H. PGRP-SC2는 장내 면역 항상성을 촉진하여 공생균 불균형을 제한하고 수명을 연장합니다. 셀. 2014년; 156(1–2):109–122. https://doi.org/10.1016/j.cell.2013.12. 018 PMID: 24439372.
15. Becker T, Loch G, Beyer M, Zinke I, Aschenbrenner AC, Carrera P 등. 타고난 면역 항상성의 FOXO 의존적 조절. 자연. 2010; 463(7279):369–373. https://doi.org/10.1038/ nature08698 PMID: 20090753.
16. Seiler F, Hellberg J, Lepper PM, Kamyschnikow A, Herr C, Bischoff M 등. FOXO 전사 인자는 호흡기 상피 세포의 선천적 면역 메커니즘을 조절합니다. J Immunol. 2013년; 190(4):1603–1613. https://doi.org/10.4049/jimunol.1200596 PMID: 23315071.
17. 그레이브스 DT, Milovanova TN. 점막 면역 및 FOXO1 전사 인자. 프론트 면역. 2019; 10:2530~2541. https://doi.org/10.3389/fimmu.2019.02530 PMID: 31849924.
18. Bulet P, Stocklin R, Menin L. 항균 펩타이드: 무척추동물에서 척추동물까지. Immunol Rev. 2004; 198:169-184. https://doi.org/10.1111/j.0105-2896.2004.0124.x PMID: 15199962.
19. Buchon N, Silverman N, Cherry S. Drosophila melanogaster의 면역 - 미생물 인식에서 전체 유기체 생리학까지. Nat Rev Immunol. 2014년; 14(12):796–810. https://doi.org/10.1038/nri3763 PMID: 25421701.
20. 호프만 JA, 라이히하르트 JM. 초파리 선천성 면역: 진화론적 관점. Nat Immunol. 2002; 3(2):121–126. https://doi.org/10.1038/ni0202-121 PMID: 11812988.
21. Hultmark D. Drosophila 면역: 경로 및 패턴. Curr Opin Immunol. 2003년; 15(1):12–19. https://doi.org/10.1016/s0952-7915(02)00005-5 PMID: 12495727.
22. 리 FH, 시앙 JH. 중국 새우의 선천면역에 관한 연구의 최근 발전. Dev Comp Immunol. 2013년; 39(1–2):11–26. https://doi.org/10.1016/j.dci.2012.03.016 PMID: 22484214.
23. Sun JJ, Lan JF, Zhao XF, Vasta GR, Wang JX. C형 렉틴의 코일형 코일 도메인을 돔리스 수용체에 결합하면 박테리아 감염에 대한 새우 면역 반응에서 JAK/STAT 경로가 직접 활성화됩니다. PLoS Pathog. 2017; 13(9):e1006626. https://doi.org/10.1371/journal.ppat.1006626 PMID: 28931061.
24. Gordon S. 식세포작용: 면역생물학적 과정. 면역. 2016년; 44(3):463–475. https://doi.org/10.1016/j.immuni.2016.02.026 PMID: 26982354.
25. Wang S, Xia PY, Huang GL, Zhu PP, Liu J, Ye BQ 등. FoxO{1}}매개 자가포식은 NK 세포 발달과 선천 면역에 필요합니다. 냇 커뮤. 2016년; 7:11023~11037. https://doi.org/10.1038/ncomms11023 PMID: 27010363.
26. Dong G, Song L, Tian C, Wang Y, Miao F, Zheng J 등. FOXO1은 박테리아에 의해 유발된 호중구 활동을 조절합니다. 프론트 면역. 2017; 8:1088-1102. https://doi.org/10.3389/fimmu.2017.01088 PMID: 28928749.
27. 왕 XW, 자오 XF, 왕 JX. C형 렉틴은 베타-인테그린과 결합하여 무척추동물의 혈구 식균작용을 촉진합니다. J Biol Chem. 2014년; 289(4):2405-2414. https://doi.org/10.1074/jbc.M113.528885 PMID: 24324258.
28. Norouzitallab P, Baruah K, Vanrompay D, Bossier P. 새우에게 감염과 싸우기 위한 자기 방어 방법을 가르칩니다. 동향 생명공학. 2019; 37(1):16–19. https://doi.org/10.1016/j.tibtech.2018.05.007 PMID: 29914649.
29. 플레겔 TW. 아시아 지역 새우 병원균의 역사적 출현, 영향 및 현재 상태. J 인버터 Pathol. 2012; 110(2):166–173. https://doi.org/10.1016/j.jip.2012.03.004 PMID: 22429834.
30. 왕 PH, 황 TZ, 장 XB, JG. 새우의 항바이러스 방어: 선천적 면역부터 바이러스 감염까지. Antivir Res. 2014년; 108:129~141. https://doi.org/10.1016/j.antiviral.2014.05.013 PMID: 24886688.
31. Obsil T, Obsilova V. FOXO 전사 인자 조절의 기본이 되는 구조/기능 관계. 종양 유전자. 2008; 27(16):2263-2275. https://doi.org/10.1038/onc.2008.20 PMID: 18391969.