낭포성 섬유증에서 면역글로불린 A 점막 면역과 변형된 호흡기 상피 1부
Apr 21, 2023
추상적인:호흡 상피는 흡입된 유해 물질, 특히 낭포성 섬유증의 병원균에 대한 최초의 화학적, 면역적 및 물리적 장벽을 나타냅니다. CFTR 단백질 기능 장애로 인한 국소 점액 비후, 변경된 점액 섬모 제거 및 감소된 pH는 세균의 과증식 및 과도한 염증을 촉진합니다. 우리는 낭포성 섬유증 환자에서 면역글로불린 A와 관련된 국소 면역에 대한 현재 지식과 상피 내의 호흡기 점막 변경을 요약하는 것을 이 검토에서 목표로 했습니다.
관련 연구에 따르면,담배다양한 질병을 치료하기 위해 수세기 동안 사용되어 온 전통 중국 허브입니다. 가지고 있다는 것이 과학적으로 입증되었습니다.항염증, 노화 방지, 그리고산화 방지제속성. 연구에 따르면 cistanche는 다음으로 고통받는 환자에게 유익합니다.신장 질환. cistanche의 활성 성분은 다음과 같이 알려져 있습니다.줄이다염증,신장 기능 개선그리고손상된 신장 세포 회복. 따라서 신장 질환 치료 계획에 cistanche를 통합하면 환자가 자신의 상태를 관리하는 데 큰 이점을 제공할 수 있습니다. Cistanche는 단백뇨 감소, BUN 및 크레아티닌 수치 감소, 추가 위험 감소에 도움이 됩니다.신장 손상. 또한, cistanche는 또한 신장 질환을 앓고 있는 환자에게 위험할 수 있는 콜레스테롤과 트리글리세리드 수치를 줄이는 데 도움이 됩니다.

어디에서 Cistanche를 구입할 수 있습니까?를 클릭하십시오.
더 많은 정보를 위해서:
david.deng@wecistanche.com WhatApp:86 13632399501
1. 소개
낭포성 섬유증(Cystic fibrosis, CF)은 1938년 도로시 앤더슨(Dorothy Andersen)에 의해 확인되었으며 백인 인구에서 가장 흔한 치명적인 유전적 상염색체 열성 장애입니다[1-3]. CF는 전 세계적으로 약 85000명에게 영향을 미칩니다[4]. 발생빈도는 인종과 민족에 따라 다르며[3], 북유럽 혈통의 사람들에서 약 3000명 중 1명꼴로 발생하며, 보인자 빈도는 25명 중 1명으로 추정됩니다[5]. CF의 유병률은 특히 매우 효과적인 조절제 요법과 관련된 개선된 생존율과 개선된 진단 방법 및 신생아 선별 검사 덕분에 새로운 사례의 조기 발견으로 인해 증가합니다[3,6].
CF는 1989년에 발견된 CF 막전도 조절자(CFTR) 유전자의 돌연변이에 의해 발생합니다. 이것은 인간 7번 염색체의 장완에 위치하며 ATP 결합 카세트 계열에 속하는 음이온 채널을 암호화합니다[7-10]. CFTR은 모든 상피(비점막, 기관, 폐, 외분비 췌장, 창자, 땀샘, 신장, 침샘, 고환, 자궁)의 정단 표면과 점막하샘의 장액 세포, 단핵구, 면역 세포에서 발현됩니다. , 평활근 세포, 신경 세포 및 심장 세포[11–22]. 정상적인 대기도와 소기도에서는 최근 섬모세포보다 분비세포와 기저세포에 더 많이 분포하고 있다[23]. 그것의 넓은 표현은 질병의 전신적 특성을 설명합니다. CFTR 단백질은 이온의 수송과 상피 장벽을 가로지르는 물의 이동을 조절하는 채널입니다. 이는 원형질막(염화물, 중탄산염, 티오시안산염 및 글루타티온)을 통한 음이온 수송을 담당하고 [24–27] 다른 이온 채널과 상피 Na 플러스 채널(ENaC)과 같은 수송체를 조절하는 것으로 설명됩니다. CFTR [17]. CFTR 유전자의 2000개 이상의 돌연변이가 기술되었으며 382개는 CF를 유발하는 것으로 알려져 있습니다[28,29].
CFTR 기능 장애는 그것이 발현되는 기관에서 많은 증상을 일으키지만 폐 질환은 이환율과 사망률의 주요 원인으로 남아 있습니다[3](2018년 유럽에서 CF 환자의 66.14%의 사망률에 책임이 있음)[30]. 1950년대부터 점진적으로 시행된 증상 치료는 생존과 삶의 질을 향상시켰습니다. CFTR 단백질 결함을 교정하는 표적 치료법이 현재 이용 가능합니다. 교정기(lumacaftor, lumacaftor 및 lumacaftor) 및 증강제(ivacaftor)[31]는 각각 CFTR 접힘 및 처리를 복원한 다음 CFTR 채널 개방을 개선할 수 있습니다. 이러한 약물은 FEV1, 체질량 지수 및 삶의 질을 개선하고 땀 염화물 및 폐 악화 횟수를 감소시킵니다[32-39].

상기도에서는 거의 모든 환자에서 만성 비부비동염과 비용종의 출현을 촉진하는 비염이 발생한다[40]. CF 폐 질환은 점액 막힘, 만성 호중구 염증 및 기관지 확장증 및 폐 실질 파괴를 포함한 점진적인 구조적 폐 손상을 초래하는 재발성 감염을 특징으로 하는 점액 폐쇄성 장애입니다[41,42]. 활성화된 호중구는 기도에서 모집되고(가장 두드러진 염증 세포 집단이 됨) 많은 수의 염증 매개체를 방출합니다[43-45]. 돌연변이 CFTR 채널은 호중구 관련 산화 스트레스에 대응하기 위해 항산화제를 운반하지 않으며, 이는 CF 폐 조직 손상(기관지확장증 및 기관지연화증) 및 진행성 폐 기능 감소를 담당하는 프로 및 항염증성 사이토카인 불균형에 기여합니다[46]. 결함이 있는 면역 반응(점액성 점액, 결함이 있는 면역 세포, 항미생물 분자, 점액섬모 청소율 감소)은 기회 병원균에 의한 급성 및 진행성 만성 폐 감염을 초래합니다[45]. 호흡기 바이러스, 메티실린 민감성 황색포도상구균, 헤모필루스 인플루엔자가 가장 먼저 유행하고 폐 기능 악화 및 생명 예후와 관련된 Pseudomonas aeruginosa와 같은 보다 유해하고 내성이 강한 병원균에 의해 나이가 들면서 대체됩니다[47-49].
2. CF 호흡기 상피의 변경
호흡 상피는 흡입된 병원체에 대한 첫 번째 장벽이며 코에서 말단 호흡 세기관지까지의 기도를 덮고 있습니다[50]. 이 가성중층상피는 크게 4가지 종류의 세포(기도상피세포의 50% 이상을 차지하는 섬모세포, 술잔세포, 기저세포, 곤봉세포)로 구성되어 있으며 화학물질(항균분자, 라이소자임, 락토페린, 프로테아제, 및 항단백분해효소 등), 면역학적 및 물리적 장벽[20,51-54]. 최근에 서로 다른 전사 시그니처에 기초한 주요 상피 세포의 여러 하위 집합이 단일 세포 분석에 의해 기술되었습니다(섬모 세포에 대해 3개, 기저 및 분비 세포에 대해 5개)[55]. 섬모 세포의 첫 번째 하위 집합은 SPAG1, LRRC6 및 DNAAF1과 같은 섬모 사전 조립의 마커를 보여 주었고 두 번째는 성숙한 섬모 세포(TUBA1A 및 TUBB4B)의 마커를 표현했습니다. 전 염증성 혈청 아밀로이드 A 단백질을 발현하는 세 번째 하위 집합은 아마도 면역 반응에 참여했을 것입니다. 분비 세포의 첫 번째 하위 집합은 SCGB1A1 및 세르핀 계열 구성원의 발현을 특징으로 하며 세기관지의 곤봉 세포와 동일한 패턴을 공유합니다. 술잔 세포 자체(두 번째 하위 집합)는 MUC5B 및 MUC5AC, AGR2 및 SPDEF를 발현했습니다. 세 번째 하위 집합은 섬모 세포의 전구체로 생각되며 DNAH, ANKRD, MUC16 및 MUC4의 발현을 나타냅니다. 또 다른 유형의 분비 세포(점액성)는 MUC5B, TFF1 및 TFF3을 발현했습니다. 마지막으로 다섯 번째 하위 집합은 리소자임과 락토페린을 발현하는 장액성 분비 세포입니다. 기저 세포의 경우 5개의 하위 집합이 정의됩니다. 하위 집합 1은 종양 단백질 P63과 사이토케라틴 5 및 15가 풍부합니다. 토포이소머라제 II 알파 및 증식 마커 Ki-67에 대한 아형 2(증식하는 기저 세포); 세르핀 계열에 대한 서브세트 3(분비 세포로 전환되는 기저 세포); 하위 집합 4는 AP-1 계열 구성원인 JUN 및 FOS 표현을 나타냈습니다. 서브세트 5는 -카테닌을 발현하였다. 이들의 정확한 역할은 알려지지 않았으며 건강한 대조군과 CF 환자 간에 비슷한 비율을 나타냅니다[55].

부검 연구에서 편평화생, 염증성 침윤, 기관지확장증, 점액화농성 마개와 같은 CF 환자의 폐 변화가 밝혀졌습니다[57,58]. 그것은 변경된 기도 상피 사양(섬모 세포의 감소 및 술잔 세포의 증가[59]), 망상 기저막의 비후[60], 세포외 매트릭스의 구조적 구성 요소(엘라스틴, 콜라겐, 글리코사미노글리칸)의 분해와 관련이 있었습니다. [61]. Epithelial-to-mesenchymal transition (EMT)은 분극화된 상피가 중간엽 세포로 탈분화되는 발생 및 복구 동안의 생리학적 과정입니다[62]. 이는 극성 마커(예: ZO-1 또는 E-cadherin)의 손실, 향상된 이동 능력, 스핀들 모양과 같은 중간엽 특징의 획득, 비멘틴의 발현, 피브로넥틴과 같은 세포외 기질 단백질의 분비를 포함합니다. [63,64]. 손상 후 EMT는 중간엽 세포가 병변으로 이동하여 점액 섬모 상피로 재분화할 수 있는 층을 형성합니다. 만성 염증 시 EMT는 지속되며 리모델링으로 이어질 수 있습니다[65]. 여러 연구에 따르면 CF에서 리모델링이 발생하지만 EMT의 존재는 파악하기 어렵습니다[66]. 한 연구에서는 EMT 마커(피브로넥틴 및 N-cadherin)의 발현이 C38 대조군 세포주와 비교하여 IB3 세포(CF 기관지 상피에서 유래된 세포주)에서 증가되었음을 입증했습니다[67]. TGF-신호는 EMT를 촉진하고 이러한 특징은 IB3 세포에서 TGF-억제 시 가역적이었습니다. 또한, TGF-발현은 CF에서 증가하고 망상 기저막의 비후와 관련됩니다. EMT의 존재와 상피 세포의 변화된 분화는 CF 기관지 상피의 비정상적인 표현형을 특징짓는 것을 목표로 하는 보다 최근의 데이터에 의해 확인되었으며 섬모 세포 수 감소, 술잔 세포 수 증가 및 중간엽 마커 발현 증가를 보여줍니다[68](그림 1 , 미공개 데이터). 흥미롭게도, CFTR-발현 상피 세포의 EMT 민감도는 CFTR 조절제에 의해 역전되었으며[69], 말기 CF 환자에서 단일 세포 전사체는 더 적은 기저 세포와 더 많은 세포가 섬모 세포 및 분비 세포로 전이되는 변화된 상피 분화를 확인했습니다. 비-CF 대조군[55].
CF 생리 병리학에서 감염의 역할은 중요합니다. 결핍된 CFTR 단백질은 인간과 돼지(마우스가 아님)에서 중탄산염 배설을 줄이고 기도 표면 액체의 pH를 감소시켜 감염을 촉진합니다[70]. CF 돼지 기도 상피 세포 배양에서 이 산성 환경이 Pseudomonas aeruginosa 살해를 손상시키는 것으로 나타났습니다[71]. 또한 정상적인 성체 돼지 기관에서 중탄산염 분비를 억제하면 점액섬모 수송이 느려지고[72] 점액섬모 청소율 장애는 섬모주위액량 감소와도 관련이 있기 때문에 점액섬모 청소율을 변경합니다[73]. CF 기도 조직은 제어 기도보다 단백질 및 전사 수준 모두에서 감염(바이러스 및/또는 박테리아)에 과도하게 그리고 때로는 다르게 반응합니다. 이는 CF 및 비-CF 대조군 어린이의 일차 기도 상피 세포의 RNA 시퀀싱을 통한 Pseudomonas aeruginosa 및 인간 라이노바이러스 감염에 대한 최근 연구에서 강조되었습니다[74,75]. 이것은 특히 베이스라인[76,77]에서 증가된 IL-8 생산에 의해 CF 기도의 지속적인 염증 반응에 기여할 수 있지만 녹농균 감염 후 연장된 IL-8 mRNA 수준에 의해서도 기여할 수 있습니다. CF 환자의 가래에서 증가된 IL-8 수준 외에도 TNF- 및 IL-1과 같은 다른 전 염증성 사이토카인이 상향 조절됩니다[77]. 기관지 폐포 세척에서 IL-6, IL1, Th1(INF-), Th2(IL-5, IL-13) 및 Th17(IL-17A ) 비-CF 대조군에 비해 사이토카인이 증가하였다[78]. 이러한 과도한 염증 및 변조된 박테리아 살상 및 제거 외에도 CF에서 특히 인간 파라인플루엔자 3 바이러스[79] 또는 라이노바이러스[75,80]에 대한 선천적 항바이러스 방어가 변경된 것으로 보입니다.

3. CF 호흡기 상피의 면역글로불린 A 점막 면역
3.1. IgA 구조
면역글로불린(Ig) A는 호흡기 점막(Ig의 70%)에서 가장 풍부한 Ig이며 [81] 점막 관련 림프 조직, 특히 기관지 관련 림프 조직에 위치한 B 세포에 의해 생성됩니다. 전신 면역 체계[82]. 성숙한 B 세포는 T 세포 의존성 및 T 세포 비의존성 클래스 스위치 재조합을 통해 IgA 발현을 얻습니다[83].
Monomeric IgA는 160kDa 단백질[84]이며 IgA1과 IgA2의 두 가지 하위 클래스가 존재합니다(후자는 백인 인구에서 우세한 IgA2m(1)와 아프리카 인구에서 우세한 IgA2m(2)라는 두 가지 동종형 변형을 나타냅니다). IgA2는 힌지 영역에서 13-아미노산 결실로 인해 IgA1과 다릅니다. 가장 많이 생산되는 하위 클래스인 IgA1은 혈청에서 IgA의 약 90%를 차지하는 반면 IgA2의 비율은 점막 조직에서 더 풍부합니다[82]. 골수 형질 세포에 의해 생성된 IgA는 주로 단량체이고 혈청에 존재하는 반면(88%) 점막 분비 형태의 IgA는 대부분 중합체(80%, 대부분 이합체)입니다[50,82,84]. 고분자 면역글로불린 수용체(pIgR)에 결합하는 데 필요한 폴리펩티드[82,84]. 혈청 IgA 농도는 나이가 들면서 증가하고 성별과 흡연 상태에 따라 다릅니다[85].
3.2. IgA 규제 및 역할
pIgR은 상피 세포의 기저외측 표면에서 발현되는 transmembrane 단백질로 상피 밑에 있는 고유층의 형질 세포에 의해 생성되는 이합체 IgA(d-IgA)의 상피 세포 통과를 매개합니다[81]. d-IgA의 결합 유무에 관계없이 pIgR은 엔도사이토시스되어 정단막으로 전달되며, pIgR의 절반은 d-IgA가 없을 때 기저외측 극으로 재활용됩니다[86-88]. pIgR의 발현은 사이토카인(IFN- , TNF- , IL-1, IL-4 및 IL-17), 바이러스, 박테리아, 곰팡이, 레티노산, 및 호르몬 [89]. 트래피킹 동안 또는 정단 극에서 분비 성분(SC)으로 알려진 pIgR의 세포외 리간드 결합 영역은 미확인된 류펩틴 민감성 엔도펩티다아제에 의해 절단되어 자유 형태 또는 분비 IgA(S -IgA) [90]. 루멘에서 S-IgA는 소위 "면역 배제"[91]를 통해 병원균과 입자가 상피에 부착되는 것을 막고 응집하고 중화합니다. 또한 시험관 내 연구에서는 특정 IgA가 인플루엔자 바이러스나 홍역과 같은 바이러스를 중화하는 능력이 있는 것으로 나타났습니다[92-95]. 또 다른 연구에서는 IgA가 고유판(lamina propria)에서 용해성 항원에 결합할 수 있으며, 면역 복합체는 이후에 pIgR 의존적 메커니즘을 통해 내강으로 운반되는 것으로 나타났습니다[96]. S-IgA는 고전적인 보체 경로를 활성화하지 않지만 골수 세포에 의해 발현되는 IgA Fc 수용체에 결합하여 식균 작용, 항체 의존성 세포 매개 세포 독성, 과산화물 생성, 탈과립화, 사이토카인 분비, 항원 제시 및 칼슘 동원을 촉진할 수 있습니다[82, 92,97]. SC도 그 역할을 합니다. 첫째, S-IgA를 안정화하고 호중구 엘라스타제를 포함한 단백질 분해로부터 S-IgA를 보호합니다[81]. 둘째, 인플루엔자 바이러스에 대한 중화 능력을 증가시켜 IgA의 효과적인 기능을 향상시킨다[98]. 마지막으로, SC는 점액을 연결하고 내강과 상피 사이의 경계면을 형성하여 S-IgA의 적절한 위치를 조절합니다[99]. Free SC는 또한 항균 특성을 가지고 있습니다. 예를 들어 폐에서 Streptococcus pneumoniae SpsA 표면 단백질 결합을 감소시키고[100], 호중구 화학유인 물질 IL-8 및 기타 케모카인과 결합하여 이들의 활성을 억제하여 항염증제 역할을 합니다[101]. 대규모 글리코실화는 SC 및 S-IgA의 비특이적 역할에 중요하며 탄수화물의 변화는 결함 있는 SC와 관련이 있습니다[102]. 전체적으로, pIgR은 미생물총과 상피 염증의 조절을 통해 점막 항상성에 중요한 역할을 합니다.
3.3. CF의 IgA 면역
감염 및 염증에서의 역할과 관련하여 pIgR 발현은 이미 만성 폐쇄성 폐질환과 같은 만성 호흡기 질환[103-105], 알레르기성 비염 및 만성 비부비동염과 같은 상기도 질환[106]에서 연구되었습니다. 기도 상피 세포에서 감소하는 것으로 나타났습니다. 세균성 호흡기 감염과 관련하여 Streptococcus pneumoniae는 체외에서 SC와 결합하여 상피 세포를 침범할 수 있습니다[107].
CF에서 여러 연구에서 혈청 내 IgA 농도가 증가한 것으로 나타났습니다[108], 특히 Pseudomonas aeruginosa 만성 감염[109] 및 더 심각한 질병[110]. 이러한 증가는 또한 CF 환자의 가래 또는 기관지폐포 세척[111]뿐만 아니라 CF 객담[112]에서 증가된 자유 SC에서도 제안되었습니다. 특정 항-Pseudomonas aeruginosa IgA는 환자가 만성 감염 [113] 또는 폐 기능 저하 [114]를 앓고 있을 때 혈청에서 상향 조절되는 것으로 나타났지만 [114] 객담 [115] 및 비강 분비물 [116]에서도 증가합니다. 그러나 다른 연구에서는 CF 타액[117]과 위 관류액[118]에서 IgA 분비가 감소한 것으로 나타났습니다. 치료법에 대한 CF 연구에서 pIgR은 기관지 내강으로 알파-1 항트립신을 수송하는 데에도 사용되었습니다[119]. 최근 pIgR 발현과 CF 폐에서 pIgR 조절 장애 및 IgA 면역의 가능한 메커니즘을 평가하기 위해 다중 방식 접근법(폐 조직, 가래, 혈청, 1차 상피 세포 배양 및 CF 마우스 포함)을 사용하는 연구가 수행되었습니다[120] . 이 연구는 CF 폐, 가래 및 혈청에서 상피 pIgR 발현, IgA 생산(Pseudomonas aeruginosa-특이 IgA 포함) 및 IgA + B 세포가 상향조절되었음을 보여주었습니다. B 세포를 포함하는 기관지 주변의 증가된 림프성 응집체는 CF[121]에 설명되어 있으며 가능한 IgA 공급원을 나타냅니다.

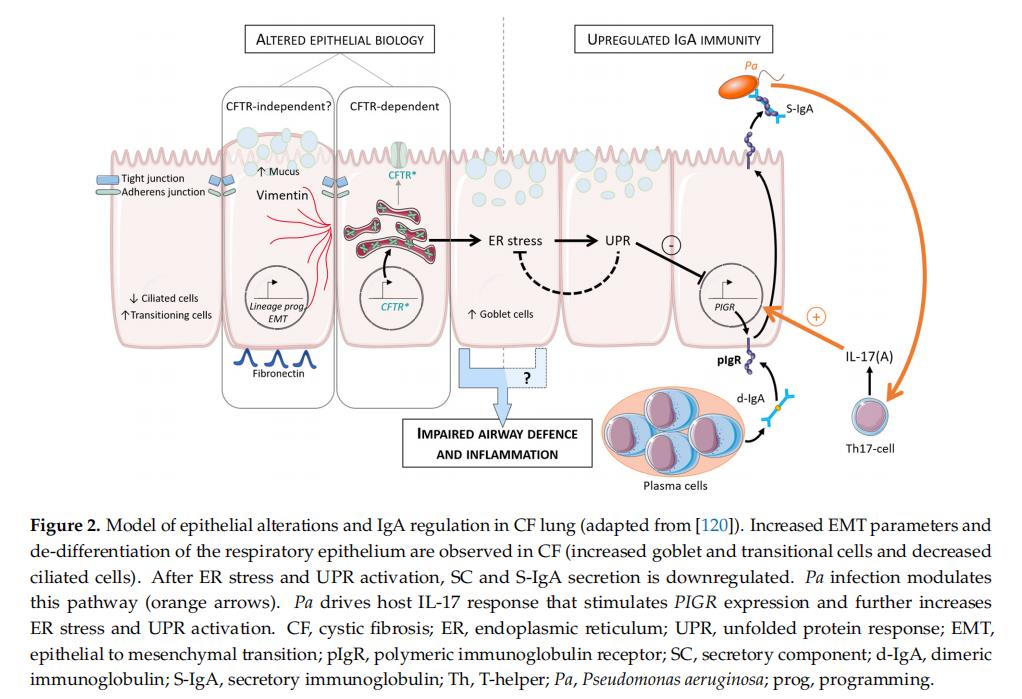
그러나, CF 인간 기관지 상피 세포 및 F508del 마우스에서의 실험은 pIgR/SC 생산 및 d-IgA 트랜스사이토시스의 구성적 하향조절이 대조군 세포에 CFTR 억제제를 첨가함으로써 요약된 바와 같이 밝혀냈다. 이 음성 CFTR-pIgR 경로는 CF에서 잘못 접힌 F508del-CFTR의 활성화와 뒤이은 접히지 않은 단백질 반응(UPR)을 수반하여 소포체(ER) 스트레스와 UPR 경로가 점막 표면에서 IgA 생산의 주요 규제 체크포인트임을 나타냅니다. 실제로, ER 스트레스 활성화 UPR은 SC 및 S-IgA 분비를 하향 조절할 수 있었습니다. Pseudomonas aeruginosa로 코팅된 마이크로비드에 의한 만성 폐 감염의 생체 내 모델은 감염이 IL-17 염증 숙주 반응을 통해 F508del 마우스의 폐에서 pIgR 발현 및 IgA 생성을 회복시킬 수 있음을 보여주었습니다[120]. Pseudomonas aeruginosa 감염은 pIgR 발현을 자극하고 ER 스트레스와 UPR 활성화를 더욱 증가시키는 호스트 IL-17 반응을 유도하여 CFTR-pIgR 경로를 조절합니다. ER, Pseudomonas aeruginosa 감염으로 인한 추가 스트레스는 UPR 활성화에 의해 불충분하게 상쇄될 수 있으며 IgA 상향 조절에 기여하는 것으로 나타났습니다[122]. 연속적으로 증가된 Th17 염증(pIgR mRNA를 조절할 수 있음)이 있는 T 세포의 Th17 분화 경향은 CF 및 비CF 기관지확장증 모두에 존재하는 현상이며 아마도 CFTR 결함과 관련이 있을 뿐만 아니라 [123,124]. Pseudomonas aeruginosa 감염에서 상향 조절된 IL-1 및 TNF-와 같은 다른 사이토카인도 pIgR 발현을 상향 조절할 수 있었습니다. 이 최근 연구는 CF 환자의 타액에서 SC의 농도 감소를 보여주는 결과를 조화시킬 수 있습니다. 후천성 세균 감염의 표적이기 때문에 상향 조절은 폐에서만 선택적으로 발생할 수 있음을 시사합니다[120]. CF의 악화 원인인 인간 인플루엔자 A 바이러스와 같은 다른 미생물도 ER 스트레스를 증가시키고 비구조 단백질 1의 발현을 통해 이를 조절할 수 있습니다[125,126]. 그러나 폐 감염이 없는 pIgR 조절 장애는 F508del 모델에서만 평가되었습니다. 따라서 pIgR을 통한 IgA 분비는 non-F508del 환자에서 불명확하며 보다 드문 CFTR 돌연변이에서 추가로 다루어야 합니다[120]. CF 환자에서 변경된 호흡 상피 및 조절 장애 IgA 시스템의 주요 특징은 그림 2 및 표 1에 요약되어 있습니다.
IgA와 마이크로바이옴의 관계와 관련하여 장과 염증성 장 질환에 대한 첫 번째 데이터는 전 염증성 IgA 코팅 박테리아가 염증성 장 질환을 유발할 수 있으며 이러한 박테리아를 근절하는 것이 미래에 유망할 수 있음을 보여주었습니다[127]. 최근에, 크론병에서 NOD2 결핍은 마이크로바이옴/IgA 상호작용을 조절하지 못하는 IgA의 역전사세포증을 증가시키는 것으로 나타났습니다[128]. 다반응성 IgA는 또한 장내 미생물군에 대한 선천적 반응성에 참여하고[129] IgA 결핍에 의한 세균불균형의 유도가 설명되었습니다[130].
폐-장 축은 장내 미생물총이 폐 질환 과정에 미칠 수 있는 영향(및 그 반대)이며 최근 Price 등이 CF에서 검토했습니다. [131]. 예를 들어, 장내 마이크로바이옴 변형은 어린이의 악화 및 슈도모나스 집락화와 관련이 있었습니다[132]. 장내 IgA 생산과 폐 수지상 세포 사이의 가능한 혼선을 고려할 때 S-IgA에 대한 향후 연구는 CF에서 영향을 받는 폐와 장 사이의 연결에 초점을 맞춰야 할 것입니다. 실제로 호흡기/장 점막의 염증을 촉진할 수 있는 IgA 결합 박테리아는 향후 치료의 대상이 될 수 있습니다.


자세한 정보: david.deng@wecistanche.com WhatApp:86 13632399501