

JAK1의 손실은 선천적 면역 결핍을 유발합니다
Nov 13, 2023
야누스 키나제(JAK-STAT) 신호 전달 경로는 면역 반응을 조정하는 데 중요하며 그 조절 장애는 암 및 면역 장애와 밀접하게 연관되어 있습니다. IL-15 수용체 사슬인 JAK3 또는 STAT5의 손실로 인해 인터루킨(IL)-15/STAT5 신호 전달 경로가 중단되면 자연 살해(NK) 세포 이상과 함께 면역 결핍이 발생합니다. JAK1은 JAK3과 함께 IL-15의 하류로 신호를 전송하지만 JAK1이 NK 세포 생물학에 미치는 정확한 기여는 아직 밝혀지지 않았습니다. NK 세포에서 JAK1 결핍의 결과를 연구하기 위해 우리는 NKp46+ 세포(Jak1fl/flNcr1Cre)에서 JAK1의 조건부 삭제가 있는 마우스를 생성했습니다. 우리는 NK 세포 고유 JAK1의 삭제가 골수에서 NK 세포 수를 크게 감소시키고 발달을 손상시킨다는 것을 보여줍니다. 우리는 비장, 혈액 및 간에서 NK 세포가 거의 완전히 손실되는 것을 관찰하여 말초 NK 세포에서 JAK1의 중요한 역할을 입증했습니다. Jak1fl/+Ncr1Cre 마우스는 NK 세포 매개 종양 감시가 상당히 손상된 것으로 나타났습니다. 우리의 데이터는 JAK2가 NK 세포에서 JAK1의 손실을 보상할 수 없음을 시사합니다. 중요하게도, NKp46+ 세포에서 JAK2의 조건부 삭제는 말초 NK 세포에 영향을 미치지 않았으며 이는 NK 세포 고유의 JAK2가 NK 세포 생존에 필요하지 않음을 나타냅니다. 요약하면, 우리는 NK 세포에서 JAK1의 손실이 선천성 면역 결핍을 유발하는 반면, JAK2 결핍은 NK 세포 수와 성숙을 변경하지 않는다는 것을 확인했습니다. 따라서 우리는 현재 사용되는 JAK1/JAK2 억제제와 달리 JAK{32}}특이적 억제제를 사용하는 것이 NK 세포를 그대로 유지함으로써 환자에게 유리할 것이라고 제안합니다.
키워드: JAK-STAT, 자연살해세포, JAK1, JAK2, 종양감시

cistanche tubeulosa-항종양의 장점
소개
자연 살해(NK) 세포는 바이러스에 감염되거나 형질전환된 세포를 인식하고 죽이는 선천적 림프구입니다(1). NK 세포의 결핍은 드물지만 원발성 면역결핍(PID)의 하위 유형으로 점점 인식되고 있습니다. 고전적 NK 세포 결핍증은 말초 혈액에 NK 세포가 없는 것이 특징이며 바이러스 감염에 대한 감수성이 높아집니다(2). 야누스 키나제(JAK) - 신호 변환기 및 전사 활성화제(STAT) 신호 전달 경로는 여러 사이토카인, 성장 인자 및 호르몬의 하류에서 작용하여 면역 반응을 비판적으로 조절합니다(3, 4). 특정 리간드가 동족 수용체에 결합하면 구조적 변화로 인해 수용체 올리고머화가 발생하고 수용체 관련 JAK가 활성화됩니다. JAK는 자동 및 트랜스 인산화를 통해 서로를 인산화하고 수용체 사슬을 인산화하여 STAT 분자의 도킹 부위를 제공합니다. 그런 다음 STAT는 JAK 매개 인산화를 거쳐 이합체화되고 핵으로 이동하여 표적 유전자의 전사를 조절합니다(5). JAK3 및 STAT5는 c 수용체를 활용하는 사이토카인의 하류 신호를 변환하는 데 중요한 역할을 합니다(6). JAK3(7) 또는 STAT5B(8)를 코딩하는 유전자의 "기능 상실"(LOF) 돌연변이는 선천성 림프구에 대한 경로의 중요성을 강조하는 NK 세포 이상의 PID를 유발합니다. 이들 환자의 면역결핍은 IL{18}} 및 IL{19}} 반응 장애로 설명됩니다(6). 중요한 것은 JAK1이 c 함유 사이토카인 수용체 하류의 STAT5를 활성화하는 데 JAK3에 비해 지배적인 역할을 한다는 것입니다(9). JAK1의 LOF 돌연변이가 PID를 유발할 수도 있다고 추측하는 것은 매력적입니다. 현재까지 JAK1이 감소되었으나 없는 것은 아닌 JAK1 생식계열 돌연변이를 보유하고 있는 단 한 명의 환자만이 확인되었으며 실제로 면역 억제를 나타냈습니다(10). 생쥐에서 JAK1의 완전한 손실은 주산기 치사율을 초래하고 갓 태어난 생쥐는 흉선세포와 B 세포의 강력한 감소를 나타냅니다(11). 이러한 관찰은 성체 쥐에서 확인되었습니다. JAK1의 유도성 결실은 조혈 줄기 세포(HSC) 항상성의 손상을 초래하고 B 세포 및 B220+CD11c+NK1.1+ 하위 집합의 빈도를 현저하게 감소시킵니다. NK 세포(12). 그러나 현재까지 JAK1의 소실이 기존 NK 세포에 미치는 영향을 직접 분석한 연구는 없습니다.

Cistanche Deserticola 엄마-간 유지
NK 세포 생물학에 대한 JAK1의 기여에 대한 첫 번째 통찰력은 암 및 자가면역 질환 치료용으로 승인된 약물인 JAK 억제제를 사용한 연구에서 비롯됩니다(13). JAK1/JAK2 억제제인 Ruxolitinib로 치료한 생쥐와 환자 모두 NK 세포 수 감소, 성숙 장애 및 기능 장애를 보였습니다(14, 15). JAK2는 NK 세포 분화를 유도하는 데도 연루되어 있기 때문에(14, 16), 두 키나제 중 어느 것이 Ruxolitinib 치료의 관찰된 효과를 담당하는지 밝혀져야 합니다. NKp46+ 세포에서 Jak1 또는 Jak2가 녹아웃된 마우스를 사용하여 JAK2가 NK 세포 생존에 필요하지 않음을 보여줍니다. 대조적으로, 성숙한 NK 세포에서 JAK1의 결실은 NK 세포 결핍을 초래하고, Jak1의 대립유전자 중 하나의 상실은 종양 성장 조절을 손상시키기에 충분합니다. 따라서 우리는 JAK1을 성숙한 NK 세포의 핵심 요소로 확인하고 고전적인 NK 세포 결핍의 마우스 모델을 생성했습니다.
재료 및 방법
쥐와 세포주
Jak1fl/fl(C57BL/6N-Jak1tm1c(EUCOMM)Hmgu/H; Alexander Dohnal 박사(CCRI, 오스트리아 비엔나)가 친절하게 제공했습니다. 돌연변이의 Jak1tm1c 대립 유전자는 Jak1tm1a 녹아웃 첫 번째 대립 유전자를 가진 마우스에서 생성되었습니다(설명됨). 국제 마우스 표현형 분석 컨소시엄 https://www.mousephenotype.org) Flp-재조합을 통해 lacZ-neo 카세트를 절제합니다.
Jak1fl/fl 마우스의 조건부 전위는 Cre-재조합 및 Jak1의 loxP 측면 엑손 3의 절제에 의해 활성화되었습니다. Jak1fl/fl 또는 Jak2fl/fl[Jak2tm1Kuw; (17)] B6NTg(Ncr1Cre)로; (18) 생쥐. Stat5fl/fl(19) 및 Stat5fl/flNcr1Cre(18) 마우스는 이전에 설명되었습니다. Jak1fl/fl , Ncr1Cre , Stat5fl/fl , Stat5fl/flNcr1Cre 마우스는 C57B6/N 배경에 있었고 Jak2fl/fl 은 혼합 배경에 있었습니다. 실험 동물은 FELASA(Federation for Laboratory Animal Science Associations) 지침(2014)에 따라 연령이 일치하고(8~12주) 비엔나 수의과 대학에서 특정 병원체가 없는 조건에서 유지되었습니다. 동물 실험은 §§ 26ff에 따라 비엔나 수의과 대학의 윤리 및 동물 복지 위원회와 국가 기관(오스트리아 연방 과학 연구부)의 승인을 받았습니다. 동물실험법, Tierversuchsgesetz 2012—TVG 2012, 라이센스 BMWF-68.205/0218-II/3b/2012 및 BMBWF-68.205/0174-V/3b에 따라 /2018이며 FELASA 및 ARRIVE의 지침에 따라 수행되었습니다. 논문 전체에서 Jak1WT는 Jak1fl/+ 및 Jak1fl/fl 마우스의 풀링된 데이터를 나타냅니다. 마우스 림프종 세포주 RMA-Rae1 [A. Cerwenka 교수가 친절하게 제공; (20)] 및 YAC-1를 10% FCS(Bio & Sell), 100 U/mL 페니실린, 100 mg/mL 스트렙토마이신(Sigma) 및 50μM을 포함하는 RPMI1640(Sigma) 완전 배지에서 배양했습니다. }}머캅토에탄올(Sigma).

cistanche tubeulosa - 면역 체계를 향상시킵니다.
생체 내 종양 모델
Jak1fl/+ 및 Jak1fl/+Ncr1Cre 마우스에 106개의 RMA-Rae1 세포를 양쪽 옆구리에 피하 주사하고 종양 성장을 격일로 모니터링했습니다. 주사 후 10일 동안 마우스를 희생시키고 종양의 무게를 측정하였다. 종양 침윤 NK 세포의 유세포 분석을 위해 종양을 ~5mm2 조각으로 절단하고 콜라게나제 D(1mg/mL, Sigma Aldrich)를 함유한 소화 완충액과 함께 GentleMACS™ Octo Dissociator(Miltenyi Biotec)를 사용하여 단일 세포 현탁액을 얻었습니다. 및 DNAse I(20 mg/mL; Roche).
NK 세포 분리, 확장 및 자극
NK 세포는 제조업체의 지침(Miltenyi Biotec)에 따라 DX{1}} 표지 MACS 비드를 사용하여 비장 단일 세포 현탁액으로부터 분리되었습니다. NK 세포를 5,000 U/mL rhIL-2(Proleukin, Novartis)이 보충된 RPMI1640 완전 배지에서 7일 동안 확장시켰습니다. CD3-NK1.1+ 세포의 수는 0일, 3일, 5일 및 7일에 유동 세포 계측법으로 평가되었습니다. 7일에 웨스턴 블롯 분석을 위해 세포를 용해했습니다. pSTAT5 분석을 위해 106개의 비장세포를 50ng/ml rmIL-15(PeproTech)로 15분 동안 자극하고 세포를 2% PFA에 고정한 후 메탄올 투과화 및 재수화를 수행했습니다.
NK 세포 세포 독성 분석
시험관 내 세포독성 분석을 위해 DX5-MACS 분류 NK 세포를 위에서 설명한 대로 IL-2에서 7일 동안 확장하고 지정된 효과기에서 혼합했습니다. 목표 비율은 카르복시플루오레세인 디아세테이트 숙신이미딜 에스테르(CFSE, Molecular Probes)입니다. , CellTrace CFSE 세포 증식 키트) 표지된 표적 세포. 37oC에서 4시간 동안 배양한 후 세포를 Sytox Blue Dead Cell Stain(Thermo Fischer)으로 염색하고 특정 표적 세포 용해를 유세포 분석법으로 평가했습니다.
유세포분석
단일 세포 현탁액은 비장, 골수 또는 간에서 제조되었습니다. 5-10 mL 멸균 PBS를 간문맥을 통해 관류시켰습니다. 림프구 분리는 개인(GE Healthcare) 37.5%를 사용하여 수행되었습니다. 혈액 분석을 위해 제조사의 프로토콜(BD Bioscience)에 따라 BD FACS Lysing Solution을 사용하여 적혈구를 용해시켰습니다. 다음 단백질을 표적으로 하는 항체(클론)는 eBioscience에서 구입했습니다: CD3(17A2), CD3e(145-2C11), CD11b(M1/70), CD16/CD32(93), CD19(eBio1D3) CD27(LG. 7F9), CD49b(DX5), CD122(5H4), CD226(10E5), Gr{31}}(RB{32}}C5), KLRG1(2F1), Ly49A(A1), Ly49G2(eBio4D11), NKG2A /C/E(20d5), NKG2D(CX5), NKp46(29A1.4), NK1.1(PK136) 및 Ter119(TER-119). CD49a(Ha31/8) 및 pSTAT5[47/Stat5(pY694)] 항체는 BD Pharminogen에서 구입했고 pan-Rae1(186107)은 R&D Systems에서 구입했습니다. 총 세포수는 카운팅 비드 Count Bright Beads(Invitrogen)를 사용하여 유동 세포측정법으로 평가되었습니다. 유세포 분석 실험은 BD FACSCanto II(BD Bioscience) 또는 Cytoflex(Beckman Coulter)에서 수행되었으며 BD FACSDiva V8.0(BD Bioscience), CytExpert(Beckman Coulter) 또는 FlowJo V10(FlowJo, LLC) 소프트웨어를 사용하여 분석되었습니다.

그림 1|NKp46+ 세포에서 JAK1이 손실되면 말초 NK 세포가 거의 완전히 없어집니다. (A) 골수 내 Lin−(CD3−CD19−Ly-6G−Ter119−) CD122+ NK 세포의 빈도(왼쪽 패널) 및 총 수(오른쪽 패널)를 흐름으로 평가했습니다. 세포 계측법. (B) 골수 Lin−CD122+ 세포는 NK 전구체(NKPs: NKp46−NK1.1−), 미성숙 NK 세포(iNK: NKp46−NK1.1+) 및 성숙한 NK 세포로 추가로 나누어졌습니다. NK 세포(mNK: NKp46+NK1.1+). (C) 비장 내 CD3−NKp46+ NK 세포의 빈도를 유세포 분석으로 평가하고 대표적인 플롯을 표시합니다. (D, E) (D) 비장 및 (E) 혈액의 CD3−NKp46+ NK 세포의 빈도(왼쪽 패널) 및 총 수(오른쪽 패널)를 유세포 분석으로 평가했습니다. (F) 기존 NK 세포(CD3−NK1.1+NKp46+CD49b+, 왼쪽 패널) 및 ILC1 세포(CD3−NK1.1+NKp46+CD49a+의 빈도 , 오른쪽 패널)은 유세포 분석을 통해 Jak1WT, Jak1fl/+Ncr1Cre 및 Jak1fl/flNcr1Cre 마우스의 간에서 분석되었습니다. (A, B, D-F) 막대 그래프는 1-2개의 독립적 실험의 평균 ± SEM을 나타냅니다. n=3–11. *p < 0.05, **p < 0.01, ***p < 0.001.
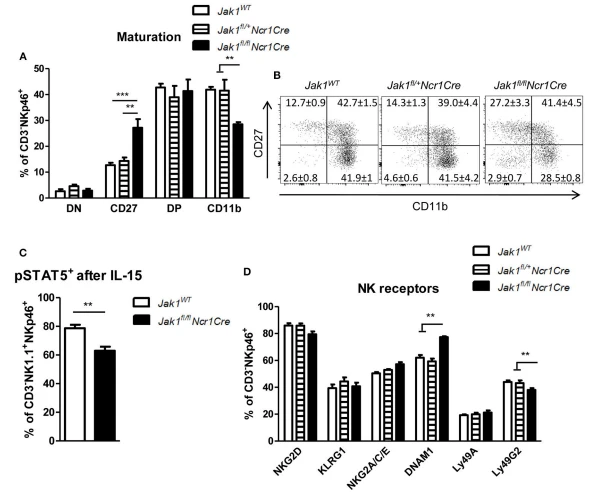
그림 2|나머지 Jak1fl/flNcr1Cre NK 세포는 미성숙 표현형을 나타냅니다. (A, B) 비장 CD3−NKp46+ NK 세포를 유동 세포측정법으로 CD27 및 CD11b의 발현에 대해 분석했습니다. (A) 각 성숙 단계의 세포 빈도는 DN(CD27 −CD11b−), CD27(CD{{1{35}}}}CD11b−), DP(CD27+CD11b+), CD11b(CD27-CD11b+). 각 성숙 단계의 총 세포 수는 그림 S1C에 표시됩니다. (B) 대표적인 플롯이 표시됩니다. (C) pSTAT5(Y694)+ 세포는 유동 세포측정법에 의해 IL-15로 15분 자극 후 생체 외 CD3-NKp46+NK1.1+ 집단 내에서 분석되었습니다. (D) 비장 CD3−NKp{{30}} NK 세포를 유세포 분석을 통해 표시된 활성화 및 억제 수용체의 발현에 대해 분석했습니다. 각 수용체에 대해 양성인 NK 세포의 비율이 표시됩니다. 중간 형광 강도 데이터는 그림 S1D에 표시되어 있습니다. (A-D) 플롯의 막대 그래프와 숫자는 2개의 독립적인 실험의 평균 ± SEM을 나타냅니다. n=5–8. **p < 0.01, ***p < 0.001.
웨스턴 블롯
세포 용해, SDS-PAGE 및 웨스턴 블롯은 이전에 설명한 대로 수행되었습니다(21). 화학발광의 검출은 Clarity Western ECL 기판(BioRad)과 ChemiDocT XRS+ Molecular Imager(BioRad)를 사용하여 수행되었으며 Image Lab 소프트웨어(BioRad)로 분석되었습니다. 다음 항체가 사용되었습니다: 로딩 대조군으로 Santa Cruz의 항-액틴(C4, sc-47778), 항-JAK2(D2E12; #3230), 항Perforin(#3693) 및 항-JAK1(#3332) ) 세포 신호 기술에서.
cistanche tubeulosa - 면역 체계를 향상시킵니다.
Cistanche Enhance Immunity 제품을 보려면 여기를 클릭하십시오.
【추가 요청】 이메일:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
통계 분석
GraphPad Prism 버전 500 (GraphPad Software)를 사용하여 Unpaired t-test 또는 Tukey 사후 테스트를 통한 일원 분산 분석을 수행했습니다. 각 실험에 대한 유의성 수준이 표시됩니다(*p < 0.05; **p < 0.01; ***p < 0.001).
결과
JAK1 결실은 용량 의존 방식으로 NK 세포 및 ILC1 수치를 감소시킵니다
JAK1/JAK2 억제제 Ruxolitinib은 NK 세포 수, 성숙 및 기능을 감소시키는 것으로 나타났습니다(14, 15). NK 세포 생물학에 대한 JAK1과 JAK2의 기여를 비교하고 해결하기 위해 우리는 NKp46+ 세포에서 JAK1 또는 JAK2가 조건부 삭제된 마우스를 생성했습니다. 따라서 우리는 Ncr1Cre (18) 마우스를 Jak1fl/fl 또는 Jak2fl/fl [재료 및 방법 섹션 및 (17) 참조] 마우스와 각각 교배시켰습니다. NK 세포는 Lin−CD122+NK1.1−NKp46−로 정의되는 NK 세포 전구체(NKP)로부터 골수에서 발생합니다. 이는 NK1이 되는 미성숙 NK 세포(iNK)로 발전합니다.1+ 반면 성숙한 NK 세포(mNK)만 NK1입니다.1+NKp46+ (22). Ncr1Cre 마우스의 Cre 재조합효소 발현은 NKp46 프로모터에 의해 구동되므로 Cre 매개 결실은 NK 세포로 제한됩니다. 우리는 Jak1fl/flNcr1Cre 마우스에서 골수 NK 세포의 비율과 총 개수가 크게 감소하는 것을 관찰했습니다(그림1A). Jak1fl/flNcr1Cre 마우스의 Lin−CD122+ NK 세포는 NK 세포 전구체(NKP)와 미성숙 NK 세포의 비율이 증가한 반면, mNK는 iNK 세포의 발달 차단에 따라 골수에서 크게 감소했습니다. mNK 세포 단계로의 진행을 방지하는 단계(그림 1B). Jak1의 한 대립유전자를 삭제하면 중간 수의 골수 NK 세포가 생성되었습니다(그림 1A). 일관되게 NK 세포 발달은 NK 세포 발달에 대한 Jak1 유전자 투여 효과를 암시하는 중간 표현형을 보여주었습니다(그림 1B). 골수 NK 세포의 발달이 차단되면 말초의 NK 세포 수가 급격히 감소합니다. JAK1의 손실로 인해 비장 및 혈액 NK 세포가 거의 완전히 결핍되었습니다(그림 1C-E). Jak1 유전자 용량 효과에 따라 Jak1fl/+Ncr1Cre 마우스는 비장과 혈액에서 야생형 동배에 비해 NK 세포 비율이 감소하고 총 수가 50%로 감소한 것으로 나타났습니다(그림 1C-E). NKp46+ 세포에서 JAK1 하류 효과기 및 전사 인자 STAT5의 결실은 또한 성숙한 NK 세포의 감소를 초래합니다(18). Jak1fl/flNcr1Cre 및 Stat5fl/flNcr1Cre 마우스를 직접 비교한 결과, JAK1의 결실은 STAT5의 결실보다 비장 및 혈액에서 훨씬 더 뚜렷한 NK 세포 결핍을 유발하는 것으로 나타났습니다(그림 S1A, B). 간 NKp46+ 선천 림프구는 서로 다른 계통의 두 그룹으로 구성됩니다(23). 기존의 NK 세포(cNK)는 CD49b의 발현이 특징이고 자유롭게 순환하는 반면, 간에 상주하는 1형 선천성 림프구(ILC1)는 CD49a의 발현이 특징이고 간에 제한됩니다(24). 비장 및 혈액과 마찬가지로 간 cNK 및 조직 상주 ILC1은 JAK1이 손실되면 거의 완전히 제거되었습니다(그림 1F). 다시 Jak1의 한 대립유전자를 삭제하면 간 선천성 림프구가 중간 정도 풍부해졌습니다(그림 1F). 요약하면, 이러한 발견을 통해 우리는 NKp46+ 세포에서의 JAK1 발현이 용량 의존적 방식으로 말초 기관의 NK 세포 발달 및 유지에 필수적이라는 결론을 내릴 수 있었습니다.
JAK1은 NK 세포 성숙에 중요합니다
말초에서 NK 세포는 CD27 및 CD11b 표면 마커의 순차적 발현을 특징으로 하는 성숙 단계를 거칩니다(22). Jak1WT와 Jak1fl/+Ncr1Cre 세포 사이의 각 성숙 단계에서 세포 비율의 차이를 감지하지 못했기 때문에 Jak1의 하나의 대립 유전자는 NK 세포 성숙을 유도하는 데 충분했습니다(그림 2A, B). 나머지 Jak1fl/flNcr1Cre NK 세포는 미성숙 집단(CD27+CD11b-)의 증가와 성숙한 CD27−CD11b+ 집단의 감소를 보여주었습니다(그림 2A, B 및 그림 S1C). 이 결과는 나머지 세포가 JAK1을 상실했을 수 있으며 완전히 성숙될 만큼 충분한 IL{19}} 신호를 수신하지 못했음을 시사합니다. 실제로, 나머지 Jak1fl/flNcr1Cre NK 세포는 IL-15로 단기 자극 시 생체 외에서 STAT5의 인산화가 감소한 것으로 나타났습니다(그림 2C). NK 세포 활동은 활성화 수용체와 억제 수용체 사이의 균형에 의해 제어됩니다. Jak1의 대립유전자 중 어느 하나도 삭제되지 않으면 KLRG1, NKG2D, NKG2A/C/E 및 Ly49A와 같은 활성화 및 억제 수용체를 발현하는 NK 세포의 비율에 영향을 미쳤습니다(그림 2D). 가장 두드러진 차이점은 Jak1fl/flNcr1Cre 마우스에서 Ly49G2+ NK 세포의 약간 감소와 DNAM{34}} NK 세포의 증가였습니다(그림 2D). 마찬가지로 DNAM1과 Ly49G2의 MFI가 증가한 것 외에 각 수용체의 발현 수준(MFI)에서는 총 차이가 발견되지 않았습니다(그림 S1D). 활성화 수용체로서의 역할 외에도 DNAM- 1 발현은 발달 단계를 표시합니다. DNAM-1+ 세포는 DNAM-1- 세포를 생성합니다(25). 우리는 DNAM-1+의 변화가 Jak1fl/flNcr1Cre NK 세포의 성숙 블록을 반영한다고 추론했습니다.

그림 3|JAK2는 NK 세포의 생존과 성숙에 필수적입니다. (A) Jak2WT 및 Jak2fl/flNcr1Cre 마우스의 비장에 있는 CD3 -NKp46+ NK 세포의 빈도(왼쪽 패널) 및 총 수(오른쪽 패널)를 유세포 분석으로 평가했습니다. (B) 비장 CD3-NKp46+ NK 세포를 유세포 분석을 통해 CD27 및 CD11b의 발현에 대해 분석했습니다. 각 성숙 단계의 세포 빈도는 DN(CD27−CD11b−), CD27(CD27+CD11b−), DP(CD27+CD11b+), CD11b(CD27−CD11b+)로 표시됩니다. (C) IL-2에서 확장 6일 후 JAK2 및 -actin의 발현을 NK 세포의 웨스턴 블롯으로 분석했습니다. 전체 오점 스캔은 보충 자료에서 확인할 수 있습니다. (A, B) 막대 그래프는 2-3개의 독립적 실험의 평균 ± SEM을 나타냅니다. n=5–12.

그림 4|Jak1의 대립 유전자 중 하나가 손실되면 NK 세포 활동이 손상됩니다. (A) NK 세포를 비장에서 MACS로 정제하고 IL{3}}에서 7일 동안 배양했습니다. 살아있는 CD3−NK1.1+NKp46+ 세포의 수는 2~3일마다 평가되었습니다. 표시되는 기호와 오류 막대는 2-4개의 생물학적 복제물의 ± SEM을 의미합니다. (B) JAK1, Perforin 및 -actin의 발현은 Western blot을 통해 두 번의 독립적인 실험을 통해 확장된 NK 세포에서 분석되었습니다. 전체 오점 스캔은 보충 자료에서 확인할 수 있습니다. (C) Jak1WT 및 Jak1fl/+Ncr1Cr 마우스의 확장된 NK 세포를 CFSE 염색 YAC{{2{29}}}}(왼쪽 패널) 또는 RMA-Rae1(오른쪽 패널) 표적 세포와 지정된 효과기 표적 비율로 혼합했습니다. . 특정 용해는 유동 세포 계측법으로 평가되었습니다. YAC-1의 경우 두 개의 독립적인 실험 중 하나의 대표적인 그래프가 표시됩니다. 기호와 오류 막대는 2개의 기술 복제물의 평균 ± SEM을 나타냅니다. RMA-Rae1의 경우 두 번의 독립적인 실험의 평균이 표시됩니다. 표시되는 기호와 오류 막대는 2-3개의 생물학적 복제물의 ± SEM을 의미합니다. *p < 0.05, **p < 0.01, ***p < 0.001.
JAK2는 NK 세포 생존 및 성숙에 필요하지 않습니다.
지금까지 우리는 NK 세포 고유의 JAK1 결실이 NK 세포 결핍을 초래한다는 것을 보여주었습니다. JAK2가 NK 세포 생존 및 성숙에 영향을 미치는지 확인하기 위해 Jak2fl/flNcr1Cre 마우스 및 야생형 동배의 비장 NK 세포를 분석했습니다. 우리는 비장의 CD3−NKp46+ 세포의 빈도 또는 총 수에 대한 JAK2 삭제의 영향을 감지하지 못했습니다(그림 3A). 또한 Jak2fl/flNcr1Cre 마우스는 두 유전자형 모두에서 유사한 비율의 CD27-CD11b+ 세포가 검출됨에 따라 정상적인 NK 세포 성숙을 나타냈습니다(그림3B). NK 세포에서 JAK2 단백질의 결실이 매우 효율적이었기 때문에(그림 3C), 이러한 데이터는 JAK1과 달리 NK 세포 고유의 JAK2가 NK 세포 생존 및 성숙에 필요하지 않다는 것을 명확하게 정의합니다.

남성의 면역체계 강화를 위한 시스탄체의 효능
Jak1의 대립 유전자 중 하나가 손실되면 NK 세포 기능이 손상됩니다
JAK1이 NK 세포 기능을 조절하는 방법에 대한 추가 통찰력을 얻기 위해 Jak1WT, Jak1fl/+Ncr1Cre 및 Jak1fl/flNcr1Cre에서 MACS로 정제된 비장 NK 세포의 성장을 분석했습니다. JAK1-결핍 NK 세포는 확장되지 않았는데, 이는 매우 높은 용량의 IL-2 하에서도 다른 JAK가 JAK1의 손실을 보상할 수 없음을 보여줍니다(그림 4A). Jak1의 대립유전자 중 하나가 손실되어 약간의 성장 결핍이 발생했습니다(그림 4A). 웨스턴 블롯 분석은 퍼포린의 감소된 수준과 병행되는 확장된 Jak1fl/+Ncr1Cre NK 세포에서 감소된 JAK1 단백질 발현을 확인했습니다(그림 4B). 이에 따라 Jak1fl/+Ncr1Cre NK 세포는 표적 세포주 YAC-1 및 RMA-Rae1에 대해 손상된 세포독성 활성을 나타냈습니다(그림 4C). 이러한 결과는 JAK1이 말초에서 NK 세포를 유지하는 데 필수적일 뿐만 아니라 세포 독성 활성에도 기여한다는 것을 증명합니다.
Jak1의 대립 유전자 중 하나의 손실로 인한 NK 세포 고갈은 종양 감시를 손상시킵니다
NK 세포는 형질전환된 세포를 조기에 인식하고 제거하는 데 중요합니다. Jak1fl/+Ncr1Cre 마우스에서 NK 세포 감소 및 기능 장애로 인해 종양 성장에 대한 민감성이 증가하고 다른 수단으로 보상되지 않는지 여부를 조사하기 위해 RMA-Rae1 림프종 세포를 사용했습니다. 이 세포주는 강력하고 효율적인 방식으로 NK 세포 의존성 종양 감시를 연구하기 위한 도구입니다(20). 우리는 RMA-Rae1 림프종 세포를 Jak1fl/+ 및 Jak1fl/+Ncr1Cre 마우스의 양쪽 측면에 피하 이식했습니다. Jak1의 하나의 대립유전자가 부족하면 Jak1fl/+Ncr1Cre의 종양 크기 증가(그림 5A) 및 종양 무게(그림 5B)에서 알 수 있듯이 종양 성장을 제어하는 NK 세포의 능력이 손상되었습니다. 이와 관련하여, 이들 종양은 NK 세포 침윤이 상당히 감소된 것으로 나타났습니다(그림 5C, D). 우리는 RMA-Rae1 종양 인식에 중요한 NKG2D+ 종양 침윤 NK 세포(그림 5E)의 빈도 차이를 감지하지 못했습니다. 요약하면, 우리의 결과는 Jak1fl/+Ncr1Cre 마우스에서 손상된 NK 세포 기능과 결합된 감소된 NK 세포 수가 생체 내 종양 성장 조절을 크게 손상시키기에 충분하다는 것을 보여줍니다.
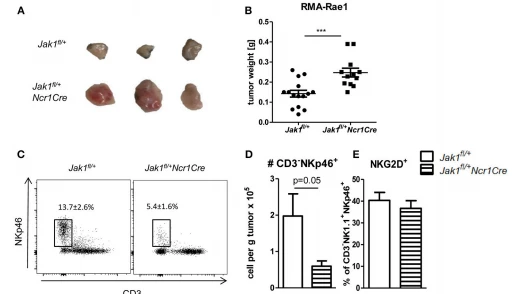
그림 5|Jak1의 대립 유전자 중 하나가 손실되면 종양 감시가 손상됩니다. (A, B) Jak1fl/+ 및 Jak1fl/+Ncr1Cre 마우스에 106개의 RMA-Rae1 세포를 피하 주사하고 10일 후에 종양 무게를 평가했습니다. (A) 대표적인 종양 사진과 (B) 2개의 독립적인 실험에서 평균 종양 무게 ± SEM을 나타내는 수평선이 있는 도트 플롯이 표시됩니다. n=6-8 (C, D) 종양 침윤 NK 세포를 유세포 분석으로 분석했습니다. (C) 종양 침윤 CD3−NKp46+ 세포의 대표적인 플롯과 Rae1− 세포 중 해당 비율이 표시됩니다. (D) 종양 그램당 종양 침윤 CD3−NKp46+ 세포의 총 수 및 (E) NKG2D+ NK 세포의 백분율은 한 실험 n=4-의 평균 ± SEM을 보여주는 막대 그래프로 표시됩니다. 5. ***p < 0.001.
논의
JAK-STAT 신호 전달 경로의 조절 장애는 암 발생 및 면역 장애와 밀접하게 연관되어 있습니다(7). 처음으로 발견된 JAK 관련 질병은 LOF JAK3 돌연변이로 인한 NK 세포 이상을 특징으로 하는 중증 복합 면역 결핍증(SCID)이었습니다(26, 27). 우리는 NKp46+ 세포에서 JAK1의 결실이 말초 기관의 NK 및 ILC1 세포의 손실과 함께 선천성 면역 결핍을 초래하는 반면, JAK2는 NK 세포 생존 및 성숙에 중복된다는 것을 보여줍니다. 우리의 이전 연구에서는 NK 세포에서 STAT5의 손실이 말초 기관의 NK 세포 수의 심각한 감소로 이어진다는 사실을 밝혀냈습니다(18). Stat5fl/flNcr1Cre 마우스에서 NK 세포의 손실은 생존 촉진 분자 BCL2의 강제 발현에 의해 구제되었습니다(28). 이 연구에서는 STAT5를 NK 세포의 중요한 생존 인자로 정의했습니다. STAT5B가 결핍된 마우스에는 NK 세포가 거의 없습니다(29). 이는 STAT5가 IL-2 또는 IL-15(30)과 같은 NK 세포 생물학에 필수적인 사이토카인의 하류에 신호를 보낸다는 사실과 일치합니다. IL-15는 Il15-/- 마우스에는 말초 NK 세포가 거의 없기 때문에 NK 세포 발달 및 생존에 중요합니다(31). IL-15는 c 수용체 사슬, IL{29}}R 및 IL{30}}r의 수용체 복합체를 통해 신호를 보냅니다(32). 각 수용체 사슬의 녹아웃 마우스는 NK 세포 발달을 위해 IL{32}} 하류로 전송되는 신호에 절대적으로 중요한 역할을 한다는 것이 입증되었습니다(33, 34). 현재까지 NK 세포 발달에 대한 c-관련 JAK3의 기여는 잘 확립되어 있습니다. JAK3 결핍이 있는 마우스는 인간 환자에서 관찰된 것과 유사한 SCID 표현형을 나타내며 NK 세포 발달은 NK 전조 단계에서 차단됩니다(35, 36). 이제 우리는 이전에 과소평가되었던 JAK1을 NK 세포의 IL{43}}/STAT5 축의 중요한 부분으로 배치합니다. Jak1fl/flNcr1Cre NK 세포는 iNK 세포 단계에서 발달 차단을 나타내며 말초 기관에서는 NK 세포가 거의 완전히 손실됩니다.
흥미롭게도 NK 세포에 대한 JAK1 결실의 결과는 STAT5-결핍의 영향을 초과합니다. STAT3과 STAT5 결합 활성화의 손상은 STAT3이 중요한 NK 세포 생존 유전자 Mcl1의 발현을 유도하는 것으로 나타났기 때문에 NK 세포의 더욱 뚜렷한 손실의 기초가 될 수 있습니다(37, 38). 또는 JAK1과 STAT5는 "그냥 삭제자"(유전자를 막 잃었지만 여전히 단백질을 운반하는 NK 세포)의 빈도가 다르기 때문에 반감기가 다를 수 있습니다. 이는 차이점을 설명할 수 있습니다. JAK1-결핍의 유전자 투여 효과는 NK 세포 수에 반영되는 반면, JAK1 대립 유전자 중 하나의 손실은 NK 세포 성숙에 필수적입니다. 이는 활성화된 STAT5가 NK 세포 생존에 대해 속도를 제한하지만 성숙에는 그렇지 않음을 시사합니다. Jak1의 대립유전자 중 하나를 삭제하면 NK 세포 수 감소와 나머지 NK 세포 기능 저하를 기반으로 한 종양 감시가 크게 손상되기에 충분합니다. 우리의 데이터에 따르면, STAT5 표적 유전자 Mcl1의 NK 세포 특이적 결실은 심각한 NK 세포 결핍을 초래하여 전이성 부담을 크게 증가시킵니다(38).

cistanche tubeulosa - 면역 체계를 향상시킵니다.
JAK는 중복 기능을 나타내며 서로를 보완할 수 있습니다. 인터페론 수용체 JAK1의 하류는 JAK2 키나제 활성의 손실을 부분적으로 보상할 수 있습니다(39). JAK2는 또한 NK 세포의 시험관 내 분화 동안 IL-15 하류의 STAT5를 인산화시키는 것으로 나타났습니다(16). 반면, 구성적으로 활성인 JAK2는 줄기 세포에서 JAK1의 손실을 약간만 보상할 수 있으며 이는 HSC에서 JAK1과 2의 중복되지 않는 역할을 암시합니다. 이에 따라 우리는 JAK1이 없는 경우 JAK2가 NK 세포 생존을 허용하기 위해 시험관 내 고용량 IL-2 하에서도 STAT5 활성화를 보상하지 못하는 것을 관찰했습니다. 구성적으로 활성인 JAK2 형태를 발현함으로써 보상 효과를 얻을 수 있는지 여부는 아직 밝혀지지 않았습니다. 더 중요한 것은 NKp46+ 세포에서 JAK2의 손실이 NK 세포 생존에 필요하지 않음을 보여줍니다. JAK2-결핍 NK 세포는 완전히 성숙되었으며, 이는 NK 세포 고유의 JAK2가 NK 세포 성숙을 유도하지 않는다는 것을 증명합니다. 이는 또한 Jak2fl/flMx1Cre 마우스(14)에서 손상된 NK 세포 성숙이 JAK2의 NK 세포 외인성 기능에 의해 발생할 가능성이 가장 높다는 것을 나타냅니다. JAK2의 구성적 삭제가 사이토카인 환경을 변경한다고 추측할 수도 있습니다.
참고자료
1. Abel AM, Yang C, Thakar MS, Malarkannan S. 자연 살해 세포: 개발, 성숙 및 임상 활용. 프론트 면역. (2018) 9:1869. 도이: 10.3389/fimmu.2018.01869
2. 오렌지 JS. 자연살해세포 결핍. J 알레르기 Clin Immunol. (2013) 132:515–25. 도이: 10.1016/j.jaci.2013.07.020
3. O'Shea JJ, Plenge R. JAK 및 면역 조절 및 면역 매개 질환의 STAT 신호 전달 분자. 면역 (2012) 36:542-50. 도이: 10.1016/j.immuni.2012.03.014
4. 스타크 GR, 다넬 JE. 20의 JAK-STAT 경로. 면역 (2012) 36:503–14. 도이: 10.1016/j.immuni.2012.03.013
5. Shuai K, Liu B. 면역 체계의 JAK-STAT 신호 조절. Nat Rev Immunol. (2003) 3:900–11. 도이: 10.1038/nri1226
6. O'Shea JJ, 홀랜드 SM, Staudt LM. 면역, 면역 결핍 및 암에 대한 JAK 및 STAT. N 영어 J Med. (2013) 368:161-70. 도이: 10.1056/NEJMra1202117
7. Hammarén HM, Virtanen AT, Raivola J, Silvennoinen O. 사이토카인 신호 전달에서 JAK의 조절 및 질병에서의 분해. 사이토카인(2018). doi 10.1016/j.cyto.2018.03.041. [인쇄 전 Epub].
8. Lorenzini T, Dotta L, Giacomelli M, Vairo D, Badolato R. 프로그램 전환기로서의 STAT 돌연변이: 원발성 면역결핍을 자가면역 질환으로 전환. J Leukoc Biol. (2017) 101:29–38. doi: 10.1189/jlb.5RI0516-237RR
9. Haan C, Rolvering C, Raulf F, Kapp M, Drückes P, Thoma G 등. Jak1은 c 함유 사이토카인 수용체를 통한 신호 전달에서 Jak3에 비해 지배적인 역할을 합니다. 화학 Biol. (2011) 18:314–23. 도이: 10.1016/j.chembiol.2011
10. Eletto D, Burns SO, Angulo I, Plagnol V, Gilmour KC, Henriquez F 등. 마이코박테리아 감염이 있는 면역결핍 환자의 Bialelic JAK1 돌연변이. 냇 커뮤. (2016) 7:13992. 도이: 10.1038/ncomms13992
11. Rodig SJ, Meraz MA, White JM, Lampe PA, Riley JK, Arthur CD 등 Jak1 유전자의 파괴는 사이토카인 유발 생물학적 반응에서 Jaks의 의무적이고 중복되지 않는 역할을 보여줍니다. 셀(1998) 93:373-83.
12. Kleppe M, Spitzer MH, Li S, Hill CE, Dong L, Papalexi E, 외. Jak1은 사이토카인 감지를 통합하여 조혈 줄기 세포 기능과 스트레스 조혈을 조절합니다. 세포줄기세포(2018) 22:277. doi: 10.1016/j.stem.2017 13. Schwartz DM, Kanno Y, Villarino A, Ward M, Gadina M, O'Shea JJ. 면역 및 염증성 질환에 대한 치료 전략으로서의 JAK 억제. Nat Rev 약물 발견. (2017) 16:843–62. 도이: 10.1038/nrd.2017.201
14. Bottos A, Gotthardt D, Gill JW, Gattelli A, Frei A, Tzankov A 등. JAK 억제로 인한 NK 세포 종양 면역감시 감소는 유방암 모델에서 전이를 향상시킵니다. 냇 커뮤. (2016) 7:12258. 도이: 10.1038/ncomms12258
15. Schönberg K, Rudolph J, Vonnahme M, Parampalli Yajnanarayana S, Cornez I, Hejazi M 등. JAK 억제는 골수 증식성 신생물에서 NK 세포 기능을 손상시킵니다. 암 입술. (2015) 75:2187–99. doi: 10.1158/0008-5472.CAN-14-3198
16. Kim WS, Kim MJ, Kim DO, Byun JE, Huy H, Song HY, et al. 사이토카인 신호 전달 2의 억제제는 JAK2 활성을 억제하여 NK 세포 분화를 부정적으로 조절합니다. Sci Rep. (2017) 7:46153. 도이: 10.1038/srep46153
17. 크렘플러 A, Qi Y, Triplett AA, Zhu J, Rui H, Wagner KU. 생쥐에서 Janus 키나아제 2(Jak2) 유전자에 대한 조건부 녹아웃 대립유전자 생성. 창세기(2004) 40:52–7. 도이: 10.1002/gene.20063
18. Eckelhart E, Warsch W, Zebedin E, Simma O, Stoiber D, Kolbe T 등. 새로운 Ncr1 -Cre 마우스는 NK 세포 생존 및 발달에 있어 STAT5의 필수적인 역할을 보여줍니다. 블러드 (2011) 117:1565–74. doi: 10.1182/혈액-2010-06-291633
19. Cui Y, Riedlinger G, Miyoshi K, Tang W, Li C, Deng C, 외. 임신 중 마우스 유방 상피에서 Stat5의 불활성화는 세포 증식, 생존 및 분화에서 뚜렷한 기능을 나타냅니다. 몰셀바이올. (2004) 18:8037–47. doi: 10.1128/MCB.24.18.8037-8047.2004
20. Cerwenka A, 남작 JL, Lanier LL. 레티노산 초기 유도성-1 유전자(RAE-1)의 이소성 발현은 생체 내에서 MHC 클래스 I 보유 종양의 자연 살해 세포 매개 거부를 허용합니다. Proc Natl Acad Sci USA. (2001) 98:11521–6. 도이: 10.1073/pnas.201238598
21. Putz E, Gotthardt D, Hoermann G, Csiszar A, Wirth S, Berger A 등. CDK8-매개 STAT1-S727 인산화는 NK 세포 세포독성과 종양 감시를 억제합니다. 셀 담당자.(2013) 4:437–44. 도이: 10.1016/j.celrep.2013.07.012
22. 가이거 TL, Sun JC. 자연살해세포의 발달과 성숙. Curr Opin Immunol. (2016) 39:82–9. 도이: 10.1016/j.coi.2016.01.007
23. Sojka DK, Plougastel-Douglas B, Yang L, Pak-Wittel M, Artyomov MN, Ivanova Y, 외. 조직 상주 자연 살해(NK) 세포는 흉선 및 기존의 비장 NK 세포와는 구별되는 세포 계통입니다. Elife (2014) 3:e01659. 도이: 10.7554/eLife.01659
24. Peng H, Jiang X, Chen Y, Sojka DK, Wei H, Gao X 등. 간 상주 NK 세포는 피부 접촉 염증에 적응 면역을 부여합니다. J 클린 인베스트. (2013) 123:1444–56. 도이: 10.1172/JCI66381
25. Martinet L, Ferrari De Andrade L, Guillerey C, Lee JS, Liu J, Souza-Fonseca Guimaraes F, 외. DNAM-1 발현은 NK 세포 성숙의 대체 프로그램을 나타냅니다. 셀 담당자.(2015) 11:85–97. 도이: 10.1016/j.celrep.2015. 03.006
26. Macchi P, 빌라 A, Giliani S, Sacco MG, Frattini A, Porta F 등. 상염색체 중증 복합 면역 결핍증(SCID) 환자의 Jak-3 유전자 돌연변이. 자연 (1995) 377(6544):65–8.
27. 러셀 SM, Tayebi N, 나카지마 H, Riedy MC, Roberts JL, Aman MJ 등 SCID 환자의 Jak3 돌연변이: 림프구 발달에서 Jak3의 필수적인 역할. 과학 (1995) 270:797-800.
28. Gotthardt D, Putz EM, Grundschober E, Prchal-Murphy M, Straka E, Kudweis P 등. STAT5는 NK 세포의 주요 조절자이며 종양 감시에서 종양 촉진으로의 분자 스위치 역할을 합니다. 암 발견. (2016) 4:414–29. doi: 10.1158/2159-8290.CD-15-0732
29. Villarino A V., Sciumè G, Davis FP, Iwata S, Zitti B, Robinson GW 등 하위 집합 및 조직 정의 STAT5 임계값은 선천성 림프 세포의 항상성과 기능을 제어합니다. J Exp Med. (2017) 214:2999-3014. 도이: 10.1084/jem.20150907
30. Marçais A, Viel S, Grau M, Henry T, Marvel J, Walzer T. 사이토카인에 의한 마우스 NK 세포 발달 및 기능 조절. 프론트 면역. (2013) 4:450. 도이: 10.3389/fimmu.2013.00450
31. Kennedy MK, Glaccum M, Brown SN, Butz EA, Viney JL, Embers M, 외. 인터루킨 15-결핍 쥐의 자연 살해자 및 기억 CD8 T 세포 계통의 가역적 결함. J Exp Med. (2000) 191:771-80. 도이: 10.1084/jem.191.5.771
32. 이케미즈 S, 치리푸 M, 데이비스 SJ. IL-2 및 IL-15 신호 복합체: 다르지만 동일합니다. Nat Immunol. (2012) 13:1141-2. 도이: 10.1038/ni.2472
33. Williams NS, Klem J, Puzanov IJ, Sivakumar PV, Schatzle JD, Bennett M 등. 자연 살해 세포 분화: 녹아웃 및 형질전환 마우스 모델과 시험관 시스템에서 얻은 통찰력. Immunol Rev. (1998) 165:47-61.
34. Lodolce JP, Boone DL, Chai S, Swain RE, Dassopoulos T, Trettin S 등. IL-15 수용체는 림프구 귀소 및 증식을 지원하여 림프계 항상성을 유지합니다. 면역 (1998) 9:669-76.
35. Park SY, Saijo K, Takahashi T, Osawa M, Arase H, Hirayama N, 외. Jak3 키나제 결핍 마우스에서 림프 세포의 발달 결함. 면역 (1995) 3:771–82.
36. Robinette ML, Cella M, Telliez JB, Ulland TK, Barrow AD, Capuder K, 외. Jak3 결핍은 선천성 림프 세포 발달을 차단합니다. 점막 면역. (2017) 1:50–60. doi: 10.1038/mi.2017.38 37. Abdulghani J, Allen JE, Dicker DT, Liu YY, Goldenberg D, Smith CD 등 Sorafenib은 Jak2-Stat3-Mcl1 축을 통해 고형 종양을 Apo2L/TRAIL 및 Apo2L/TRAIL 수용체 작용제 항체에 민감하게 만듭니다. PLoS ONE (2013) 8:e75414. 도이: 10.1371/journal.pone.0075414
38. Sathe P, Delconte RB, Souza-Fonseca-Guimaraes F, Seillet C, Chopin M, Vandenberg CJ 등 자연 살해 세포에서 Mcl1의 유전적 절제에 따른 선천성 면역 결핍. 냇 커뮤. (2014) 5:4539. 도이: 10.1038/ncomms5539
39. Keil E, Finkenstädt D, Wufka C, Trilling M, Liebfried P, Strobl B, 외. Jak2 활성화 루프 돌연변이가 있는 새로운 마우스 모델에 의해 밝혀진 Janus Kinase 2의 중요한 비계 기능. 블러드 (2014) 123:520–9. doi: 10.1182/혈액-2013-03-492157


