
1부: NPHS1 및 TNFSF15의 일반적인 위험 변이는 아동기 스테로이드에 민감한 신 증후군과 관련이 있습니다
Mar 17, 2022
연락처: Audrey Hu Whatsapp/hp: 0086 13880143964 이메일:audrey.hu@wecistanche.com
Xiaoyuan Jia1,29,30, Tomohiko Yamamura2,30, Rasheed Gbagesin3,30, Michelle T. McNulty4,5,30, Kyuyong Song6, China Nagano2, Yuki Hitomi1,31, 이동원4,5,7, Yoshihiro Aiba8, Seik-Soon 코1,29, 우에노 카즈코1,29, 카와이 요스케1,29, 나가사키 마사오9,32, 노이리 에이세이10,29, 호리노우치 토모코2, 카이토 히로시2,11, 하마다 리쿠12, 오카모토 타카유키13, 카메이 코이치14, 요시츠구 4, 가쿠15 ,7, Katsushi Tokunaga1,29 및 Kazumoto Iijima2, Rika Fujimaru16, Ryojiro Tanaka11, Yuko Shima17, 소아 특발성 유전학 연구 컨소시엄신증증후군in Japan33, 백지원6, 강희경18, 하일수18, 한경희19, 양은미20, 대한 소아 유전성 신질환 컨소시엄33, Asiri Abeyagunawardena3, Brandon Lane3, Megan Chryst-Stangl3, Christopher Esezobor21,
1일본 도쿄대학교 의과대학 대학원 인간유전학과; 2고베대학교 대학원 의과대학 소아과학교실, 일본 고베; 3미국 노스캐롤라이나주 더럼에 있는 듀크대학교 의료센터 소아과 신장내과; 4미국 매사추세츠주 보스턴에 있는 보스턴 어린이 병원의 신장의학과; 5 의학 및 인구 유전학, Broad Institute, Cambridge, Massachussetts, USA; 6울산대학교 의과대학 생화학분자생물학교실; 7미국 매사추세츠주 보스턴에 있는 하버드 의과대학; 8임상연구센터, 국립병원기구 나가사키 의료센터, 오무라, 일본; 9일본 센다이, 도호쿠 대학, 도호쿠 메디컬 메가뱅크 조직 통합 유전체학과; 10도쿄대학교 병원 혈액투석 및 성분채집과, 일본 도쿄; 11일본 고베 효고현립 고베어린이병원 신장내과; 12일본 도쿄도 도쿄도아동병원 신장내과; 13홋카이도 대학병원 소아과, 삿포로, 일본; 14일본 도쿄 국립아동건강발달센터 신장 및 류마티스과; 15일본 후쿠오카 후쿠오카 소아병원 신장내과; 16일본 오사카 오사카시 종합병원 소아과; 17일본 와카야마 와카야마 의과대학 소아과; 18서울대학교 어린이병원 소아과; 19제주대학교 의과대학 소아과학교실 20전남대학교 어린이병원 소아과; 21나이지리아 라고스 라고스 대학교 의과대학 소아과; 22나이지리아 이케자 라고스 주립대학교 교육병원 소아과; 23프랑스 파리 로베르 드브레 병원, 파리 공공 지원 병원 소아 신장과; 24염증 연구 센터, Institut National de la Santé et de la Recherche Médicale UMR 1149, University Sorbonne-Paris, Paris, France; 25Bambino Gesù 아동 병원 및 연구소, 신장 및 투석과, 로마, 이탈리아; 26Sorbonne University, INSERM UMR_S1155 및 Nephrology Day Hospital, 신장과, Hôpital Tenon, Paris France; 27일본 고베 가쿠인 대학 운동 생물학 연구 센터; 및 28KNC 고베 가쿠인 대학 재활 학부 핵산 약물 발견학과, 일본 고베
스테로이드에 민감한 유전자를 이해하려면신증증후군(SSNS), 우리는 987명의 아동기 SSNS 환자와 3,2{9}}6개의 건강한 TNFSF15(rs6478109, P [2.54E-8, OR [0.72) 영역이 게놈을 달성했습니다. - 넓은 의미를 가지며 한국, 남아시아 및 아프리카 인구에서 복제되었습니다. 일본인, 한국인, 남아시아인, 아프리카인, 유럽인, 히스패닉인, 마그레브인 인구를 포함한 초인종 메타 분석은 NPHS{14}} KIRREL2(Pmeta [6.71E{18}}, OR [1.88 ) 및 TNFSF15(Pmeta [5.40E-11, OR [1.33) 유전자좌. 동일인의 사구체 NPHS1 mRNA 발현을 포함하는 NPHS1 위험 대립유전자를 분석한 결과, 위험 일배체형(Wilcox test p [9.3E{31}})에서 파생된 전사체의 발현이 현저히 낮은 대립유전자 특이적 발현이 밝혀졌습니다. NPHS1의 희귀 병원성 변이체는 선천적신증후군핀란드 유형(CNSF)의 경우, 본 연구는 동일한 유전자의 대립유전자 빈도 스펙트럼에 따른 변이가 희귀 단일 유전자 질환(CNSF)과 보다 복잡한 다유전자 질환(SSNS)을 유발하거나 이에 기여할 수 있다는 추가 증거를 제공합니다.
특발성신증후군(INS)는 소아에서 가장 흔한 사구체 질환입니다. INS의 유병률은 100명당 거의 16건인 것으로 보고되었습니다.{2}}1 INS 발병률에는 상당한 인종적 차이가 있어 어린이 100명당 2-7건의 범위를 생성합니다.{7}} . INS의 발병률은 유럽 가계에 비해 아시아계 가계가 더 높습니다.2 일본에서 INS의 추정 발병률은 어린이 100명당 6.49건입니다.{12}}3 스테로이드에 민감한 소아의 약 3%신증후군(SSNS)는 SSNS의 가족력을 가지고 있습니다.4 INS의 발병기전은 스테로이드 내성에 대한 50개 이상의 원인 단일 유전자가 있지만 여전히 불분명합니다.신증후군스테로이드 내성이 있는 소아 및 젊은 성인 환자의 약 30%에서 이러한 유전자의 원인 돌연변이가 확인되었습니다.신증후군.5,6 최근에 Rho-like small guanosine triphosphate-binding enzyme(GTPase) 활성과 관련된 6개의 유전자가 스테로이드로 부분적으로 치료될 수 있는 신증후군의 원인으로 확인되었습니다.7 EMP2 돌연변이는 SSNS의 결합 조합에 의해 확인되었습니다. 분석 및 엑솜 시퀀싱.8 그러나 SSNS 환자는 위의 유전자에 돌연변이가 있는 경우가 거의 없으며, 이는 대체 유전 구조가 SSNS 환자 대부분의 발병기전을 주도할 수 있음을 나타냅니다.9 급성 감염 및 곤충에 쏘인 것은 발병 및 재발신증후군.10-13 이러한 발견은 유전적 및 환경적 요인이 사회보장번호의 발달에 대한 감수성에 중요함을 시사합니다. 소아에서 SSNS의 유전적 감수성 요인을 설명하기 위해 잘 특성화된 사례-대조군 시리즈에서 4개의 게놈 전체 연관 연구(GWAS)가 수행되었습니다. HLA-DR/DQ 영역은 4q13.3(PARM1) 및 6q22.1(CALHM6)에 2개의 비 HLA 유전자좌가 있는 유럽 및 일본 인구14-17에서 질병과 가장 유의한 연관성을 나타냈습니다. European chidren.15,17 이 연구의 제한된 표본 크기를 감안할 때 추가 감수성 요인을 식별하려면 더 큰 집단과 국제 협력 연구가 필요합니다. 일본 인구에서 우리는 지금까지 가장 큰 표본 크기(987명의 아동기 SSNS 환자 대 3206명의 대조군)로 발견 GWAS를 수행한 후 국제 복제 및 인종 간 메타 분석을 수행했습니다(그림 1).
CISTANCHE 신장 질환 치료
결과
과목
INS의 정의는 보충 표 S1에 나와 있습니다. 발견 단계에서 1{12}}소아기 발병 SSNS를 가진 일본 환자 187명을 모집했으며, 품질 관리를 수행한 후 987명을 연관성 분석에 포함했습니다. 987 환자의 특성은 보충 표 S2에 나와 있습니다. 남녀 성비는 2.6:1이었다. 발병 시 중앙값은 4.{13}}세(0.4~17.9세)였습니다. 987명의 환자 중 501명(51%)에서 신장 생검을 시행했습니다(최소 변화 질환[N=470, 93.8%], 국소 분절 사구체 경화증[N=16, 3.2%], 미만성 간질 증식[N=14, 2.8%]). , 그리고 국소적 메산지움 증식 [N=1; 0.2% ]). 총 3331명의 건강한 일본 성인이 대조군으로 모집되었습니다.
게놈 전체 단일 염기 다형성(SNP) 기반 연관 분석
In the discovery stage, 1018 cases and 3331 healthy controls were genotyped by Japonica array. Whole-genome imputation was performed subsequently using the phased reference panel of 2036 healthy Japanese individuals. After data cleaning (Supplementary Figure S1A–E), 987 cases and 3206 controls with 6,834,340 autosomal single-nucleotide variants and short insertions and deletions were retained for association analyses. The power of discovery GWAS exceeded 80% to detect low-frequency variants (minor allele frequency [MAF] >0.5%) with genotypic relative risk >6.20, or common alleles (MAF $5%) with relative risk >2.05, or variants with an allele frequency ¼ 50% conferring relative risk >가법 모델에서 5E-08의 유의한 P-값 임계값에서 1.48(보충 그림 S2). 인플레이션 계수 l은 테스트된 모든 변형에 대해 1.151이었습니다. 성별과 처음 4개의 주요 구성 요소(PC1-4)를 조정한 후 l은 1.048이었고 HLA 영역(Hg19: chr6: 29,691,116-33,054,976)의 변이체가 제외되었을 때 1.043으로 감소했습니다(보충 그림 S3A 및 B).
가장 중요한 연관성은 HLA-DR/DQ 영역에서 감지되었습니다(rs6901541, P=2.80E–33, 승산비 [OR]=2.49, 95% 신뢰 구간: 2.15–2.89, 그림 2 및 3a). 19q13.12의 NPHS{14}}KIRREL2 영역(rs56117924, P=4.94E–20, OR=1.90, 95% 신뢰 구간: 1.66–2.18, 그림 3b) 및 TNFSF15 영역의 신호
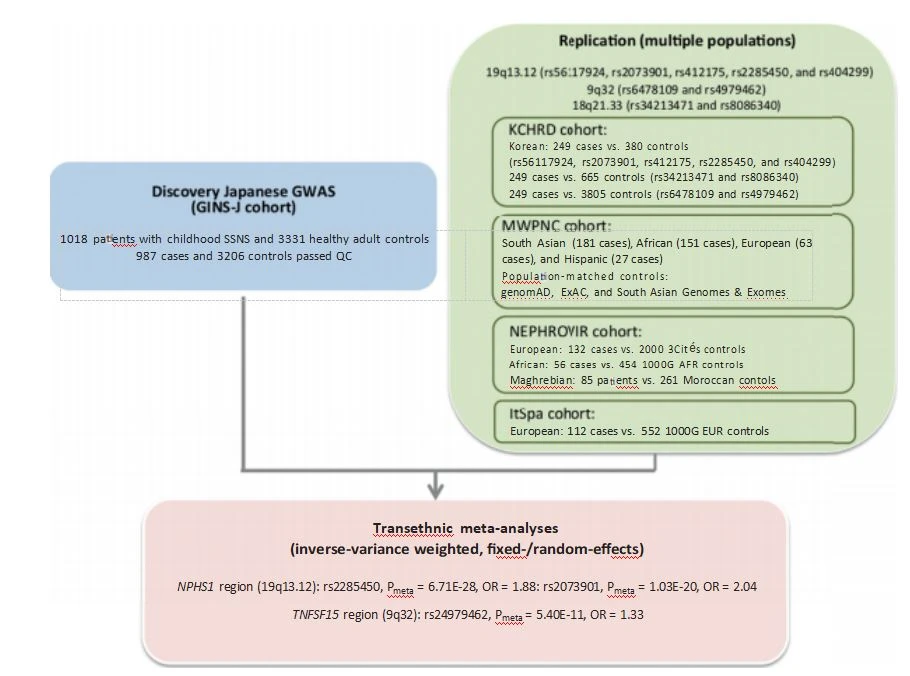
그림 1| 순서도. GWAS(Discovery Genome-Wide Association Study)의 주요 개요. 다중 모집단 및 초인종 메타 분석을 통해 HLA 외부의 후보 단일 뉴클레오티드 다형성 복제. 3Cités, 프랑스어 3-시(Bordeaux, Dijon, Montpellier) 집단; AFR, 아프리카; 유로, 유럽; ExAC, 게놈; GINS-J, 아동 유전학 연구 컨소시엄신증후군일본에서; ItSpa, 이탈리아어 및 스페인어 코호트; KCHRD, 대한 소아 유전성 신장 질환 컨소시엄; MWPNC, Midwest Pediatric Nephrology Consortium; NEPHROVIR, 아동 코호트 신증 및 바이러스; OR, 승산비; Pmeta, 메타 분석의 P 값; 품질 관리, 품질 관리; SSNS, 스테로이드 민감성신증후군.
CISTANCHE 신장 질환 치료
9q32(rs6478109, P=2.54E–08, OR ¼ 0.72, 95% 신뢰 구간: 0.64–0 .81, 그림 3c) 또한 게놈 전체의 중요성을 달성했습니다(P < 5e–08).="" 18q21.33의="" tnfrsf11a="" 영역="" 신호는="" 한계="" 게놈="" 전체="" 유의성을="" 달성했습니다(rs34213471,="" p="7.68E–08," or="1.38," 95%="" 신뢰="" 구간:="" 1.23–1.56,="" 그림="" 3d).="" 조건부="" 분석은="" 새로운="" 비="" hla="" 영역에서="" 수행되었습니다.="" snp는="" 각="" 궤적에서="" 선도="" snp를="" 조건화="" 한="" 후="" 독립적="" 인="" 의미를="" 나타내지="" 않았습니다="" (보충="" 그림="" s4-s6).="" 표적="" 복제="" 및="" 메타="" 분석을="" 위해="" 9개의="" snp가="" 선택되었습니다.="" nphs{40}}="" kirrel2="" 영역에서="" 리드="" snp(rs56117924),="" 리드="" snp(rs2073901="" 및="" rs2285450)와="" 연관="" 불균형에="" 있는="" 2개의="" 잠재적="" 기능="" snp="" 및="" 2개의="" snp="" 유럽="" 인구="" (rs412175="" 및="" rs404299)에서="" 충분한="" 빈도를="" 가진="" 주요="" snp와의="" 연관="" 불균형이="" 선택되었습니다="" (보충="" 그림="" s7).="" tnfsf15="" 영역에서는="" 선행="" snp(rs6478109)="" 외에="" rs4979462(발견="" 일본어="" 세트에서="" rs6478109가="" 있는="" r2="0.55)가" 이전="" 보고서에서="" 자가면역="" 질환과="" 관련이="" 있기="" 때문에="" 선택되었습니다.18,19="" tnfrsf11a="" 영역에서,="" 리드="" snp(rs34213471)="" 및="" 리드="" snp(발견="" 일본어="" 세트에서="" rs34213471과="" 함께="" rs8086340,="" r2="0.42)와" 연관="" 불균형의="" snp가="" 선택되었습니다.="" 모든="" 후보="" snp는="" 일본="" 인구에서="" 일반적인="" 변이체(maf=""> 5%)였습니다(표 1).
비 HLA 지역에서 후보 SNP의 복제 및 초인종 메타 분석
한국인, 남아시아인, 아프리카인, 유럽인, 히스패닉인, 마그레비아인을 포함한 여러 모집단에서 9개의 후보 SNP에 대한 복제가 수행되었습니다(표 1). P < 0.05/9="5.55E–03의" 값은="" 유의한="" 것으로="" 간주되었습니다.="" nphs1-kirrel2="" 영역의="" 게놈="" 전반에="" 걸친="" 유의미한="" 신호는="" 한국어로="" 복제되었습니다(rs2285450,="" p="1.32E-05," or="1.98," rs412175,="" p="3.55E-05," or="1.91," 1,="" 1,1,="" p20739).="" 04,="" or="2.09," rs56117924,="" p="4.19E–04," or="1.70" 및="" rs404299,="" p="4.99E–04," or="1.88)," 남아시아(중서부="" 소아="" 신장학="" 42,="" 9="" mwrspnc4]="" 컨소시엄="" e–="" 12,="" or="2.95," rs2285450,="" p="1.27E–" 04,="" or="3.31," rs2073901,="" p="1.49E–04," or="">
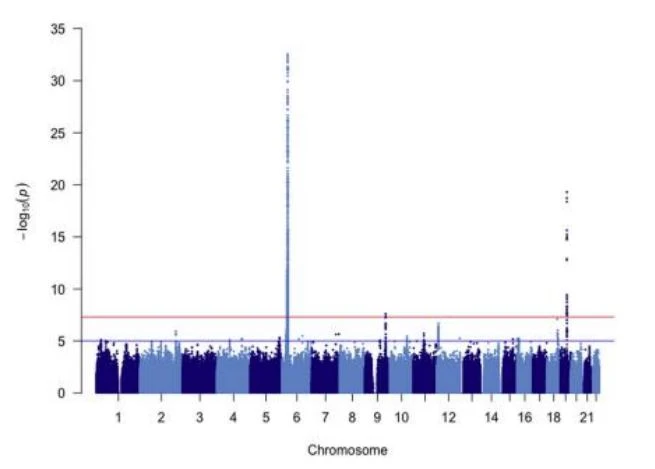
그림 2| 발견 게놈 전체 협회 연구의 맨해튼 플롯. 발견 단계에서 아동기 스테로이드에 민감한 987명의 환자신증후군및 6,834,340개의 상염색체 단일 뉴클레오티드 변이체 및 전체 게놈 대치 후 삽입 및 결실이 있는 3206개의 건강한 성인 대조군이 포함되었습니다. P 값은 로지스틱 회귀를 사용하고 성별 및 주성분 1-4를 조정하여 계산되었습니다.
rs412175, P=2.77E–{17}}4, OR=2.39), 아프리카(MWPNC) 데이터세트(rs56117924, P=3.2{30}}E–05, OR=1.76) TNFSF15 영역의 후보 SNP는 한국(rs6478109, P=1.09E–05, OR=0.65) 및 아프리카(MWPNC) 데이터 세트(rs4979462, P=1.36E–03, OR=1.47)에서 복제되었습니다. TNFRSF11A 영역의 연관성은 남아시아인(MWPNC)에서 복제되었습니다(rs8086340, P=4.66E–05, OR=0.53). 9개의 후보 SNP 중 어느 것도 여러 번 수정한 후 유럽, 히스패닉(MWPNC) 또는 아프리카 또는 마그레브(둘 모두 NEPHROVIR) 코호트에서 통계적 유의성을 달성하지 못했습니다. 복제 단계에서 중간 정도의 연관성을 감지하기 위한 제한된 전력을 고려해야 합니다(보충 표 S4).
발견 및 복제 샘플 세트를 포함한 9개 SNP의 초민족적 메타 분석, NPHS{2}}KIRREL2(rs2285450, 메타 분석의 P-값 [Pmeta]=6.71E–28, OR=1.88)의 유의미한 연관성을 확인했습니다. ; rs2073901, Pmeta=1.03E–20, OR=2.04) 및 TNFSF15 영역(rs4979462, Pmeta=5.40E–11, OR=1.33)이지만, TNFRSF11A 유전자좌에는 포함되지 않습니다(표 2).
발견 단계의 유전자 기반 분석
유전자 기반 테스트에서 6,834,340 상염색체 변이체가 18,644개의 단백질 코딩 유전자에 매핑되었습니다. 71개의 유전자가 게놈 전체의 의미를 달성했습니다(P < 0.05/18,644="">
2.68E–06) (보충 그림 S8, 보충
표 S5). NPHS1(유전자 기반 분석[Pgene]=6.29E-18의 P 값) 및 KIRREL2(Pgene=7.79E-14)는 HLA 영역 외부의 질병과 가장 중요한 연관성을 나타냈습니다. 유전자 세트 분석에서 주요 조직적합성 복합체 클래스 II 단백질 복합체(P-값은 Bonferroni의 방법[P-Bonferroni]=1.22E–03, Beta=1.50에 의해 수정됨), 주요 조직적합성 복합 클래스 II 수용체 활성(P-Bonferroni=6.17E–03, 베타=1.61), 막의 내강측(P-Bonferroni=1.97E–02, 베타=0.75) 및 선천 면역 반응(P-Bonferroni=1.97) E–02, 베타=0.17)은 질병과 유의하게 연관되었습니다(보충 표 S6 및 S7).

CISTANCHE 신장 질환 치료
NPHS{1}}KIRREL2 유전자좌의 GWAS 이후 분석
NPHS1이 HLA 영역 다음으로 가장 중요한 피크였다는 점을 감안할 때, NPHS1과 KIRREL2는 족세포 생물학에서 중요한 역할을 하고 NPHS1은 가장 흔한 멘델식 중 하나입니다.신증후군유전자에서, 우리는 이 유전자좌(19q13.12; 36.2–36.6 Mb)의 위험 변이에 대한 GWAS 이후 분석에 집중했습니다. mRNA에 대한 DNA의 생물학적 근접성과 NEPTUNE(신 증후군 연구 네트워크) 연구 참가자의 기존 쌍을 이루는 게놈 및 생검 유래 신장 전사체 데이터의 가용성을 감안할 때, 20,21 우리는 위험 대립 유전자 사이의 관계를 조사하기로 선택했습니다. 이 유전자좌 및 국소 mRNA 발현.
We first tested the hypothesis that these risk SNPs altered expression of nearby genes as a cis expression quantitative trait locus (eQTL). However, there was no strong evidence that there were significant eQTLs for NPHS1 or KIRREL2 in the kidney or other tissues (Supplementary Table S8). We also found it to be unlikely that the 2 synonymous variants (rs2285450, c.294 C>T; rs2073901, c.2223C>T) NPHS1에서 RNAsnp Web Server를 사용하여 2차 구조에 영향을 미쳤습니다. 그런 다음 우리는 NPHS1 전사 조절에 대한 염색체 19, 5-SNP 위험 일배체형의 영향을 연구하는 데 관심을 돌렸습니다. 이를 위해 NPHS1을 비교했습니다. 전체 위험 일배체형이 없는 183명의 참가자와 함께 전체 5개 NPHS1 위험 일배체형을 보유한 4명의 NEPTUNE 참가자의 발현. 위험 일배체형을 가진 4명의 참가자는 NPHS1 발현에 유의한 차이가 없었습니다(Wilcoxon 테스트 P=0.39, 그림 4a). 이 위험 일배체형이 사구체 NPHS1에 대한 eQTL을 가지고 있다는 증거가 없기 때문에, 우리는 위험 일배체형에서 파생된 NPHS1 전사체가 참조 일배체형(대립유전자 특이적 발현[ASE])의 전사체와 다르게 발현될 것이라고 가정했습니다. 염증성 장 질환, 자폐 스펙트럼 장애 및 알코올 사용 장애를 포함한 질병에 대한 감수성과 관련이 있는 것으로 보고되었습니다. 각 염색체 j{17}}.5 – (일배체형 A/총 개수)j에서 예상되는 1:1 발현 비율과의 편차 정도입니다. 위험 일배체형이 있는 환자에서 일배체형 A는 5개의 NPHS1 위험 변이를 모두 보유합니다. 위험 일배체형이 없는 환자에서 일배체형 A는 2개의 일배체형 중 하나에서 무작위로 선택되었습니다. 의 현저히 낮은 표현을 발견했습니다.위험 일배체형의 NPHS1 전사체(표 3). 4개의 위험 일배체형 샘플에서 ASE의 크기는 0.14, 0.21, 0.22 및 0.22인 반면, 다른 샘플의 중앙값은 183명의 환자는 0.{14}}3(사분위수 범위: 0.01–0.05, ASE 차이에 대한 Wilcoxon 테스트, P=9.3E–4, 그림 4b)입니다.
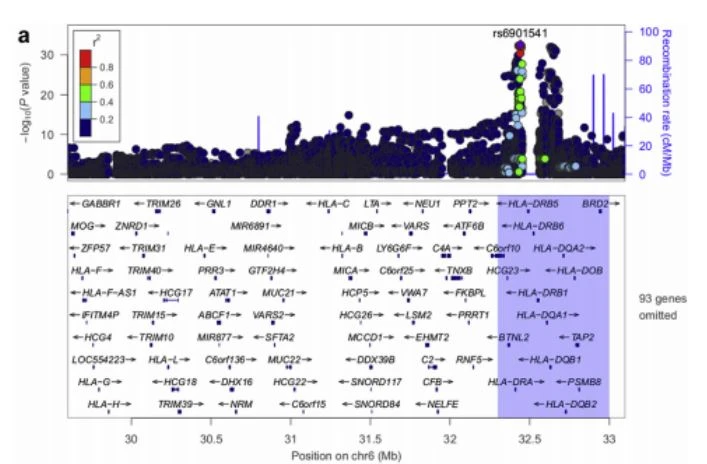
그림 3| 발견 단계에서 전체 게놈 의미(P < 5e-08)="" 또는="" 한계="" 게놈="" 전체="" 의미를="" 갖는="" 유전자좌의="" 지역="" 플롯.="" (a)="" 염색체(chr)="" 6의="" 고전적인="" hla="" 영역이="" 가장="" 중요한="" 연관성을="" 나타냈다(p="2.80E–33)." (b)="" chr="" 19(p="4.94E–20)에서" 게놈="" 전체에="" 유의미한="" 후보="" 유전자좌.="">
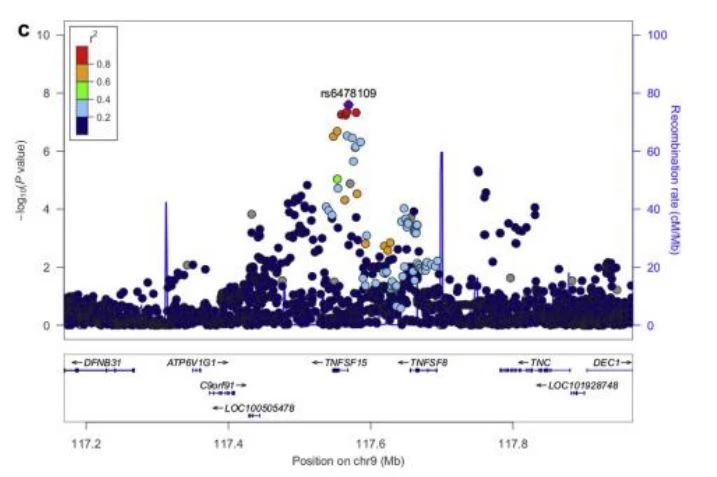
그림 3| (계속) (c) chr 9(P=2.54E–08)에서 게놈 전반에 걸쳐 의미가 있는 후보 유전자좌. (d) chr 18(P=7.68E-08)에서 게놈 전체에 걸쳐 유의미한 후보 유전자좌.
HLA 미세 매핑
본 연구의 HLA 연관 분석은 더 중요한 P 값으로 이전 결과를 확인했습니다. HLA 미세 매핑의 세부 사항은 보충 표 S9–S20 및 보충 그림 S9A–G)에 나와 있습니다. HLA-DRB1*{{5{55}}}}8:{71}}2– DQB1*03:02가 가장 유의한 감수성 일배체형이었습니다(수정된 P-값[Pc]=1.16E–22, 또는 ¼ 3.38), HLA-DRB1*08:02(Pc=2.60E–22, OR=2.66) 또는 HLA-DQB1*03:02(Pc=2.59E–10, OR=1.71)보다 더 중요하고 강력한 연관성이 있습니다. 홀로. HLA-DRB1*13:02–DQB1*06:04는 가장 중요한 보호 일배체형이었습니다(Pc=1.63E–16, OR=0.18). 사례 그룹의 한 개인(870명 중 1명=0.11%)과 15명의 건강한 대조군(2903명 중 15명=0.52%)은 감수성 일배체형(HLA-DRB1*08:02–DQB1*03:02) 및 보호 일배체형(HLA-DRB1*13:02–DQB1*06:04)은 차이가 통계적으로 유의하지 않았지만(P=0.14, 보충 표 S20) 감수성 일배체형에 대한 보호 일배체형의 지배적인 효과를 시사합니다.

CISTANCHE 신장 질환 치료


