
폐색된 신장에서 Tlr8과 이의 내인성 리간드 MiR-21 사이의 상호작용을 통한 발세포 손상
Mar 30, 2022
연락하다:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791

만성 신장 질환은 성인에서 만연한 반면, 폐쇄성 신병증(ON)은 젊은 환자와 노인 환자 모두에서 보고되었습니다. ON에서 tubulointerstitial lesions(TILs)는 광범위하게 조사되었지만 사구체 병변(GLs)은 크게 무시되었습니다. 여기에서 우리는 젊고 오래된 쥐에서 ON에서 GL 발달의 기초가 되는 새로운 메커니즘을 보여줍니다. TIL은 세뇨관 간질의 염증 세포 침윤으로 인해 GL보다 먼저 발생하지만 GL은 사구체에 침윤하는 염증 세포가 없음에도 불구하고 Toll-like receptor 8(Tlr8)의 활성화 후에 발생합니다. TLR8 및 인터루킨 1 베타(IL1b) 단백질은 감소하는 족세포 기능 마커(PFM)와 함께 국소화되어 손상된 족세포에서 TLR8 신호전달의 활성화를 나타냅니다. 또한, Tlr8에 대한 내인성 리간드인 miR-21의 사구체 및 혈청 수준은 sham 대조군보다 ON 마우스 모델에서 더 높았다. Tlr8의 사구체 발현은 miR{10}} 및 다운스트림 사이토카인 Il1b 및 Il6과 양의 상관관계가 있고 PFM(Nphs1 및 Synpo)과 음의 상관관계가 있습니다. 우리는 또한 폐쇄 및서로 나란한신장젊고 늙은 쥐의. 또한, 시험관 내 연구 결과는 폐쇄된 사구체에서 Tlr8 및 그 다운스트림 사이토카인의 더 높은 발현을 보여주었습니다.신장대조군보다 miR{0}} 모방으로 처리한 후. 결론적으로, Tlr8의 과발현은 족세포 손상을 통한 ON에서 GL 발달의 기초가 되는 그럴듯한 기전으로 작용할 수 있습니다.
키워드: 만성신장질환,폐쇄성 신병증, 족세포, TLR8, 폐쇄성 및 측부 신장
소개
만성 신장 질환(CKD)주요 공중 보건 문제인 이 질환은 일반 인구의 8~13%에서 널리 퍼져 있습니다(1). 고령화 사회로 인해 노인들에게 많이 발생합니다. 폐쇄성 신병증(ON)은 다양한 연령 그룹의 환자에서 보고되었기 때문에 임상의에게 큰 관심을 끌고 있습니다. ON은 다른 CKD와 달리 치료 및 가역성입니다(2, 3). 어린이의 경우 15명의{14}}{16}} 젊은 개인 중 한 명에게서 발생하며, 선진국에서는 유병률이 1~5%로 높습니다(4, 5). 성인에서 ON의 유병률은 1000명당 5명에서 10000명당 5명까지입니다. 또한, 만성 편측 ON의 유병률은 약 0.5%인 반면, 급성 편측 및 만성 양측 ON의 유병률은 약 0.1%(4-7)입니다.
ON은 3개월 이상 지속되는 신장 기능의 점진적인 감소 및 신장 구조의 변경을 포함하는 급성 신장 손상 또는 CKD로 이어질 수 있습니다(8, 9). 일측성 요관 폐쇄(UUO)는 만성 ON을 연구하기 위해 널리 사용되는 전략입니다. UUO 신장에서 ON은 비대, 수신증, 간질 영역의 염증 세포 동원, 저산소증으로 인한 세뇨관 세포 사멸, 세뇨관 간질 내 콜라겐 침착, 이어서 세뇨관 간질 섬유증(TF)의 발생이 특징입니다(10).
TF는 말기 신장 질환의 중요한 특징이며 진행성 신장 손상의 주요 결정 요인입니다(11). TF는 ON 모델에서 광범위하게 조사되었지만 사구체 손상, 특히 혈액-소변 장벽(BUB) 이상에 관한 데이터는 부족합니다(8, 9, 12). 또한 연구에서 편측 ON에서 측부 신장의 세뇨관 간질 병변(TIL)을 조사했지만 사구체 병변(GL)은 크게 무시되었습니다(12). 여러 보고서에서 실험적 ON에서 TIL의 진행에 세뇨관 주위 모세혈관이 관여함을 밝혔습니다(13, 14). 그러나 사구체와 사구체 모세혈관은 각각 네프론과 세뇨관 주위 모세혈관의 세관 분절로 배출됩니다. 따라서 우리는 사구체신염이 세뇨관간질에도 영향을 줄 수 있다고 제안합니다. 우리의 이전 연구는 사구체 내재 세포, 주로 족세포에 대한 손상이 GL에 대한 기여와 다양한 Toll-유사 수용체(TLR)의 과발현으로 인한 자가면역 질환 마우스 모델에서 후속 TIL 발달을 강조했습니다(15-18).
사구체 모세혈관 내피와 족세포는 BUB를 구성하는 중요한 문지기입니다. 이 두 상피 사이에서 족세포는 사구체에 고유한 위치에 있기 때문에 DAMP(위험 관련 분자 패턴) 또는 PAMP(병원체 관련 분자 패턴)와 같은 TLR 리간드를 포함한 위험 신호에 지속적으로 노출됩니다(15). 따라서, 족세포의 TLR과 이들의 내인성 리간드 사이의 상호작용은 비감염성 조건에서 족세포 손상에 기여하는 것으로 생각된다. 현재 연구에서 우리는 젊고 나이든 인간 모두에서 ON이 자주 발견되기 때문에 젊고 늙은 쥐의 폐색된 신장과 측부 신장 모두에서 GL 발달에 초점을 맞췄습니다. 우리는 GL이 어린 쥐와 늙은 쥐의 폐색된 신장과 측부 신장의 족세포에서 Tlr8의 과발현을 통한 족세포 손상으로 인해 ON에서 개발되었음을 명확히 했습니다.

재료 및 방법
윤리 선언문 및 실험 동물 사육 실험 동물을 사용한 모든 실험은 홋카이도 대학 수의학부의 기관 동물 관리 및 사용 위원회의 승인을 받았습니다(승인 번호 16- 0124). 저자는 홋카이도 대학 수의학부의 실험 동물 관리 및 사용에 대한 승인된 가이드를 따랐습니다(국제 실험 동물 관리 평가 및 인증 협회 승인). 6주령 C57BL/6N 마우스는 Japan SLC Inc.(Hamamatsu, Japan)에서 구입하여 1:1 명암 환경에서 특정 병원체 없는 조건에서 유지했습니다. 실험 동물에게는 음식과 식수가 임의로 제공되었습니다.
실험 설계 우리는 어린(9주) 쥐와 늙은(12개월) 쥐를 모두 사용했습니다. 이전 연구에서 설명한 대로 각 연령 그룹(n=4)의 마우스에 가짜 수술(대조군) 또는 UUO(2, 7, 11 및 21일)를 적용하여 ON 모델 신장을 설정했습니다. (13).
샘플 준비 마우스를 이전에 설명한 대로 마취제의 혼합물로 깊이 마취하고(16) 경추 탈구로 안락사했습니다. 혈청 마커 분석을 위해 대퇴 동맥을 통해 혈액 샘플을 수집했습니다. UUO와 측부 신장을 모두 수집하여 얇은 조각으로 자릅니다. 조직 병리학, 면역 조직 화학 및 전자 현미경 연구를 위해 신장 조각을 각각 10% 중성 완충 포르말린(NBF), 4% 파라포름알데히드(PFA) 및 2.5% 글루타르알데히드(GTA)로 고정했습니다.
면역조직화학 및 면역형광 NBF로 고정된 파라핀 블록을 2mm 두께로 절단하고 과요오드산 Schiff-hematoxylin(PAS-H)으로 염색하여 신장 조직병리학을 검사했습니다. B 세포(B220), T 세포(CD3), 모세혈관 내피(CD31), IL1b, 대식세포(Iba1), 족세포(포도신 및 시냅토포딘) 및 TLR8에 대해 이전에 보고된 바와 같이 세포 마커의 면역검출을 수행했습니다(16). 염색 조건은 표 1에 나와 있습니다.
조직평면측정법 PAS-H 및 면역염색된 신장 절편을 Nano Zoomer 2.{2}} RS(Hamamatsu Photonics Co., Ltd., Hamamatsu, Japan)를 사용하여 가상 슬라이드로 변환했습니다. 양성 세포는 NDP.view2 소프트웨어(Hamamatsu Photonics Co., Ltd.)를 사용하여 400배 배율로 세뇨관 간질에서 무작위로 선택된 20개의 사구체 또는 20개의 병소에서 계수되었습니다. 올인원 형광 현미경 BZ-X710(Keyence, Osaka, Japan)을 사용하여 각 마우스에서 PAS-H 염색 섹션의 20개 사구체 이미지도 400x로 캡처했습니다. BZ-X Analyzer(Keyence)를 사용하여 캡처한 이미지에서 사구체 간질 영역과 크기를 측정했습니다.
RNA 추출 및 배양을 위한 사구체의 분리 가짜 수술 및 UUO 신장에서 사구체를 이전에 설명한 대로 분리했습니다(16). 간단히 말해서, 마우스를 Dynabeads(8 × 10⁷; Life Technologies, Carlsbad, CA, USA)를 포함하는 40mL의 Hank's 균형 염 용액(HBSS)으로 좌심실을 깊이 마취하고 관류했습니다. 신장이 절제되었다

그리고 작은 조각으로 잘게 썬다. 그런 다음 세포를 37도에서 30분 동안 HBSS에서 콜라게나제 A(1mg/mL; Roche, Basel, Switzerland) 및 데옥시리보뉴클레아제 I(100U/ml; Life Technologies)로 분해했습니다. 소화된 조직을 포함하는 현탁액을 평평한 유봉을 사용하여 100-mm 세포 여과기(BD Falcon, Franklin Lakes, NJ, USA)를 통해 부드럽게 압착했습니다. 생성된 세포 현탁액을 200 xg에서 5분 동안 원심분리하고, 세포 펠렛을 2 ml의 HBSS에 재현탁시켰다. Dynabeads를 포함하는 사구체를 자성 입자 농축기(Life Technologies)를 사용하여 수집하고 RNA 분리에 사용했습니다.
역전사 및 Real-Time PCR총 RNA는 RNeasy 키트(Qiagen, Hilden, Germany)를 사용하여 사구체로부터 분리되었습니다. cDNA는 ReverTra Ace 역전사 효소(Toyobo, Osaka, Japan) 및 무작위 dT 프라이머(Promega)를 사용하여 역전사하여 전체 RNA로부터 합성되었습니다. cDNA는 Brilliant III SYBR Green QPCR 마스터 믹스 및 Mx3000P(Agilent Technologies, La Jolla, CA, USA)를 사용한 실시간 PCR에 사용되었습니다. 사구체 유전자 발현은 Actb의 발현으로 정규화되었습니다. 사용된 프라이머 쌍은 표 2에 나와 있습니다.
역전사 및 TaqMan 기반 Real-Time PCR분리된 사구체에서 microRNA(miRNA)를 포함한 총 RNA는 miRNeasy kit(Qiagen)를 사용하여 분리되었습니다. miRNA 특이적 줄기 루프 RT 프라이머, 역전사효소, 역전사 완충액, dNTP 및 RNase 억제제를 사용하여 제조업체의 지침(Applied Biosystems, Foster City, CA, USA)에 따라 총 RNA를 역전사했습니다. miR{3}} 특이적 TaqMan 프라이머 및 특이적 프로브(Applied Biosystems), TaqMan Universal PCR Master Mix(Applied Biosystems) 및 Mx3000P(Agilent Technologies)를 사용하여 생성된 cDNA로 실시간 PCR을 수행했습니다.
모방체를 이용한 분리된 사구체의 시험관내 치료사구체는 가짜 수술 및 UUO에서 분리되었습니다.신장방해 11일 후. 300개의 사구체를 포함하는 Roswell Park Memorial Institute-1640(RPMI{2}}) 배지(Fujifilm Wako, 일본)를 96-웰 배양 플레이트(TPP, Trasadingen, Switzerland)의 각 웰에 분배하고 PBS, 음성 대조군 및 miR{5}} 모방체(UAG CUU AUC AGA CUG AUG UUG A)(Bioneer, 대전, 대한민국)로 4시간 동안 37도, 5% CO2로 처리했습니다. Tlr8 및 이의 다운스트림 사이토카인의 발현은 이전 섹션에서 설명한 대로 측정되었습니다.

주사 전자 현미경일상적인 주사전자현미경(SEM)의 경우, 작은신장 조각2.5% GTA로 4시간 고정하고 1% osmium tetroxide로 1시간 후고정한 후 1% tannic acid로 1시간 처리하였다. 그런 다음 샘플을 1% 사산화 오스뮴으로 1시간 동안 고정하고 0.5% 및 1% 탄닌산으로 각각 10분 및 1시간 동안 처리했습니다.신장조각오름차순의 알코올로 탈수하고 3-메틸 부틸 아세테이트로 옮기고 최종적으로 HCP{1}} 임계점 건조기(Hitachi, Tokyo, Japan)로 건조했습니다. 시편을 이온 스퍼터링 처리한 다음 12kV의 가속 전압에서 S{2}} 주사 전자 현미경으로 검사했습니다.
통계 분석값은 평균 ± 표준 오차(se)로 표시됩니다. 결과는 비모수 Mann–Whitney U-검정을 사용하여 통계적으로 분석되었습니다(P < 0.05).="" kruskal-wallis="" 검정은="" 3개="" 이상의="" 모집단을="" 비교하는="" 데="" 사용되었으며="" 유의한="" 차이가="" 관찰되면="" scheffe의="" 방법을="" 사용하여="" 다중="" 비교를="" 수행했습니다(p="">< 0.05).="" 두="" 매개변수="" 간의="" 상관관계는="" spearman의="" 순위="" 상관="" 계수="" 검정을="" 사용하여="" 분석되었습니다(p=""><>
결과
어린 마우스의 폐색된 신장에서 TIL 및 GL우리는 먼저 다른 기간 동안 폐색을 받은 어린 마우스의 가짜 수술 및 UUO 신장에서 TIL과 GL을 조사했습니다. 가짜 수술 신장은 정상적인 세뇨관 간질을 나타내었지만(그림 1A), UUO 2일 후 폐색된 신장은 TIL을 보여 세뇨관의 확장을 특징으로 했습니다. 일부 세관에는 요괴도 포함되어 있습니다. 이러한 병변은 폐쇄가 진행됨에 따라 증가했습니다(그림 1A). 주로 사구체 경화증인 GL은 UUO 후 21일에 후기 단계에서 관찰되었으며 과요오드산-Schiff(PAS) 양성 물질의 침착을 특징으로 합니다. 사구체 구조는 가짜 및 초기 UUO 신장(2, 7, 11일) 모두에서 정상이었습니다(그림 1B). 사구체 세포의 수는 폐쇄 후 날까지 증가하는 경향이 있었고{13} UUO 신장에서{13}} 감소하는 경향이 있었습니다(그림 1C). 사구체 간질 축적은 폐색 후 7일부터 증가하는 경향이 있었습니다(그림 1D).

폐색 후 21일에 UUO 신장의 사구체 중앙에 결석했습니다(그림 1F). 중합효소 연쇄 반응은 폐쇄 21일 후 UUO 신장에서 PFM(Nphs1 및 Synpo)의 상당한 감소를 나타냈습니다(그림 1G). 더욱이, SEM 분석은 가짜 수술 신장에서 정상적인 족세포 발 돌기(PFP)를 나타냈다. 그러나 PFP 소실 및 미세 융모 유사 구조는 폐쇄 21일 후 UUO 신장에서 보고되었습니다(그림 1H). 함께, 이러한 결과는 폐쇄 21일 후에 폐쇄된 신장에서 족세포 손상의 발생을 시사합니다.
폐색된 신장에는 침윤성 면역 세포가 없음 우리는 이전에 족세포 손상이 사구체의 침윤성 면역 세포와 상관관계가 있음을 보여주었습니다(13, 16, 18). 따라서 우리는 가짜 수술 및 UUO 신장의 TIL 및 GL에서 B 세포 및 T 세포뿐만 아니라 대식세포의 침투를 조사했습니다(그림 2). 수많은 침투 B-, T-세포 및 대식세포가 폐쇄 후 하루 종일 UUO 신장의 TIL에서 관찰되었지만 가짜 및 UUO 신장의 사구체에서는 거의 없거나 거의 없었습니다(그림 2A-E). B-, T-세포 및 대식세포의 수는 사구체에서 매우 적었지만(데이터는 표시되지 않음)


가짜 신장과 비교한 2-, 7-, 11- 및 21-일 신장의 세뇨관 간질(그림 2F). 따라서 면역 세포에 침투하면 폐색된 신장에서 TIL의 발달에 기여할 수 있습니다. 그러나 다른 요소가 GL 개발과 관련될 수 있습니다.
어린 마우스의 가짜 수술 및 폐색된 신장에서 TLR 패밀리의 다른 구성원 및 다운스트림 사이토카인의 발현 이전 연구에서는 병든 신장의 족세포에서 다른 TLR의 더 높은 발현이 밝혀졌습니다(15, 16, 19, 20). 흥미롭게도, 우리의 데이터는 가짜 그룹의 사구체에서보다 UUO 21-일 그룹에서 분리된 사구체에서 Tlr8 및 Tlr9의 상당히 더 높은 발현을 보여주었습니다(그림 3A). 또한, 우리는 가짜 및 UUO{9}}일 그룹의 사구체에서 TLR 계열 구성원의 다운스트림 사이토카인 발현을 조사한 결과 인터루킨 1 베타(Il1b)와 인터루킨 6을 인코딩하는 유전자의 발현에서 상당한 상향 조절을 발견했습니다. (Il6) UUO 그룹과 가짜 그룹의 비교(그림 3B).
PFM과 함께 국소화된 TLR8 폐색된 신장에서 분리된 사구체에서 Tlr8 및 Tlr9의 발현이 높기 때문에 면역형광 염색을 통해 이들의 국소화를 조사했습니다. TLR8 단백질은 가짜 수술 신장에서 검출되지 않았지만(그림 4A)UUO 신장에서 PFM 시냅토포딘과 함께 국소화되었습니다(그림 4B). 또한, 우리는 가짜 수술 또는 UUO 마우스의 신장에서 TLR9 단백질 발현을 감지하지 못했습니다(데이터는 표시되지 않음).
어린 마우스의 폐색된 신장의 족세포로부터의 IL1b 생산 도 3B에 나타낸 바와 같이, 사구체 Il1b(TLR 패밀리의 다운스트림 사이토카인)의 발현은 21일째에 가짜 신장에서보다 UUO 신장에서 상당히 더 높았다. 따라서 우리는 면역형광 염색을 통해 UUO 신장의 사구체에서 IL1b의 출처를 조사했습니다. IL1b 단백질 발현은 가짜 신장의 사구체에서 검출되지 않았지만 UUO 신장의 사구체에서 관찰되었다(도 4C, D). 또한, IL1b는 PFM 포도신과 함께 국소화되었습니다(그림 4D).


UUO에서신장가짜에서보다 21일에신장.따라서 우리는 면역형광 염색을 통해 UUO 신장의 사구체에서 IL1b의 출처를 조사했습니다. IL1b 단백질 발현은 가짜의 사구체에서 검출되지 않았습니다신장그러나 UUO의 사구체에서 관찰되었습니다.신장(그림 4C, D). 또한, IL1b는 PFM 포도신과 함께 국소화되었습니다(그림 4D).
ON 모델 마우스에서 추정되는 내인성 Tlr8 리간드의 수준 증가 이전 연구에서는 miR-21이 TLR8에 대한 리간드 역할을 하는 것으로 나타났습니다(21). 따라서 우리는 가짜 그룹과 UUO 21-일 그룹 간에 miR-21의 사구체 및 혈청 수준을 모두 비교했습니다. 흥미롭게도 UUO 21-day 그룹은 sham 그룹(P < 0.05)보다="" 사구체="" mir-21의="" 수치가="" 상당히="" 높았지만="" 혈청="" mir{="" {10}}은="" 후자보다="" 전자="" 그룹에서="" 관찰되었습니다(p="0.06)(그림">
Tlr8 발현과 그것의 리간드 miR-21 및 방해물에서 PFM의 상관관계신장표 3에 나타난 바와 같이, 우리는 Tlr8 mRNA의 사구체 발현과 이의 내인성 리간드(miR-21) 및 다운스트림 사이토카인 Il1b 및 Il6 사이에 상당한 양의 상관관계를 관찰했습니다. 반면, Tlr8 mRNA와 PFMs Nphs1 및 Synpo 사이에는 음의 상관관계가 분명했습니다.
miR{0}} Mimic을 사용한 사구체의 체외 자극은 Tlr8 및 그 다운스트림 사이토카인의 발현을 활성화하지만 Tlr8의 발현은 증가하는 경향이 있었습니다(P=0.{8}}6). 다운스트림 사이토카인(Ifng 및 Il1b)은
PBS 및 음성 대조군 모방물로 처리된 마우스의 사구체에서와 비교하여 miR{0}} 모방물로 처리합니다(그림 5A). 그러나, 모방체로 처리한 후 가짜 마우스의 사구체에서 Tlr8의 발현과 이의 다운스트림 사이토카인 사이에 유의미한 상관관계가 관찰되지 않았다(표 4). Tlr8 및 그 다운스트림 사이토카인의 발현은 UUO의 사구체에서 상당히 더 높았다신장, UUO의 사구체에 있는 것보다 miR{0}} 모방으로 치료한 후신장PBS 및 음성 대조군 모방으로 처리되었습니다(그림5B). 모방체로 치료한 후 UUO 신장의 사구체에서 Tlr8의 발현과 그 다운스트림 사이토카인 사이에 유의미한 상관관계가 감지되었으며, 이는 Tlr{2}}매개 핵인자 카파 B(NF-kB) 경로 및 폐색된 신장에서 전염증성 사이토카인의 분비(표 4).


어린 마우스의 측부 신장에서 TLR8 국소화 및 족세포 손상가짜 수술 신장은 정상적인 사구체를 보인 반면 측부 신장은 사구체 비대, 사구체 세포 수 증가 및 사구체 모세 혈관 확장을 보였습니다 (그림 6A). 가짜 수술 신장의 사구체는 시냅토포딘 발현에 대해 양성이었고 TLR8 발현이 부족했습니다(그림 6B). 한편, 측부 신장은 사구체 중심에서 시냅토포딘 발현을 상실했지만 사구체 속도를 따라 TLR8 발현을 보였다(도 6C). 또한, TLR8 단백질은 시냅토포딘과 공동 국소화되었습니다(그림 6C). 가짜 수술 신장은 포도신의 정상적인 발현을 나타내었지만 사구체에서 IL1b의 발현은 나타내지 않았습니다(그림 6D). 그러나, 측부 신장 내의 사구체는 중심에서 포도신 발현을 상실했지만 사구체 속도를 따라 IL1b 발현을 가졌다(도 6E). 또한, IL1b 단백질은 포도신과 함께 국소화되었습니다(그림 6E). SEM 분석은 가짜 수술 마우스 신장에서 정상적인 PFP를 나타내었지만, PFP 소실 및 미세 융모 유사 구조는 측부 신장에서 볼 수 있었습니다(그림6F).
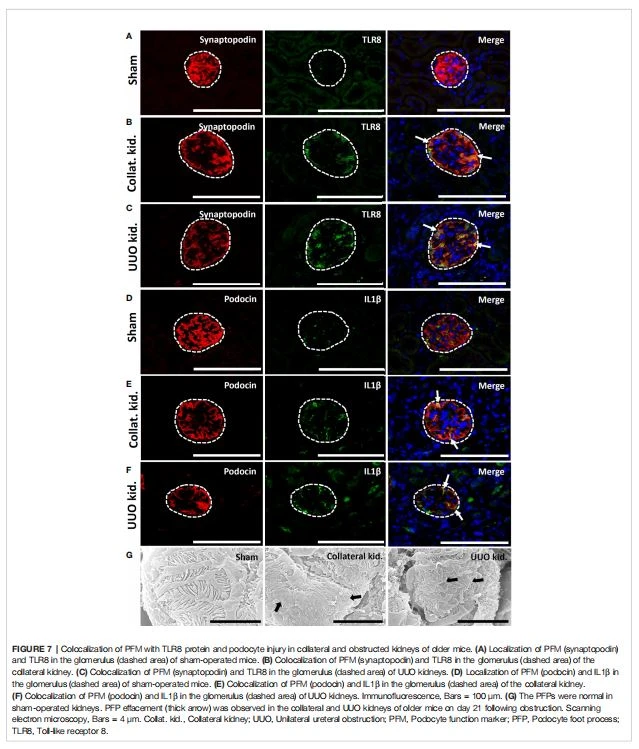
나이든 마우스의 폐쇄 및 측부 신장에서 TLR8 국소화 및 족세포 손상가짜 수술 신장은 시냅토포딘의 정상적인 발현을 나타내었지만 사구체 내에서 TLR8 단백질에 대한 염색을 나타내지 않았습니다(그림 7A). 흥미롭게도, 측부 및 UUO 신장 모두 사구체 중심에서 시냅토포딘 발현의 손실을 나타내었지만 사구체 망상을 따라 TLR8 발현을 유지했습니다(그림 7B, C). TLR8 단백질은 측부 및 UUO 신장에서 시냅토포딘과 함께 국소화되었다(도 7B, C). 가짜 수술 신장은 유사하게 정상적인 포도신 발현을 나타내었지만 사구체에서 IL1b 발현이 없었습니다(그림 7D). 한편, 측부 및 UUO 신장 모두 사구체 중심에서 포도신 발현을 상실했지만 사구체 망상을 따라 IL1b 발현을 나타냈다(도 7E, F). 양성 염색은 측부 및 UUO 신장의 사구체에서 포도신과 함께 국소화되는 것으로 밝혀졌다(도 7E, F). SEM 검사는 오래된 마우스의 측부 및 UUO 신장 모두에서 가짜 수술 마우스 신장, PFP 소실 및 미세 융모 유사 구조에서 정상적인 PFP를 밝혀냈습니다(그림 7G).
논의켜짐
유병률은 유아와 노인(4-7세)에서 일반적입니다. 따라서 우리는 젊고 오래된 쥐를 UUO에 적용하여 다양한 연령대의 개인의 ON 상태를 모방하고 TIL과 GL을 조사했습니다. 폐색된 신장에서 TIL의 진행은 폐색의 초기 단계(2일)에서 분명했습니다. 그러나 족세포 손상과 함께 GL의 진행은 후기 단계에서 관찰되었습니다. 측부 신장은 동시에 GL과 족세포 손상을 보였다. 이 관찰은 초기 손상이 다를 수 있지만 발세포 손상이 폐색된 신장과 측부 신장 모두에서 발생함을 나타냅니다. 우리의 이전 연구는 족세포 손상과 사구체의 면역 세포 침윤 사이의 상관 관계를 강조했습니다(13, 16, 18). 그러나 가짜 또는 폐쇄된 신장의 사구체로의 면역 세포 침윤은 본 연구에서 관찰되지 않았습니다. 따라서, 우리는 폐쇄된 신장에서 족세포 손상에 대한 다른 요인의 관련성을 고려했습니다. 우리는 순환 기원 또는 손상된 관 상피에서 발생하는 위험 신호(DAMP 또는 PAMP)가 사구체의 고유한 위치로 인해 ON에서 족세포 손상에 기여할 수 있다고 가정했습니다. 중요하게, DAMP와 TLR 사이의 상호작용은 비감염성 질병의 발병기전에서 중요한 역할을 하는 것으로 나타났습니다(15). TLR 계열의 다른 구성원은 세포 원형질막 또는 세포내 소포에서 발현되며(22) DAMP 또는 PAMP를 효율적으로 인식하는 타고난 면역 센서로 특징지어집니다. 상응하는 DAMP 또는 PAMP에 의해 활성화되면, TLR은 NF-kB 경로를 통해 다운스트림 사이토카인의 발현을 향상시키고 숙주 방어 시스템을 유도한다(22). 더욱이, DAMP는 조직 손상의 존재를 면역 세포 또는 국부 내재 세포에 전달하여 결과적으로 조직 손상을 악화시킵니다(23-26). 중요하게도, 모든 TLR은 염증성 사이토카인 유전자 배열의 발현을 제어하는 NF-kB 경로를 활성화합니다(27). 또한 TLR의 활성화는 염증을 담당하고 손상된 조직의 발병기전과 연결된 NF-kB를 활성화하기 위해 다운스트림 경로에 신호를 보냅니다(28). Shichitaet al. 허혈성 뇌 손상에 기여하는 내인성 리간드와 TLR2 또는 TLR4 사이의 병리학 적 상호 작용이 밝혀졌습니다 (25). 이전 연구에서는 TLR 계열 구성원이 신장(TLR2, 4, 5, 7, 11)과 GL(TLR1-6, 8, 9)에서 TIL을 유도하는 능력도 입증했습니다(17, 29-33 ). 현재 연구에서 우리는 폐쇄 및 측부 신장에서 족세포 손상을 발견하고


족세포 손상에 기여할 수 있는 TLR 계열의 다른 구성원의 역할(15, 16, 19, 20). 우리가 가정한 바와 같이, Tlr8 및 Tlr9의 사구체 발현은 가짜 수술 마우스에서보다 UUO 신장에서 분리된 사구체에서 더 높았다. 더욱이, Il1b 및 Il6을 포함하는 NF-kB 경로와 관련된 염증성 사이토카인의 사구체 발현은 폐쇄 후 21일에 UUO 신장에서 더 높았다. 따라서 우리는 TLR 매개 NF-kB 경로가 폐쇄성 신장에서 GL의 발병에 중요한 역할을 한다고 결론지었습니다. TLR 계열의 다른 구성원과 달리 TLR8 및 TLR9는 세포의 엔도솜에서 검출됩니다. TLR8은 미생물로부터 단일 가닥 RNA와 짧은 이중 가닥 RNA를 인식하고 여러 NF-kB 매개 사이토카인의 생산을 활성화합니다(22). 반면, TLR9는 이중 가닥 DNA를 인식하고 NF-kB 경로를 활성화하여 다운스트림 사이토카인을 생성합니다(16, 34). 이 연구에서 우리는 사구체에서 PFM 시냅토포딘과 함께 TLR8 단백질의 colocalization만을 인식했습니다. 우리의 이전 연구는 또한 TLR8과 TLR9가 모두 PFM과 함께 국소화되고 NF-kB 매개 염증성 사이토카인 생산을 활성화하여 족세포 손상을 유도하는 것으로 나타났습니다(15, 16). 또한, 다른 연구에서는 시험관 내에서 TLR 매개 경로와 족세포 손상 사이의 병리학적 상관 관계를 보여주었습니다(34, 35). Banas et al. 는 GL 발달 동안 족세포의 TLR4와 면역계의 상호작용을 밝혔습니다(35). 따라서 족세포는 TLR 매개 경로를 통해 면역 감시에 기여할 수 있습니다. 이 연구에서 우리는 폐색된 신장의 족세포에서 TLR8 유전자 발현과 단백질 국소화뿐만 아니라 사구체에서 다운스트림 사이토카인의 더 높은 발현을 보여주었습니다. 따라서 우리는 TLR 매개 경로가 폐색된 신장의 족세포 손상을 통해 GL 발달에 기여한다고 결론지었습니다.
이전 연구에서는 TLR8의 내인성 리간드인 miR{0}}이 세포 엔도솜에서 TLR8에 도달하여 결합할 수 있으며, 여기서 NFkB 경로의 TLR 매개 활성화 및 염증유발 사이토카인 분비를 유도할 수 있음을 보여주었습니다. (21). 본 연구에서 우리는 가짜 대조군보다 UUO 신장에서 사구체 miR-21와 혈청 miR{6}} 수치가 유의하게 더 높음을 발견했으며 Tlr8의 사구체 발현과의 상관 관계를 입증했습니다. . 흥미롭게도 miR{8}} 모방체로 처리된 UUO 신장의 사구체는 miR{10}} 모방체로 처리된 가짜 마우스의 사구체에 비해 Tlr8 및 그 다운스트림 사이토카인의 더 높은 발현을 보여 내인성 miR의 가용성이 증가했음을 나타냅니다. -21 폐색된 신장의 손상된 조직과 UUO 신장에서 Tlr8의 과발현 활성화는 가짜의 것과 비교됩니다. 함께 우리는 폐색된 신장에서 더 많은 양의 miR{13}}이 족세포의 엔도솜에 도달하고 NF-kB 경로의 Tlr 매개 활성화와 염증유발 사이토카인 분비를 유도한다는 결론을 내렸습니다. 이 사이토카인은 차례로 족세포 손상을 통해 GL 발달에 참여합니다.
IL1b는 질병 상태에서 사구체의 족세포에 의해 주로 생성되는 NF-kB-경로의 중요한 다운스트림 사이토카인 중 하나입니다. 이전 연구에서는 IL1b가 PFM을 감소시켜 족세포 손상을 유도하는 것으로 나타났습니다(36, 37). 본 연구에서 우리는 Il1b의 더 높은 사구체 발현과 감소된 발현을 나타내는 PFM과의 공동 국소화를 보여주었다. 더욱이, Il1b의 사구체 발현은 Tlr8과 상관관계가 있었고 PFM(Nphs1 및 Synpo)의 발현과 상관관계가 있는 경향이 있었다. 따라서, 이러한 결과는 Il1b 및 Il6을 포함하는 Tlr8의 하류 인자가 PFM 발현을 감소시켜 폐색된 신장에서 족세포 손상을 유발할 수 있음을 나타냅니다.
어린 쥐의 측부 신장에서도 GL과 PFM 손실이 나타났습니다. 이 결과는 측부 신장의 족세포 손상을 나타내는 SEM에 의해 확인되었다. 또한 ON 마우스 모델에서 더 높은 수준의 혈청 miR{0}}을 발견했습니다. 또한, IL1b 단백질은 PFM과 공동으로 국소화되었습니다. 이러한 결과는 혈청 miR-21이 측부 신장의 족세포에서 TLR8과 상호작용하고 다운스트림 사이토카인 생성을 활성화하여 차례로 족세포 기능과 족세포 손상을 감소시킨다는 것을 나타냅니다. 족세포 손상은 어린 쥐에서 관찰된 것과 유사한 메커니즘을 통해 늙은 쥐의 폐쇄된 신장 및 측부 신장에서도 관찰되었습니다.

결론적으로(그림 8), 사구체 miR-21 발현은 편측 요관 폐쇄 후 증가하며, 여기서 발세포에서 TLR8과 상호작용하고 NF-kB 경로의 활성화를 암시하는 다운스트림 사이토카인(Il1b 및 Il6)의 생산을 유도합니다. 더 높은 수준의 사이토카인은 PFM을 감소시켜 족세포 손상과 GL의 후속 발달을 초래합니다. 상승된 수준의 혈청 miR-21은 측부 신장의 족세포에서 TLR8을 활성화하고 족세포 손상을 통해 GL을 유도합니다. 따라서, 이 연구는 Tlr8 과발현에 따른 족세포 손상을 통한 폐쇄 및 측부 신장에서의 GL 발달을 명확하게 보여줍니다.