진드기 항원 발견 및 항진드기 백신 개발의 최근 발전 2부
May 09, 2023
2.4. Malpighian 관련 항원 후보
살아있는 유기체에서 50 -뉴클레오티다아제는 다양한 진드기 종에 널리 분포된 효소 그룹입니다. 진드기의 50 -뉴클레오티다아제와 척추동물에 존재하는 효소 사이에는 상당한 유사점이 있으며, 퓨린 회수 경로에 관여하는 것을 포함하여 다양한 추정 기능이 이러한 효소에 의해 수행됩니다[108]. 진드기 중에서 이 효소군은 장, 침샘, 난소와 같은 다양한 조직에서 발견됩니다.
그러나 그들은 Malpighian tubules, 특히 Malpighian tubules과 난소 세포의 표면에 가장 풍부합니다. 50 -뉴클레오티다아제의 특징은 이들이 항체의 잠재적 표적임을 나타냅니다[109]. Hopeet al. 50 -뉴클레오티다아제가 숙주 면역화에 관여할 가능성이 있는지 조사한 결과, 양에 재조합 50 -뉴클레오티다아제 단독 주입이 항-뉴클레오시다아제 항체에서 상당한 상향 조절을 일으켰다는 사실을 발견했습니다. 백신 개발[104].
그러나 같은 그룹의 연구자들이 소의 항원으로서의 기능을 분석한 결과 항체 수치의 상승은 없었다. 따라서 50 -뉴클레오티다아제는 백신 개발을 위한 항원으로 더 이상 조사되지 않았습니다. 그러나 다른 연구자 그룹이 수행한 최근 연구에 따르면 먹이를 준 후 O. erraticus에서 50 -nucleotidase/apyrase 생산 수준이 증가하는 것으로 나타났습니다[110]. 또한 그들은 재조합 아피라제 단백질로 숙주 면역화에 의해 아피라제 기능을 차단하면 O. moubata 진드기의 섭식을 크게 감소시킬 수 있으며 50 -뉴클레오티다제/아피라제가 항진드기 개발을 위한 잠재적으로 유망한 후보 항원임을 입증했습니다. 백신 [110,111].
뉴클레오티다아제는 뉴클레오타이드의 가수분해 반응을 촉매하여 뉴클레오타이드를 뉴클레오사이드와 무기 인산염으로 분해할 수 있는 효소입니다. 뉴클레오티드는 DNA와 RNA의 구성, 저장 및 전송, 에너지 전달 및 세포 신호 전달을 포함하여 유기체에서 중요한 생물학적 기능을 가지고 있습니다. 따라서 뉴클레오티다아제는 살아있는 유기체에서 중요한 역할을 합니다. 면역은 외부 환경에서 병원체에 저항하는 신체의 능력으로 면역 세포의 확장, 분화 및 조절을 포함한 다양한 생물학적 과정을 포함합니다. 여러 연구에서 뉴클레오티다제가 면역 체계의 기능과 그에 따른 면역에 영향을 줄 수 있음이 밝혀졌습니다.
예를 들어, 뉴클레오티다아제의 일부 변이체는 자가면역 질환의 발병과 관련이 있습니다. 또한, 뉴클레오티다제는 면역 세포의 증식 및 활성화에 영향을 미치고 면역 세포의 기능을 촉진할 수 있습니다. 따라서 뉴클레오티다아제와 면역 사이에는 일정한 관계가 있습니다. 이러한 관점에서 우리는 면역력 향상에 많은 관심을 기울여야 합니다. Cistanche는 면역력 향상에 상당한 효과가 있습니다. 고기 재에는 다당류, 두 버섯, 황 리 등과 같은 다양한 생물학적 활성 성분이 포함되어 있습니다. 이러한 성분은 면역 체계를 자극할 수 있습니다. 시스템의 다양한 유형의 세포는 면역 활동을 증가시킵니다.
2.5. 진드기-시멘트 관련 항원 후보
진드기 시멘트는 숙주에 부착된 직후 진드기 타액을 통해 숙주로 분비되는 글리콜과 지단백질의 혼합물이며 백신 개발을 위한 진드기 유래 항원의 귀중한 공급원입니다[112]. 진드기 입 부분을 숙주 피부에 부착시키는 것 외에도[113], 진드기 시멘트는 B. burgdorferi sensu lato(sl) 및 진드기 매개 뇌염 바이러스[114,115]의 저장소 역할을 하는 것으로 나타났습니다. 지금까지 진드기 감염 및 진드기 매개 질병을 통제하는 데 효과적인 것으로 밝혀진 진드기 시멘트에서 다양한 항원이 확인되고 특성화되었습니다.
Rhipicephalus appendiculatus의 침샘에서 분비되는 15kDa 시멘트 단백질인 64P(64TRPs)의 잘린 구조는 중장 및 침샘의 항원을 표적으로 하여 Rhipicephalus sanguineus 및 Ixodes ricinus에 대한 교차 보호를 보여 성인 진드기 및 약충에서 사망을 유발했습니다. 재조합 64P로 진드기에 노출되지 않은 숙주에 대한 백신접종은 약충 및 성충 감염의 수를 상당히 감소시켰고, 그 결과 약충 48%와 최대 70%의 성체 사망률이 발생했으며 충혈 중량 및 난량에도 약간의 영향을 미쳤습니다[116].
이러한 결과로부터 이 단백질은 광범위한 스펙트럼의 백신 항원이며 I. ricinus[100]를 포함하여 다른 진드기 종의 성체 및 미성숙 단계에 효과적인 것으로 보입니다. 이 시멘트 항원은 (i) 햄스터, 기니피그 및 토끼 모델에서 백신으로서 부착 및 섭식 장애를 유발하고 (ii) "숨겨진" 중장 항원과 교차 반응하여 궁극적으로 충혈된 진드기를 죽이는 이중 기능을 수행했습니다. [100,117]. 이 항원은 진드기 침입에 대한 반응으로 항체 역가를 높일 뿐만 아니라 다른 진드기 조직과의 교차 반응성을 가지고 있습니다. 따라서 "숨겨진" 항원과 "노출된" 항원의 이점을 결합합니다[118].
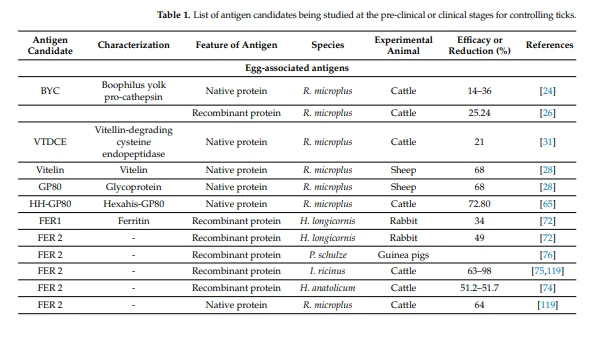

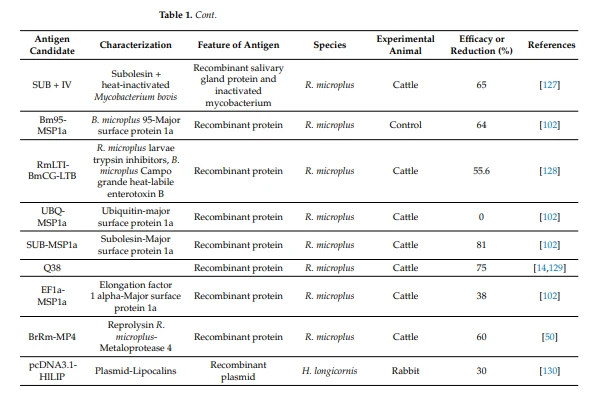
3. 진드기 예방 백신의 종류
진드기는 인간과 가축을 먹고 질병을 옮기는 가장 흔한 절지동물 기생충입니다[19]. 인수공통전염병은 인간에게 영향을 미치는 모든 전염병의 60% 이상을 차지하며, 이 감염의 22.8%는 진드기 매개체에 의해 전염되는 것으로 추정됩니다 [131]. 또한 가축에 영향을 미치는 진드기에 의해 매개되는 질병으로 인해 전 세계 축산업자들에게 막대한 경제적 손실이 있습니다[132,133].
따라서 사회경제적 부담을 줄이기 위해서는 진드기를 방제하는 것이 중요하다. 진드기가 상업적으로 이용 가능한 살비제에 대한 저항성을 발달시킬 수 있기 때문에 진드기의 제어가 어려워졌습니다[134-136]. 작업자, 식품 및 환경에 대한 살비제의 안전성에 대한 우려와 살비제 발견, 개발 및 마케팅과 관련된 비용 상승으로 인해 혁신적인 환경적으로 건전한 제어 기술이 필요합니다. 백신은 일반적으로 독성이 없고 오염이 없으며 화학 물질에 비해 저렴하기 때문에 살비제에 비해 많은 이점이 있습니다.

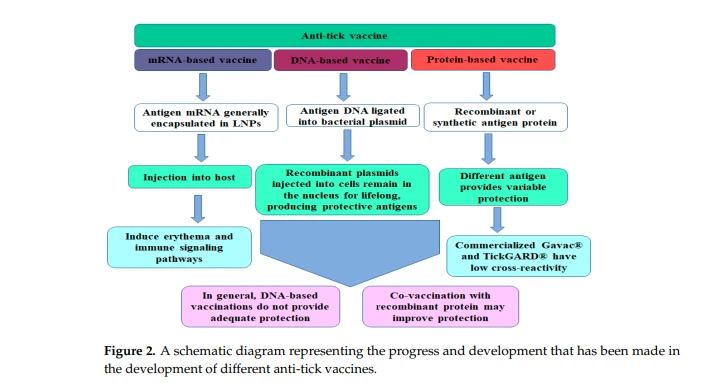
그러나 그들은 매우 종 특이적인 경향이 있습니다. 제약 산업은 숙주를 최대한 보호할 수 있고 여러 진드기 종에 대해 효과적인 백신을 개발하기 위한 연구를 지원하는 데 중요한 역할을 할 수 있습니다[133,137]. 백신 연구 프로그램이 여러 국가에서 진행 중이며 이 기사의 나머지 부분에서는 새로운 백신 기술의 진행 상황과 이미 사용 가능한 기술에 초점을 맞출 것입니다(그림 2).
화학적 적용과 마찬가지로 백신 내성을 무시할 수 없으며 시퀀싱 및 클로닝 절차를 사용하여 기존 백신을 수정하여 새로운 항원을 분리하거나 기존 항원을 변경하여 효능을 회복할 수 있습니다. 단일 항원 또는 항원 결정인자에 대한 내성 발생 위험을 줄이기 위해 단일 백신 제품에 관련되지 않은 두 개 이상의 항원을 포함하는 것도 가능합니다.
3.1. DNA 기반 항진드기 백신
DNA 백신의 발명과 그 사용으로 인해 안전성 문제가 제기되었습니다. 특히 유전 물질(DNA)을 체세포 또는 심지어 생식 세포로 안정적으로 형질 감염시킬 가능성이 있어 유전자 발현 및 돌연변이가 변경될 수 있습니다. Extrachromosomal plasmid-encoding luciferase vector는 근내 치료 후 19개월 이상 동안 골격근에서 검출될 수 있었다(138). 또한, 전기 천공 후 근육 주사는 전체 형질 감염률을 크게 증가시켰다. 임의의 위치에서 벡터 DNA의 염색체 통합은 형질감염률의 증가와 관련이 있습니다.139 이러한 연구에 따르면 통합 빈도는 자발적인 유전자 돌연변이의 수보다 훨씬 적습니다.
그러나 Manam et al. 다른 설치류의 골격근에 투여된 대부분의 플라스미드 DNA가 주사 부위에 남아 있음을 발견했습니다. 미미한 부분도 생식선에서 검출되었지만 게놈에 통합되지는 않았습니다(140). 영장류에서 luciferase를 암호화하는 리포터 벡터를 반복적으로 근육 내 적용하면 리포터가 장기간 발현되지만 항-DNA 항체는 유도되지 않습니다(141,142). 그럼에도 불구하고 DNA 백신과 관련된 앞서 언급한 추가 안전 문제는 임상 실습으로의 변환과 관련하여 고려되어야 한다는 점에 유의해야 합니다(143).
지난 20년 동안 다양한 연구자 그룹이 진드기 침입을 제어하기 위한 DNA 백신 개발에 집중했으며 지금까지 숙주를 면역화하기 위해 여러 DNA 백신이 도입되었습니다(130,144,145). 항원 단백질을 암호화하는 박테리아 플라스미드를 기반으로 하고 전사가 효율적인 진핵생물 프로모터에 의해 제어된다는 점에서 기존의 단백질 기반 백신과 다른 DNA 백신은 단순한 디자인, 높은 안정성 및 안전한 투여라는 장점을 가지고 있습니다(143 ].DNA 백신접종에서 주입된 플라스미드 DNA 분자는 적극적으로 핵에 들어가 에피솜 DNA로 평생 그곳에 남아 세포가 살아있는 한 지속적으로 보호 항원을 생성하는 것으로 생각된다(146). 높은 항체 역가는 DNA 백신 접종 동물에서 생체 내 T 세포에 대한 항원의 지속적인 합성, 처리 및 제시에 의해 해결될 수 있습니다.
더욱이 DNA 백신은 플라스미드 DNA만 포함하고 오염 단백질이 없기 때문에 여러 번 또는 반복적으로 백신 접종을 받아도 벡터 DNA에 대한 면역 반응이 나타나지 않을 가능성이 높습니다(147). 발현된 항원은 MHC 클래스 I 및 복합체에 의해 제시될 수 있으며, 이는 CD4 플러스 및 CD8 플러스 T 세포를 유도하여 각각 세포 및 체액 면역 반응을 자극할 수 있습니다(148].
증거는 De Rose 등의 연구에서 나왔습니다. [144], Merino 잡종 양을 DNA 백신을 사용하여 B. micro plus에 대해 면역화했습니다. Bm86의 전장 유전자 서열을 포함하는 플라스미드를 단독으로 또는 사이토카인, 과립구-대식세포 콜로니 자극 인자(GM-CSF) 또는 인터루킨(IL)에 대한 양 유전자를 운반하는 플라스미드와 함께 투여했을 때 -1베타는 이후의 진드기 침입에 대해 상대적으로 낮은 수준의 보호를 유도했습니다. 또한, Bm86 및 GM-CSF 플라스미드와의 동시 백신접종은 진드기의 번식력을 통계적으로 유의하게 감소시키는 결과를 가져왔습니다. Bm86 DNA 백신을 주사한 모든 그룹에서 Bm86에 대한 항체 역가가 낮았습니다. 또한, 말초 혈액 림프구의 낮은 수준의 항원 특이적인 자극이 이들 그룹에서 발생했습니다. 그러나 DNA 백신접종은 보조제에 재조합 Bm86 단백질을 한 번 주입한 후 강력한 후속 항체 반응을 일으켰습니다. 그러나 항체 생산은 재조합 단백질로 두 번 백신 접종한 것보다 약간 덜 효과적인 것으로 나타났습니다.
또한 많은 다른 연구자들이 진드기 침입에 대해 숙주를 면역화하는 DNA 기반 항원의 효능을 조사했습니다. 예를 들어, Sayed et al. [149] Argas persicus 달걀에서 DNA를 추출하여 200–800 µg DNA/kg 닭 체중으로 닭을 면역화하는 데 사용했습니다. DNA 면역 닭에 노출되었을 때 진드기의 먹이 성공률이 74.64%(50µg DNA/암탉 체중 kg) 및 89.39%(100µg DNA/암탉 체중 kg) 감소했기 때문에 결과는 지지적이었습니다. 또한, 저자는 DNA로 면역된 닭의 혈청이 A. 프레셔스의 장 단백질에 대해 활성을 갖는다고 보고했습니다. 그러나 다른 진드기 종을 사용한 추가 분석은 혈청 활성이 종 특이적임을 나타냅니다. 면역화된 닭 혈청의 전기영동 패턴은 진드기에 대한 닭의 면역 방어 발달에 관여하는 것으로 추정되는 3개의 새로운 단백질 밴드를 보여주었습니다[149]. 그 후 많은 연구가 항원 특이 DNA 백신 접종에 중점을 두었습니다. 그러나 보호 수준은 항원 유형에 따라 다릅니다. Plasmid pBMC2-암호화 항원 Bm86을 주입한 BALB/c 마우스는 Boophilus microplus에 대한 저항성을 나타냈습니다.

더 높은 용량의 백신 접종 유도 항-Bm86 항체 생성 및 더 높은 인터루킨(IL) 수준(IL-4, IL-5 및 IL-12(p40)) 및 pBMC2로 면역화된 마우스의 혈청에서 인터페론-감마(IFN-) 수준. pBMC2로 면역화된 마우스는 브로모데옥시우리딘의 혼입 및 IFNg 분비에 따라 비장세포의 항원-특이적 자극을 나타내었다. 가축에 이 백신을 적용하면 항체 생성이 발생하여 Bm86 DNA 백신접종이 B. micro plus[150]에 대해 강력한 면역 반응을 유도함을 시사합니다. 또 다른 연구에서는 토끼에서 H. longicornis(pcDNA3.1(plus)-Pmy)의 Paramyosin(Pmy)을 암호화하는 재조합 플라스미드에 의해 유도된 면역 보호를 평가했습니다. 토끼는 높은 수준의 IgG를 발생시켰고, 이는 체액성 면역 반응이 예방접종에 의해 유도됨을 시사합니다. 백신을 접종한 토끼를 먹은 일부 진드기(27.31%)가 죽은 반면, 나머지 진드기의 평균 충혈 중량과 암컷 성인의 산란은 각각 36% 및 39% 감소했습니다.
따라서 Pmy DNA 백신은 효과적인 체액성 면역 반응을 유도할 수 있는 것으로 보이지만 H. longicornis 감염으로부터 토끼를 부분적으로 보호합니다[151]. 흥미롭게도, CD4 플러스 및 CD8 플러스 세포독성 T 림프구 에피토프를 모두 포함하는 다중 에피토프 DNA 백신은 Ehrlichia ruminantium에 대해 실험실 조건에서 양을 100% 보호했습니다. 그러나 결과는 현장 조건에서 반복되지 않았습니다. 이 연구에서 근육 내 경로를 통한 MPL과 pLamp의 병용 투여는 국소 적용 외에도 기억 T 세포 반응의 활성화를 유도하여 진드기에 대해 최대 60%까지 양을 보호했습니다[152].
Salp14 및 리포칼린과 같은 몇 가지 다른 항원은 단독으로 또는 다른 항원과 함께 최근에 DNA 백신으로 평가되었으며, 이는 진드기에 대한 DNA 백신 개발의 희망을 더 제공합니다[130,153]. 진드기 감염 후 진드기에 물린 부위에서 salp14 DNA 백신 유발 홍반이 나타났습니다[153]. 마찬가지로 H. longicornis(HlLIP)의 LIP 상동체의 재조합 플라스미드 pcDNA3.1-HlLIP를 포함하는 리포칼린(LIP) 백신을 적용하여 토끼 숙주를 면역화했습니다. 이 적용은 숙주의 체액성 면역을 유도하고 H. longicornis의 충혈 중량, 산란 및 부화 가능성에도 영향을 미쳤지만 효능이 너무 낮아 이 항원이 숙주를 부분적으로 보호하기 때문에 백신에 적합하지 않음을 시사합니다[130 ].
마지막으로, DNA 백신 개발의 주요 목표는 체액성 면역 반응이 진드기 면역에서 중요한 역할을 하기 때문에 Th2 반응에 대한 숙주의 면역 반응을 양극화하는 방식으로 백신을 설계하는 것입니다. B. micro와 midgut 항원으로 백신을 접종한 소에서 Th2 세포에 의해 조절되는 특정 IgG1의 수준이 보호와 상관관계가 있는 것으로 밝혀졌습니다. 분비 신호 서열이 표적 유전자의 하류에 적절하게 배치된다면 표적 항원이 세포외 구획으로 분비되어 더 큰 체액성 면역 반응을 유도할 가능성이 있다. 또한 Th2 세포가 IL4 및 IL10과 같은 다른 면역 조절 유전자와 동시 감염되는 경우 Th2 세포의 선택이 선호될 가능성이 있습니다.
3.2. mRNA 백신
최근 몇 년 동안 항진드기 백신 개발에 사용할 수 있는 새로운 보호 항원을 발견하려는 많은 시도가 있었고 많은 개선이 이루어졌습니다. 백신 후보의 효능을 시험하기 위해, 재조합 단백질은 다른 단백질 또는 보조제와 결합되는지 여부에 관계없이 모델 유기체를 사용하여 효능을 시험하기 위한 플랫폼으로 선택되었습니다.
DNA 및 mRNA 백신 플랫폼을 쉽게 생성할 수 있기 때문에 최근 몇 년 동안 유전자(DNA 및 mRNA) 백신 플랫폼 사용에 상당한 발전이 있었습니다[130,145]. 진드기 타액 단백질 칵테일을 암호화하는 mRNA 백신은 기니피그에서 "진드기 면역"을 유도하여 라임병(borreliosis)의 원인 인자인 진드기 매개 Borrelia burgdorferi의 전파를 현저하게 줄였습니다. 많은 진드기 항원 후보가 숙주에서 면역 반응을 유도하는 것으로 입증되었지만 백신을 사용하여 강력한 진드기 면역을 복제하는 것은 아직 불가능합니다. 이것은 먹이를 주는 다른 단계에서 진드기의 타액 단백질 구성이 동적으로 변경되어 숙주 내부 변화를 관리할 수 있기 때문일 수 있습니다. 이 정보는 인간의 라임병에 대한 일반적인 벡터인 검은다리 진드기 I. scapularis의 19개 타액 단백질을 식별하고 합리적으로 선택한 최근 연구에서 제공되었습니다. 그들은 이러한 단백질을 암호화하는 뉴클레오시드 변형 mRNA를 조작했습니다.
mRNA-LNP 백신 19ISP(19 Ixodes 타액 단백질)를 생산하기 위해 이들은 지질 나노입자(LNP)에 동일한 양으로 캡슐화되었습니다. I. scapularis의 섭식 행동에 대한 백신의 영향을 평가하기 위해 기니피그를 4-주 간격으로 3회 피내 면역화하여 적어도 10개의 암호화된 항원에 대해 강력한 항체 반응을 보였습니다. 실험의 다음 단계에서 동물은 감염되지 않은 I. scapularis 약충으로 공격을 받았습니다. 예방접종을 받은 동물은 24시간 이내에 상당한 홍반이 발생했습니다.
또한, 백신을 접종한 동물의 진드기는 잘 먹지 않았고 48시간에 분리되기 시작했으며, 백신을 접종하지 않은 동물의 진드기는 20%에 비해 96시간 후에 백신을 접종한 동물에서 80%가 분리되었습니다. 변경된 섭식 행동이 병원균의 전파에 영향을 미치는지 여부를 추가로 조사하기 위해 B. burgdorferi에 감염된 I. scapularis 약충을 19ISP 또는 반딧불이 루시퍼라아제를 암호화하는 mRNA 백신으로 예방접종한 기니피그에 두었습니다. 이 동물들 각각은 감염된 3개의 진드기를 받았습니다. 홍반과 관련된 가려움증을 유발하는 진드기는 인간이 제거할 가능성이 높은 점을 고려하여 붉은기가 나타나는 즉시 이중맹검 방식으로 진드기를 떼어냈습니다.
대조군 동물의 총 46%가 공격 3주 후에 B. burgdorferi에 감염된 반면, 백신접종된 동물 중 어느 것도 이 병원체에 감염되지 않았습니다. 유전자 발현 분석에 따르면 백신은 T 및 B 세포 수용체, 케모카인, FcεRI 및 IL-17 신호뿐만 아니라 자연 살해 세포 매개 독성을 포함한 여러 면역 경로를 활성화하는 것으로 나타났습니다. 또한 물린 부위 분석에서도 백신이 T 세포 반응을 유도한 것으로 나타났습니다[154].
동시에 같은 그룹의 연구자들은 Salp14를 모델 항원으로 사용하여 mRNA 지질 나노입자(LNP), 플라스미드 DNA 또는 재조합 단백질 플랫폼을 사용하여 진드기 면역을 검사했습니다[153]. 이 연구에서는 뉴클레오사이드 변형 mRNA 지질 나노입자 인코딩(mRNA-LNPs) Salp14를 포함한 백신 접종을 4주마다 2회 부스트하여 피내로 전달했습니다. Salp14-특이 항체의 발달은 다른 면역화 전략 사이에서 비교되었습니다. Salp14 mRNA 면역화는 DNA 및 단백질 백신화에 비해 가장 강한 체액성 반응을 유도하는 플랫폼이었다. salp14 mRNA로 면역화된 기니피그는 모든 면역화 그룹에서 물린 부위에서 가장 강력하고 강렬한 홍반이 관찰되었습니다. 그러나 그것은 진드기 분리 속도에 영향을 미치지 않았고 충혈 가중치를 변경하지 않았습니다[153]. 진드기 백신은 홍반을 효과적으로 유발해야 하며 부착 및 충혈을 포함하여 진드기 섭식의 후기 측면을 변경하는 한 가지 접근 방식은 여러 타액 진드기 항원을 포함하는 백신을 사용하는 것입니다[154].
따라서 잠재적인 백신 후보로 사용될 수 있는 뉴클레오사이드 변형 mRNALNP salp14로 면역화하면 DNA 또는 단백질로 면역화하는 것보다 더 높은 항체 역가와 더 빠르고 더 높은 수준의 발적을 유발할 수 있는 것으로 보입니다. 이는 Salp14가 최적화와 함께 단독으로 또는 다른 후보 항원과 조합하여 백신에 대한 좋은 후보가 되어야 합니다[154].
전반적으로, 다가 mRNA 백신은 기니피그와 같은 실험실 동물에서 진드기 저항성을 유발하고 아마도 진드기가 숙주에게 먹이를 주는 시간을 제한함으로써 진드기 감염 및 진드기 매개 감염을 예방할 수 있는 능력이 있는 것으로 보입니다. 또한 느리고 지속적인 항원 전달을 가능하게 하는 mRNA-LNP 제형이 자연적인 진드기 물림을 모방할 수 있다고 제안되었습니다. 이 전략이 인간에게 적용될 수 있다면 병원체나 미생물 표적이 아닌 벡터를 직접 표적으로 삼는 최초의 백신이 될 것입니다. 더욱이, 진드기 매개 질병의 전염을 예방하는 데 사람을 돕기 위해 항진드기 백신이 여전히 개발되고 있기 때문에 예방접종 전략과 예방접종을 위한 항원 선택을 고려해야 합니다.
3.3. 단백질 기반 백신
일부 단백질 기반 백신은 상업적으로 이용 가능하고 효과적입니다. 백신 프로그램은 1970년대 연구자들이 당시 진드기(D. Anderson)에 대해 숙주를 면역화하기 위해 두 가지 다른 유형의 백신 제형을 실험하기 시작했을 때 처음 시작되었습니다. 첫 번째는 장과 난소에서 얻은 항원을 포함했고, 두 번째는 반 충혈된 D. Anderson 암컷에서 추출한 모든 내부 장기를 포함했습니다.
이 연구는 소 숙주에 성인 R. microplus 암컷에서 얻은 추출물을 접종했을 때 항체 매개 면역 반응이 진드기 장 조직에 대해 활성화된다는 것을 발견했습니다[155]. 백신 제형의 효과를 평가하기 위한 이 초기 연구는 전 세계 연구자들이 진드기 및 진드기 매개 질병을 통제하기 위한 백신 개발에 집중하도록 장려했습니다. 따라서 1980년대에 두 개의 개별 연구자 그룹이 R. microplus에 대한 소의 면역 반응을 분석하기 위해 백신 제형을 사용하여 최초의 과학적 조사를 수행했습니다[156].
위의 연구에 따라 진드기 내장 관련 당단백질이 숙주에서 면역 보호를 유도할 수 있음이 밝혀졌습니다[157]. 후속 연구에서 동일한 연구 그룹은 Bm86이라는 이름의 분자량 89kDa의 당단백질을 분리했으며 R. microplus의 장 세포와 관련이 있다고 보고했습니다[158,159]. Bm86 재조합 단백질은 효모 발현 시스템을 사용하여 대규모로 생산되었습니다.
지금까지 Bm86- 기반 백신만 다른 브랜드 이름으로 상용화되었습니다. 예를 들어 호주에서는 TickGARD® 브랜드 이름으로, 쿠바에서는 Gavac®로 판매됩니다[160,161]. 이 백신은 소에 대한 진드기 압력을 줄이기 위해 여러 국가에서 주로 사용됩니다. 이러한 백신을 사용하면 진드기 개체 수를 최대 74%까지 줄일 수 있으며 전체 효능 범위는 51%에서 91%로 나타났습니다. 이는 진드기 개체 수와 소의 영양 상태에 따라 다릅니다[160-163]. 콜롬비아, 멕시코 및 브라질의 일부 R. micro plus tick 계통이 Cuban 및 Australian R. micro plus tick 균주에 비해 전반적인 효능이 낮다는 증거가 있으며 심지어 아르헨티나 R. micro plus strain A도 Bm86 [34,164]. 세계 여러 지역에서 동일한 진드기 종의 개체군에 대한 Bm86 백신의 효능 변화에 대한 추가 분석이 수행되었으며, 서로 다른 진드기 개체군이 Bm{에서 다형성을 가질 가능성이 가장 높다는 결론을 내렸습니다. {12}} 유전자의 아미노산 서열 측면에서 항원 유전자이며, 이것이 기존 Bm86- 기반 백신이 그다지 효과적이지 않은 주된 이유입니다.
예를 들어, 아르헨티나의 진드기 개체군에서 확인된 Bm86(Bm95로 지정됨)과 상동인 유전자에 다형성이 있어 진드기 개체군 간에 Bm86의 서열에 차이가 생겼습니다. 쿠바와 호주에서 발견되었으며 Bm86 백신이 아르헨티나 진드기에 대해 효과적이지 않은 이유를 설명할 수 있습니다[34]. Bm86 백신의 저항성 문제를 고려하여 연구원들은 매우 효과적인 것으로 입증된 재조합 Bm95 백신을 생산했습니다. 이 백신은 진드기 감염 감소 측면에서 쿠바와 아르헨티나에서 89%, 인도에서 81%의 전반적인 효능을 보였습니다. [34,102,120,165].
위에서 언급한 상업용 백신 및 그 효능 시험 외에도 많은 다른 연구가 Bm86- 기반 백신의 효능을 더욱 향상시키는 데 중점을 두었습니다. 최근 일부 연구에서는 Bm86로부터 얻은 SBm4912, SBm7462®, SBm19733 등의 펩타이드를 합성하고 rSBm7462® 재조합 펩타이드를 생산하여 그 효능을 분석하였다. 이들 펩타이드의 효능 백분율은 35.87% ~ 81.05%로, 이들 펩타이드, 특히 SBm7462® 및 rSBm7462®가 숙주 면역 유도에 중요한 역할을 하며 진드기 감소 측면에서 매우 효과적이기 때문에 상용화될 수 있음을 시사합니다. 감염 [121,122]. 또한 Bm86 재조합 단백질 백신의 효과를 개선하기 위해 Lapisa SA는 최근 멕시코에서 Bm86- 기반 Bovimune Ixovac® 백신을 도입했습니다. 그러나 이 백신은 진드기에 대한 효과에 대해 연구되지 않았습니다. 따라서 효능을 결정하기 위해 다른 진드기 개체군에 미치는 영향을 결정하기 위한 연구가 필요합니다.
Bm86 상동체 기반 백신(TickGard)이 적합한 것으로 보입니다. 이 백신은 적용 범위가 넓고 Rhipicephalus sanguineus, Hyalomma anatolicum anatolicum, Rhipicephalus(Boophilus ) decoloratus, Rhipicephalus (Boophilus) annulatus 및 Hyalomma dromedary [166–168]. 그러나 이 백신은 일부 다른 진드기 종(예: Rhipicephalus appendiculatus, Amblyomma variegatum 및 Amblyomma cajennenense)에서 교차 반응 보호를 유도할 수 없습니다[169,170]. Bm86 백신이 R. annulatus에 대해 100% 효능이 있어 R. microplus와 동종 백신의 보고된 효능보다 더 큰 효능이 있다는 점은 흥미롭습니다. 그 이유는 생리적 요인(예: 혈액 울혈이 적고 체내 프로테아제 활성 수준이 낮음) 또는 진드기 유전적 요인 때문일 수 있습니다. 이러한 요인은 BM86 단백질 수준에 영향을 미치거나 섭식 및 단백질 분해와 같은 생리적 과정을 촉발하여 보다 효율적인 항체-항원 상호작용을 유도할 수 있습니다[171]. Bm86 백신 접종은 R. microplus 진드기에 대한 탁월한 보호 기능을 제공하지만 이러한 경험을 Ixodes 진드기 백신에 외삽하는 것은 어렵습니다.
I. ricinus 및 I. scapularis와 달리 R. microplus는 소만을 먹는 단일 숙주 진드기입니다[168]. 또한 수명 주기가 짧고 털갈이를 하지 않으며 피의 식사가 끝나면 새로운 숙주를 찾습니다. R. microplus 진드기 유충에 노출된 소에서 Bm86 백신의 효능을 조사했으며, 백신 접종 후 탈락한 부풀어 오른 성인 암컷의 진드기 면역과 관련된 매개변수를 측정했습니다. 따라서 측정된 보호는 2번의 탈피 기간과 3번의 진드기 단계에 대한 영향의 합입니다. R. microplus에 대해 Bm86 백신 접종이 손상을 유발하고 이후 성인 암컷 진드기의 충혈 중량을 감소시키는 것으로 나타났습니다[172]. 그럼에도 불구하고 R. microplus의 미성숙 단계에 대한 Bm86 백신접종의 상대적인 영향은 정확하게 알려져 있지 않습니다. Bm86 상동체도 Ixodes 진드기에서 분리 및 식별되었습니다. I. ricinus는 Bm86, Ir86-1 및 Ir-86-2의 두 동족체를 포함하고 I. scapularis는 또한 Is86-1 및 Is{{10}의 두 동족체를 포함합니다. } [173]. 후속 연구에서는 재조합 Ir86 단백질의 백신접종이 재조합 Ir86 단백질에 대한 혈청 IgG 역가를 강화한다는 것을 조사했습니다. 그러나 항체는 I. ricinus 공격에 대해 토끼를 보호할 수 없었습니다. 부착된 진드기의 수나 진드기 가중치는 감소하지 않았습니다[174].
따라서 Ixodes의 Bm86 상동체에 대한 백신접종은 Bm86 백신접종이 R. microplus에 대해 분명한 효과가 있음에도 불구하고 Ixodes ricinus 개체군을 제어하는 효과적인 접근법으로 간주되지 않습니다. Bm86 백신이 상당한 성공을 거두었지만 백신이 살비제와 관련된 "녹아웃 효과"가 없기 때문에 살비제를 대체할 가능성이 낮다는 점을 이해하는 것이 중요합니다. 그럼에도 불구하고, 현장 경험은 Bm86의 사용이 현장에서 살비제 처리를 적용할 필요성을 상당히 감소시키는 것으로 나타났습니다. 예를 들어, 쿠바의 진드기 방제 프로그램에 대한 엄격한 규제로 인해 국가에서 사용되는 살비제의 양이 87% 감소했으며, 이는 베네수엘라에서 수행된 최근 연구 결과와 비교할 수 있습니다[161,175,176].
또한 Bm86 백신의 사용으로 소 아나플라즈마증 및 소 바베시아증을 비롯한 진드기 매개 질병도 상당히 감소했습니다. 이 백신의 적용은 또한 소와 같은 가축의 생산성을 향상시켰고 결과적으로 농부들의 경제적 손실을 감소시켰습니다[160]. Bm86 백신 접종의 위 측면은 진드기 침입을 처리하는 데 화학 적용에 비해 비용 효율적인 방법임을 보여줍니다. 이와 같이 이 백신은 진드기 매개 질병을 줄이는 데 매우 유용할 뿐만 아니라 진드기 매개 질병을 줄이기 위해 축산 농장에서 진드기 발병 관리를 개선하는 데 매우 유용할 수 있습니다.

4. 맺음말
진드기는 발달, 성장 및 번식을 위해 혈액을 먹고, 다양한 진드기 매개 질병의 전염을 담당합니다. 예를 들어 Ixodes 진드기는 박테리아, 원생 동물 및 바이러스를 포함한 많은 병원균을 전염시킵니다. 항진드기 백신은 진드기 침입을 줄이고 병원균 전파를 방지하며, 추가로 부정적인 부작용이 있을 수 있는 화학적 방제보다 더 안전하다는 점에 유의하는 것이 중요합니다. 다양한 조직/기관에서 여러 가지 새로운 항원이 확인되었고 실험 동물에서 그 효능이 조사되었으며 보고된 부작용 없이 진드기에 대한 백신을 개발하는 데 중요한 진전을 이루었습니다. Bm86 단백질을 기반으로 한 백신은 여러 국가에서 상용화되었으며 R. microplus에 대한 사용은 진드기에 대한 백신 접종이 효율적으로 사용될 수 있음을 보여주었습니다. 그러나 Bm86- 기반 백신은 Ixodes 진드기와 같은 다른 진드기 종에 대해 동등하게 효과적이지 않습니다. I. ricinus의 Bm86 상동체를 사용한 백신접종은 진드기 먹이에 아무런 영향을 미치지 않는 것으로 나타났습니다[174].
또한 R. micro plus는 하나의 숙주만 먹기 때문에 유충을 사용하여 소에 도전하여 완전히 부풀어 오른 성체 암컷 진드기가 발생하여 진드기의 수가 감소했을 뿐만 아니라 진드기의 3단계 생활 단계 모두에 상당한 영향을 미쳤습니다. 진드기. R. microplus와 달리 Ixodes 진드기는 수명 주기 동안 숙주를 변경하므로 Ixodes 진드기 백신 접종은 한 숙주에서 한 혈액 식사 동안 진드기의 부착 및/또는 먹이를 효과적으로 방지해야 합니다. 그럼에도 불구하고 Ixodes 진드기에 대한 백신 접종은 가능하고 현실적으로 보입니다. 따라서 이러한 유형의 백신에서는 숙주의 교차 보호가 어려운 작업이 될 수 있다는 점에 유의하는 것이 중요합니다. Bm86 외에도 면역억제제 또는 항응고제로서 치료 가능성을 가질 수 있는 다른 단백질이 있습니다[39,61].
유전체학 및 단백질체학의 최근 발전으로 새로운 항원을 발견하고 분자 기술을 사용하여 식별된 단백질을 조작하고 새로운 백신을 과거보다 훨씬 빠르고 비용 효율적으로 테스트할 수 있게 되었습니다. DNA 백신 접종도 훌륭한 선택입니다. 그러나 일반적으로 이러한 유형의 백신 접종은 낮은 수준의 항원 발현으로만 이어질 수 있으며 MHC 클래스 II 경로를 통해 CD4 + T 보조 세포를 활성화하는 비전문 항원 제시 세포를 제한합니다[177]. 그러나 DNA 백신접종은 숙주에 대한 상당한 보호를 제공할 뿐만 아니라 키메라 백신이나 재조합 단백질 백신접종이 후속되는 경우 진드기에 대한 교차 보호를 제공하는 것으로 간주됩니다[178].
또한, mRNA-LNP는 진드기에 물린 부위에서 홍반을 유발하는 데 도움이 될 수 있으며, 이는 획득된 진드기 저항성의 가장 중요한 초기 지표 중 하나입니다. 진드기 유전자를 포함하는 mRNA-LNP는 선택된 진드기 매개 질병을 잠재적으로 예방할 수 있는 백신 개발을 위한 유용한 플랫폼입니다[153,154]. DNA 및 mRNA 백신 접종 모두 효과적인 전략인 것으로 보이며 진드기 감염 및 진드기 매개 질병을 통제하기 위한 mRNA 또는 DNA 백신 접종이 개발되어 교차 보호를 제공할 수 있다는 미래의 희망이 있습니다. 그러나 지금까지 어떤 백신도 상용화되지 않았으며, 이는 DNA 또는 mRNA 백신을 개발하기 위해 사용하기 위해 점점 더 많은 항원의 효능을 결정하기 위해 추가 연구가 필요함을 나타냅니다. 새로운 진드기 백신 후보의 식별 및 특성화는 진드기 섭식 및 병원균 전파를 예방할 수 있습니다. 인간은 말할 것도 없고 가축과 야생 동물을 위한 백신에 이러한 항원을 사용하는 것은 여전히 어려운 일입니다.
저자 기여:
MNA, MAJ 및 MK가 기사의 구조를 디자인했습니다. 모든 저자는 문헌 검색을 수행하고 원고의 일부를 작성/데이터를 취합했습니다. MNA와 IM은 수치를 생성하고 편집했습니다. ID와 MK는 원고를 비판적으로 수정하고 교정했습니다. 모든 저자는 원고의 출판된 버전을 읽고 이에 동의했습니다.
자금 조달:
MK는 체코 공화국 보조금 기관({{0}}S 보조금) 및 ERD 기금, 프로젝트 CePaVip OPVVV(384 CZ.02.1.01)로부터 자금을 받았습니다. /0.0/0.0/16_019/0000759). 자금 제공자는 연구 설계, 데이터 수집 및 분석, 출판 결정 또는 원고 준비에 아무런 역할도 하지 않았습니다.
기관 검토 위원회 성명서: 해당 없음.
정보에 입각한 동의서: 해당 없음.
데이터 가용성 진술: 해당 없음
이해 상충: 저자는 연구가 잠재적인 이해 상충으로 해석될 수 있는 상업적 또는 재정적 관계 없이 수행되었음을 선언합니다.
참조
1. 드 라 푸엔테, J.; Kocan, KM 진드기 침입에 대한 재조합 백신을 위한 보호 항원의 식별 및 특성화를 발전시킵니다. Expert Rev. Vaccines 2003, 2, 583–593. [교차 참조]
2. 위버, GV; 앤더슨, N.; 가렛, K.; 톰슨, AT; Yabsley, MJ Ticks 및 Tick-Borne Pathogens in Domestic Animals, Wild Pigs, and Off-Host Environmental Sampling in Guam, USA. 앞쪽. 수의사. 과학. 2022, 8, 803424. [CrossRef] [PubMed]
3. 존스, KE; 파텔, NG; 메사추세츠주 레비; Storeygard, A.; 발크, D.; 기틀맨, JL; Daszak, P. 신종 전염병의 글로벌 동향. Nature 2008, 451, 990–993. [교차 참조]
4. Beugnet, F.; 마리에, J.-L. 유럽에서 반려동물의 절지동물 매개 질병이 부상하고 있습니다. 수의사. 기생충. 2009, 163, 298–305. [CrossRef] [펍메드]
5. 피터, SG; 카리우키, HW; 아보게, GO; 가쿠야, DW; Maingi, N.; Mulei, 케냐 나이로비 도시주변 지역의 소규모 농장에서 젖소를 감염시키는 진드기와 병원균의 CM 확산. 수의사. 중간 국제 2021, 2021, 9501648. [교차 참조]
6. Graf, J.-F.; 고골레프스키, R.; 리치-빙, N.; 조지아주 사바티니; 몰렌토, MB; 엘 보르딘; Arantes, GJ Tick 컨트롤: 업계 관점. 기생충학 2004, 129, S427–S442. [CrossRef] [펍메드]
7. de la Fuente, J. Vaccines for vector control: 흥미로운 미래 가능성. 수의사. J. 2012, 194, 139–140. [CrossRef] [펍메드]
8. Sparagano, O.; Földvári, G.; Derdáková, M.; Kazimírová, M. 진드기 및 진드기 매개 질병이 제기하는 새로운 문제. 생물학 2022, 77, 1497–1501. [교차 참조]
9. 두란, DL; 압테, SH; Proietti, C. 게놈 기반 백신 설계: 말라리아 및 기타 전염병에 대한 약속. 국제 J. 파라시톨. 2014, 44, 901–913. [교차 참조]
10. 브라가찌, NL; 잔프레디, V.; 빌라리니, M.; 로셀리, R.; 나스르, A.; 후세인, A.; 마티니, M.; Behzadifar, M. Vaccines Meet Big Data: 최신 기술 및 미래 전망. 고전적인 3I("격리-비활성화-주사") Vaccinology 1.0에서 Vaccinology 3.0, Vaccinomics 및 Beyond A Historical Overview까지. 앞쪽. 공중 보건 2018, 6, 62. [CrossRef]
11. Zepp, F. 백신 설계 원리 - 자연으로부터의 교훈. Vaccine 2010, 28 (Suppl. 3), C14–C24. [교차 참조]
12. Bouazzaoui, A.; 압델라티프, A.; 알 알라프, F.; 보가리, N.; Al-Dehlawi, S.; Qari, S. 예방접종 전략: 보조제와 조합한 기존 백신 접근 대 신세대 전략. 약학 2021, 13, 140. [CrossRef] [PubMed]
13. 다르제니오, DA; Wilson, CB A Decade of Vaccines: 합리적인 백신 설계를 위한 면역학 및 백신학 통합. 면역 2010, 33, 437–440. [교차 참조]
14. 메리노, O.; Antunes, S.; 모스케다, J.; Moreno-Cid, JA; 드 라 라스트라, JMP; 로사리오-크루즈, R.; 로드리게스, S.; 도밍고스, A.; de la Fuente, J. 진드기-병원체 상호작용에 관여하는 단백질을 이용한 예방접종은 매개체 침입 및 병원체 감염을 감소시킵니다. 백신 2013, 31, 5889–5896. [CrossRef] [펍메드]
15. 화이트, 앨라배마; Gaff, H. 검토: Blacklegged, Lone Star 및 American Dog Ticks에 대한 진드기 제어 기술의 적용. J. 통합. 해충 관리. 2018, 9, 12. [교차 참조]
16. Willadsen, P. 항진드기 백신. 기생충학 2004, 129, S367–S387. [교차 참조]
17. 드 라 푸엔테, J.; Merino, O. Vaccinomics, 진드기 백신의 새로운 길. 백신 2013, 31, 5923–5929. [CrossRef] 18. 캘리포니아주 힐; Wikel, SK Ixodes scapularis 게놈 프로젝트: 진드기 연구 발전을 위한 기회. 트렌드 기생충. 2005, 21, 151–153. [교차 참조]
19. 메디나, JM; 압바스, 미네소타; 벤사우드, C.; Hackenberg, M.; Kotsyfakis, M. Ixodes ricinus Long NonCoding RNA의 생물정보학적 분석은 숙주 miRNA의 결합 능력을 예측합니다. 국제 J.Mol. 과학. 2022, 23, 9761. [교차 참조]
20. 발레, MR; 게레로, FD 오믹스 시대의 항진드기 백신. 앞쪽. Biosci. (Elite Ed.) 2018, 10, 122–136. [교차 참조]
21. Logullo, C.; Vaz, IDS; 소르진, MHF; 파이바-실바, GO; 파리아, FS; 진갈리, RB; DE 리마, MFR; Abreu, L.; 올리베이라, EF; 알베스, EW; 외. 딱딱한 진드기인 Boophilus microplus의 알에서 아스파르트산 프로테이나제 전구체 분리. 기생충학 1998, 116, 525–532. [교차 참조]
22. Kurlovs, AH; 리제이; 쳉 디; Zhong, J. Ixodes pacificus Ticks는 Rickettsia Endosymbiont의 항생제 치료 후 배아 발생 및 알 부화를 유지합니다. PLoS ONE 2014, 9, e104815. [CrossRef] [펍메드]
23. 새핑턴, TW; 헤이스, 아칸소; Raikhel, AS Mosquito vitellogenin 수용체: 정화, 발달 및 생화학적 특성. 곤충 생화학. 몰. 비올. 1995, 25, 807–817. [CrossRef] [펍메드]
24. Vaz, IDS; Logullod, C.; 소르진, M.; 벨로소, FF; 드 리마, MFR; 곤잘레스, JC; 마스다, H.; 올리베이라, PL; Masudaa, A. Boophilus microplus 계란에서 분리된 아스파르트산 프로테이나제 전구체로 소의 면역화. 수의사. 면역. 면역 병리학. 1998, 66, 331–341. [교차 참조]
25. 릴, AT; Seixas, A.; 폴, PC; 캘리포니아주 페레이라; Logullo, C.; 올리베이라, PL; 파리아스, SE; 테르미뇨니, C.; Vaz, IDS; Masuda, A. 재조합 Boophilus Yolk pro-Cathepsin을 사용한 소의 백신접종. 수의사. 면역. 면역 병리학. 2006, 114, 341–345. [교차 참조]
26. 릴, AT; 폴, PC; 캘리포니아주 페레이라; 나시멘토-실바, MC; 소르진, MH; Logullo, C.; 올리베이라, PL; 파리아스, SE; Vaz, IDS; Masuda, A. 봉입체에서 발현되는 두 가지 재조합 형태의 Boophilus microplus yolk pro-cathepsin의 정제 및 항원성. 프로틴 익스프레션 퓨리프. 2006, 45, 107–114. [CrossRef] [펍메드]
27. 야마시타, O.; Indrasith, 절지동물의 배아 발생 중 노른자 단백질의 LS 대사 운명. (절지동물/배아 발생/난황 단백질/제한된 단백질 분해/프로테아제). 데브. 성장이 다릅니다. 1988, 30, 337–346. [교차 참조]
28. 텔람, R.; 켐프, D.; 승마, G.; Briscoe, S.; 스미스, D.; 샤프, P.; 어빙, D.; Willadsen, P. vitellin으로 예방접종을 한 양을 먹이는 Boophilus microplus의 감소된 산란. 수의사. 기생충. 2002, 103, 141–156. [교차 참조]
29. 볼드바타르, D.; Umemiya-Shirafuji, R.; 랴오, M.; 다나카, T.; Xuan, X.; Fujisaki, K. Haemaphysalis longicornis 진드기의 여러 vitellogenins는 난소 발달에 중요합니다. J. 곤충 Physiol. 2010, 56, 1587–1598. [교차 참조]
30. Seixas, A.; 도스 산토스, PC; 벨로소, FF; Vaz, IDS; 마스다, A.; 혼, F.; Termignoni, C. A Boophilus microplus vitellin 분해 시스테인 엔도펩티다아제. 기생충학 2003, 126, 155–163. [교차 참조]
31. Seixas, A.; 릴, AT; 나시멘토-실바, MCL; 마스다, A.; 테르미뇨니, C.; Vaz, 진드기 vitellin 분해 효소(VTDCE)의 IDS 백신 잠재력. 수의사. 면역. 면역 병리학. 2008, 124, 332–340. [CrossRef] [펍메드]
32. 자메이, J.; 승마, G.; 피어슨, R.; McKenna, R.; Willadsen, P. Boophilus microplus의 Carboxydipeptidase: 안지오텐신 전환 효소와 유사한 "숨겨진" 항원. 곤충 생화학. 몰. 비올. 1995, 25, 969–974. [CrossRef] [펍메드]
33. 윌라드센, P.; 스미스, D.; Cobon, G.; McKenna, RV 재조합 항원 Bm86 단독 또는 재조합 Bm91과 함께 Boophilus microplus에 대한 소의 비교 백신. 기생충 면역. 1996, 18, 241–246. [교차 참조]
34. 가르시아-가르시아, JC; 몬테로, C.; 레돈도, M.; 바르가스, M.; 카날레스, M.; Boue, O.; 로드리게스, M.; Joglar, M.; 마차도, H.; 곤잘레스, 일리노이; 외. 소진드기, Boophilus microplus로부터 분리된 재조합 항원 Bm95로 백신접종된 소에서 Bm86로 면역화에 저항성인 진드기의 방제. Vaccine 2000, 18, 2275–2287. [교차 참조]
35. 램버츠, C.; Chongkasikit, N.; 지타팔라퐁, S.; Ganguly, M. 지역 Rhipicephalus(Boophilus) microplus 진드기에서 파생된 항진드기 항원 Bm91에 대한 Bos indicus 소의 면역 반응 및 자연 감염 하에서 진드기 번식에 미치는 영향. J. 파라시톨. 해상도 2012, 2012, 907607. [교차 참조]
For more information:1950477648nn@gmail.com