산화 손상과 신경 보호에서 뉴런과 신경교세포 사이의 혼선 3부
Mar 22, 2024
4. 소교세포
4.1. 뇌의 소교세포
실질 환경을 조사하는 수많은 미세하고 운동성 돌기를 갖고 있는 소교세포는 CNS 세포의 약 10%를 나타냅니다. 각 소교세포는 직경이 약 50μm인 영토를 가지고 있습니다.
소교세포(Microglia)는 우리 뇌에서 중요한 역할을 하는 신경 세포의 일종입니다. 그들은 뉴런 주변의 노폐물을 제거하고, 뉴런의 건강을 유지하며, 뉴런 간의 의사소통을 촉진하는데, 이 모든 것은 기억을 유지하는 데 필요합니다.
소교세포 중에는 특별한 모양과 기능을 가진 "성상교세포"라는 세포 유형이 있습니다. 뉴런 사이의 연결을 모니터링하고 조절하여 뇌가 정보를 보다 효율적으로 처리하도록 돕습니다. 이는 전체 네트워크의 원활한 흐름을 보장하기 위해 네트워크 케이블과 케이블의 연결 상태를 지속적으로 모니터링하는 전산실 관리자와 유사합니다.
연구에 따르면 소교세포는 학습과 기억 과정에도 관여하는 것으로 나타났습니다. 그들은 신경 전달 물질을 방출하고 뉴런 간의 의사 소통을 촉진하며 기억 통합 및 검색을 향상시킵니다. 동시에 소교세포는 뉴런 사이의 새로운 연결 형성을 촉진하여 기억 능력을 향상시킬 수도 있습니다.
따라서 뇌의 미세아교세포의 건강과 수를 유지하는 것이 기억력을 유지하는 데 핵심입니다. 식습관에 주의를 기울이고, 적절한 운동을 하고, 좋은 사고방식을 유지함으로써 소교세포의 생성과 유지를 촉진할 수 있습니다. 좋은 소교세포 기능을 유지해야만 우리의 두뇌를 젊고 건강하며 강하게 유지할 수 있습니다. 기억력은 자연스럽게 좋아질 것입니다. 기억력 향상이 필요하다고 볼 수 있는데, Cistanche Deserticola는 아세틸콜린 수치와 성장인자 수치를 높이는 등 신경전달물질의 균형도 조절할 수 있기 때문에 기억력을 크게 향상시킬 수 있습니다. 이 물질은 기억과 학습에 매우 중요합니다. 또한 Cistanche Deserticola는 혈류를 개선하고 산소 전달을 촉진하여 뇌에 충분한 영양분과 에너지를 공급하여 뇌 활력과 지구력을 향상시킬 수 있습니다.

CNS에 상주하는 대식세포라고 불리는 소교세포는 수명이 길고 자가 재생되는 세포입니다. 건강한 뇌에서 소교세포는 분지된 형태를 가지며 "정지" 또는 "휴식" 상태에 있습니다[67].
소교세포 과정은 확장과 철회의 연속적인 주기를 겪고, 뇌 항상성의 붕괴에 대해 환경을 검사하고, 체계적으로 시냅스를 통해 특정 신호 전달 메커니즘을 통해 신경 활동을 모니터링하고 조절합니다[68,69]. 소교세포는 병리학적 뇌 상태 동안 휴식 상태에서 반응성 아메바 상태로 형태를 변경합니다.
식세포 또는 아메바성 미세아교세포로 진화하는 반응성 미세아교세포는 세포체 크기가 증가하고 돌기 수가 적으며 돌기 길이와 가지가 감소하고 수와 증식이 증가하여 형태와 기능 사이의 긴밀한 연결을 나타냅니다[70-73](그림 2).
소교세포는 환경 신호에 매우 민감하며 질병 특이적 및 뇌 영역 특이적 방식으로 항상성 표현형을 유지하기 위해 반응합니다. 백색질과 회색질 미세아교세포는 서로 다른 면역 조절을 보여줍니다. 피질 관련 미세아교세포는 신경변성에 역할을 하고, 백색질 관련 미세아교세포는 탈수초화/재수초화에 역할을 합니다.
일반적으로 신경전달물질 수용체의 활성화는 소교세포의 염증성 활성화를 억제하고 비정상적인 분자의 생성과 생리학적 분자의 비정상적인 농도를 억제합니다.
일단 뇌 손상이나 감염 시 활성화되면 소교세포는 면역 반응을 시작하고 여러 사이토카인, 케모카인, 성장 인자를 생성하고 TLR(톨 유사 수용체), 식세포 수용체, 제거제 수용체 및 다양한 보체 인자와 같은 세포 표면 수용체의 발현을 상향 조절합니다. 75,76]. Microglia는 GABA, 글루타메이트, 도파민 및 노르아드레날린을 포함한 여러 신경 전달 물질 수용체를 발현합니다 [66,77].
4.2. 산화 손상의 소교세포
산화 스트레스 동안 활성화된 소교세포는 세포막을 자유롭게 통과하여 신호 분자 역할을 하는 NO 및 초산화물을 비롯한 여러 염증 매개체를 생성합니다.
NO와 초과산화물은 퍼옥시니트리트(peroxynitrite)를 형성할 수 있으며, 이는 DNA 단편화 및 지질 산화를 유발하고 신경 세포 사멸을 유도합니다[78,79]. 배양된 소교세포에서는 질산염/아질산염(NOx)에 의해 촉매되는 초산화물 생성이 포르볼 에스테르에 의해 유도되고, 박테리아 지질다당류(LPS) 및 인터페론-(IFN) 처리 시 iNOS 유도에 의해 NO 생성이 자극됩니다. ].
LPS를 이용한 해마내 처리 후 iNOS의 발현은 내부교세포보다 소교세포에서 더 빠르게 유도되었으며, 성상교세포의 미세아교세포에서 iNOS 유도를 위해서는 더 낮은 농도의 LPS가 필요했습니다[82,83].
또한, 아르기닌은 NOS의 잘 알려진 생리학적 기질입니다. 불충분한 양의 아르기닌으로 활성화된 소교세포는 iNOS에 의해 매개되는 NO 및 과산화물 생성을 유도하여 독성 퍼옥시니트리트를 형성합니다[84]. iNOS의 유도 또는 NOx의 활성화만으로는 소교세포에 실질적인 손상을 일으키지 않지만, NOx와 iNOS에 의한 초과산화물과 NO의 동시 생성은 소교세포에 해를 끼칠 가능성이 있습니다[85,86].
NOx 활성화 시 초과산화물을 생성하는 활성화된 미세아교세포에서는 산소와 H2O2 수준이 빠르게 불균형을 이루고 소교세포 기능에 영향을 미칠 수 있습니다. ROS는 아메바성 미세아교세포에 의한 식균작용을 촉진하고 소포 형성을 강화하는데, 이는 미세아교세포를 H2O2로 처리할 때 관찰되었습니다[87]. Microglia 유래 ROS는 인접한 뇌 세포를 손상시킬 수 있습니다.
따라서 소교세포 증식과 ROS 생성은 산화 손상과 신경퇴행성 질환으로부터 뇌를 보호할 수 있는 잠재적인 치료 표적입니다[88].
4.3. 소교세포 매개 항산화 방어
ROS에 의한 산화 스트레스를 예방하기 위해 소교세포에는 높은 세포 GSH 농도가 포함되어 있으며 SOD, GPx, GR 및 카탈라아제를 포함한 다양한 항산화 효소를 발현하고 상향 조절합니다.
형광으로 표지된 뇌 세포 배양은 소교세포가 쥐 뇌의 다른 세포 유형보다 더 높은 수준의 GSH를 발현한다는 것을 보여주었습니다[89]. 소교세포에 있는 이러한 고농도의 세포내 GSH는 급진적 및 과산화물 매개 손상에 대한 항산화 방어 시스템에 기여합니다. TNF로 자극된 소교세포 배양은 자극되지 않은 소교세포 배양보다 두 배나 많은 GSH를 나타냈습니다[90].
그러나 iNOS 생성을 유도하는 LPS/IFN을 처리한 소교세포에서는 세포의 GSH 함량이 낮았으나 미토콘드리아의 GSH 함량은 영향을 받지 않았다. 따라서 소교세포의 GSH 함량은 자극 유형에 따라 GSH 합성이 향상되면 증가하고 GSH 소비가 가속화되면 감소하는 이진 효과를 나타냅니다.
또 다른 항산화 효소인 SOD는 퀴놀린산 처리 후 활성화된 소교세포에서 면역세포화학적 염색으로 관찰되었으나 기저 조건의 소교세포에서는 검출되지 않았다[92,93]. MnSOD의 비활성은 배양된 성상교세포와 희소돌기아교세포보다 배양된 미세아교세포에서 각각 20배와 4배 더 높습니다[94]. 산화 스트레스를 유발하기 위해 LPS/IFN 또는 TNF로 처리된 미세아교세포에서 미토콘드리아 MnSOD 발현이 상향조절되어 미토콘드리아 슈퍼옥사이드를 분해하는 세포의 능력이 향상되었습니다[90,95].
활성화된 소교세포의 SOD 활성 증가는 슈퍼옥사이드 유래 하이드록실 라디칼과 퍼옥시니트리트에 의한 세포 손상 위험을 감소시킵니다. 소교세포에서 GSH 퍼옥시다제(GPx)의 상향 조절은 산화 스트레스에 대한 중요한 메커니즘이기도 합니다. GPx 및 GSH 환원효소(GR)의 특정 활성은 뉴런보다 소교세포에서 상당히 높습니다[96-98].
그러나 카탈라아제의 특정 활성은 뉴런, 성상교세포, 안돌기교세포를 포함한 다른 뇌 세포 유형보다 미세아교세포에서 유사하거나 약간 낮았습니다[97,99]. 소교세포 GSH 이황화물(GSSG)은 H2O2에 노출된 후 전체 세포 GSH의 거의 30%까지 증가하지만, 소교세포 GSSG는 기본 조건에서 거의 검출되지 않습니다[98,100].
5. 항산화 방어 메커니즘의 뉴런-글리아 누화
뉴런은 미세혈관과 직접 접촉하지 않더라도 뇌 혈류를 통해 뇌 외부로부터 포도당과 산소의 지속적인 공급에 의존합니다. 그러나 뇌 모세혈관 표면의 99%는 성상교세포 말단-발 돌기로 덮여 있는데, 이는 뉴런이 뇌순환에서 필수 물질을 받기 위해 성상교세포와 상호작용해야 함을 나타냅니다[101].
성상교세포와 뉴런 사이의 누화는 ROS에 대한 신경세포 방어에 필수적입니다. 활성화된 성상교세포는 A1 및 A2 성상교세포와 같은 양손잡이 특성을 나타냅니다. A1 성상교세포는 NF-kB 경로를 통해 염증을 촉진하여 신경 세포 손실을 유발하며, 이는 신경 세포를 보호하고 시냅스 생성을 조절하는 능력을 상실합니다[102,103].
A2 성상교세포는 신경 영양 인자를 상향 조절하여 Janus 키나제/신호 변환기 및 전사 3(JAK-STAT3) 신호 전달 경로의 활성화 인자를 통해 신경 생존을 촉진합니다. 뉴런은 글루타메이트를 생성하는데, 이는 글루타메이트성 시냅스 활동 동안 성상교세포에서 아스코르브산 방출을 자극한 다음 아스코르베이트가 들어갑니다. 뉴런은 포도당 소비를 억제하고 젖산 수송을 자극합니다.
뉴런과 성상교세포 사이의 항산화 및 대사 상호작용은 그림 3에 설명되어 있습니다. 성상교세포는 GSH 생산과 포도당 전환을 통한 산화 스트레스를 조절하여 뉴런의 유지 및 지원을 담당하며, 이는 뉴런의 에너지 지원을 보장합니다[105]. 내재적인 항산화제 GSH 뉴런과 성상교세포 모두에서 생산되는 는 독립적인 ROS 제거제 및 항산화제의 기질로 작용합니다. 신경 세포는 성상교세포 유래 GSH에 의존합니다. 예를 들어 뉴런은 성상교세포에서 신경세포로 GSH 전구체의 이동에 의존합니다. 시스테인은 GSH 합성의 속도 제한 기질이며, 세포외 시스테인은 쉽게 시스틴으로 자동 산화됩니다.
시스틴 흡수는 성상교세포의 시스틴/글루타메이트 교환 수송체를 통해 발생하며, 그런 다음 성상교세포는 GSH 합성을 위해 시스틴을 시스테인으로 환원시킵니다. GSH는 ROS와 직접 반응하거나 GSH S-트랜스퍼라제 또는 GSH 퍼옥시다제의 기질로 작용합니다[50]. 시스테인 전구체인 세포외 시스틴의 효율적인 사용을 위해 뉴런은 뉴런이 GSH를 합성할 수 있음에도 불구하고 성상교세포에 의존하여 시스테인을 공급합니다[54,106].
성상교세포와 함께 배양할 때 신경 세포의 GSH 수준이 상당히 높은 것으로 나타났습니다[107]. H2O2-로 인한 산화 스트레스 시 노르아드레날린 치료는 성상교세포의 베타{4}}아드레날린 수용체를 자극하여 성상교세포에서 뉴런으로의 GSH 공급을 증가시켜 뉴런을 보호합니다[108]. 항산화 활성과 관련된 뉴런과 성상교세포 사이의 또 다른 상호작용에는 성상교세포-뉴런 젖산 셔틀과 아스코르브산염의 재활용이 포함됩니다[55]. 성상세포는 부성교세포-뉴런 젖산염 셔틀을 통해 신경 활동과 뇌 포도당 흡수를 연결하는 데 중요한 역할을 합니다[109].

신경 활동은 포도당 대사 내부교세포를 유발합니다. 포도당은 해당작용에 의해 피루브산으로 전환되고 젖산으로 전환되며, 이는 성상교세포에서 방출되어 산화적 인산화를 위해 뉴런에 의해 흡수됩니다. 뇌에 집중된 아스코르베이트는 신경교 저장소에서 세포외 공간으로 방출되어 뉴런에 의해 흡수됩니다. 고도로 활성화된 뉴런은 아스코르베이트를 데히드로아스코르브산(DHA)으로 산화시키는 ROS를 생성하고 아스코르베이트를 흡수하여 ROS를 제거합니다[110,111].
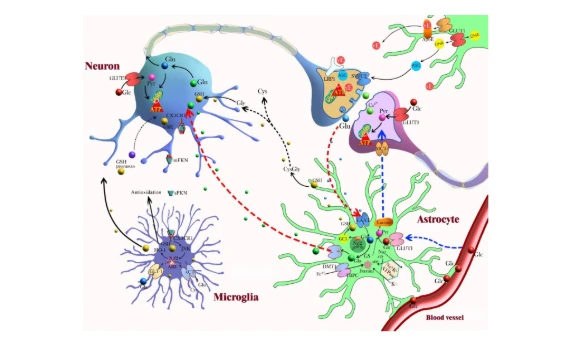
그림 3. 이 다이어그램은 신경 보호 및 항산화 방어 메커니즘에 관련된 뉴런-교세포 누화를 나타냅니다. 성상교세포-뉴런: 성상교세포에는 글루타티온(GSH), 아스코르베이트, 비타민 E(VE) 및 ROS 해독 효소를 포함한 다양한 항산화 분자가 포함되어 있습니다. , GSH S-트랜스퍼라제, GSH 퍼옥시다제, 티오레독신 환원효소 및 카탈라제와 같은.
성상교세포는 뇌 모세혈관 표면에 끝 발 돌기를 투사하여 성상교세포가 혈관 구획과 뇌 사이의 분자와 세포의 움직임을 제어하도록 합니다. 젖산염 셔틀에서 성상교세포는 포도당이 젖산염으로 변환되는 것을 조절하여 뉴런을 지원하며, 이는 뉴런의 에너지 지원을 보장합니다. 신경 활동은 성상교세포에서 포도당 대사를 유발합니다. 포도당은 해당과정에 의해 피루브산으로 전환되고, 성상교세포에서 방출되어 뉴런에 의해 흡수되는 젖산으로 전환됩니다(파란색 화살표).
성상세포는 Nrf2의 활성화를 통해 GSH를 합성할 수 있으며 GSH 합성을 위해 GSH 전구체를 뉴런으로 이동할 수 있습니다. 성상세포는 GSH를 세포외 공간으로 방출하고 뉴런은 GSH를 직접 흡수하거나 세포외 뉴런 아미노펩티다제 N을 사용하여 글리신과 시스테인을 형성합니다(검은색 화살표). 글루타메이트 흡수 및 재활용에서 시냅스 공간의 글루타메이트는 EAAT를 통해 성상교세포로 들어가고 글루타민 합성효소(GS)에 의해 비활성 글루타민으로 전환됩니다. 글루타민은 방출되어 뉴런으로 유입된 후 글루타메이트로 다시 전환될 수 있습니다(빨간색 화살표).
재활용된 아스코르베이트는 ROS를 직접 제거하고 산화된 vE 및 GSH의 재활용을 위한 보조인자 역할을 할 수 있습니다. 성상세포는 세포외 공간에서 아스코르브산염의 산화 생성물인 디히드로아스코르브산(DHA)을 흡수하여 다시 아스코르브산으로 재활용합니다. 성상세포는 과도한 세포외 K+를 Na+/K+ ATPase를 통해 성상교세포 융합체로 포획하고 운반합니다. 글루타메이트 시스테인 리가제(GCL)의 Nrf2 유도는 성상교세포에서 GSH 합성을 증가시키고 GSH는 이후 세포외 배지로 내보내집니다.
성상세포는 또한 산화환원 활성 금속에 의한 자유 라디칼 생성을 방지하기 위해 뇌의 금속 격리에 참여합니다. 소교세포 뉴런(Microglia-neuron): 소교세포는 높은 세포 GSH 농도를 함유하고 있으며 다양한 항산화 효소를 발현하고 상향 조절합니다. 고전적인 항산화 단백질의 발현은 Nrf2 inmicroglia에 의해 제어됩니다. Nrf2에 의해 상향 조절되는 항산화 효소인 Heme Oxygenase-1(HO-1)는 NOX2 활성화를 억제합니다.
프랙탈카인(FKN)은 신경 세포에서 주로 발현되며, 소교세포와 신경세포는 프랙탈카인 수용체(CX3CR1)를 독점적으로 발현합니다. 이는 통신을 위한 흥미로운 신호 축입니다. 약어: ARE, 항산화 반응 요소;ASC, 아스코르베이트; ApoE, 아포지단백질 E; xCT, 시스테인-글루타메이트 교환기; Cys, 시스테인; DHA, 데히드로아스코르브산; DMT1, 2가 금속 운반체; EAAT, 흥분성 아미노산 수송체; mFKN, 막 고정 프랙탈카인; sFKN, 가용성 프랙탈킨; CX3CR1, 프랙탈킨 수용체; Glc, 포도당; GLUT, 포도당 수송체; Glu, 글루타메이트; Gln, 글루타민; GSH, 글루타티온; GCL, 글루타메이트-시스테인 리가제; GS, 글루타민 합성효소; GLAST, 글루타메이트 아스파르테이트 수송체; GLT1, 글루타메이트 수송체 1; 글리, 글리신; HO-1, 헴 산소화효소-1; JNK, c-Jun 아미노말단 키나제; LRP, 지질단백질 수용체 관련 단백질; MCT, 모노카르복실레이트 수송체; Nrf2, 핵 적혈구 관련 인자 2; Pyr, 피루베이트; SVTC-2, 나트륨 의존성 수송체; TRPC, 일시적 수용체 전위 표준.
신경 전달 물질에서 글루타메이트의 과잉 자극은 많은 뇌 질환의 발병에 관여하는 흥분 독성을 유발합니다. 성상세포는 흥분성 아미노산 수송체1(EAAT1)/글루타메이트 아스파르테이트 수송체(GLAST) 및 EAAT2/글루타메이트 수송체-1(GLT1)라는 두 가지 주요 수송체를 사용하여 잘 확립된 글루타메이트-글루타민을 통해 글루타메이트를 흡수하고 글루타메이트를 뉴런으로 반환합니다. 글루타민을 글루타민산염으로 전환시키는 성상세포 특이적 효소인 글루타민 합성효소(GS)를 포함하는 주기입니다.
글루타민을 글루타메이트로 다시 전환하는 데 실패하면 시냅스전 말단의 글루타메이트 풀이 급속히 고갈되고 흥분성 신경 전달이 중단됩니다[112,113]. GABA성 뉴런에 대한 글루타민 공급이 부족하면 GABA성 기능 장애가 유발됩니다[114,115]. 성상교세포의 글루타민은 GABA성 뉴런에서 GABA-글루타민 회로로 알려진 글루타메이트 탈탄산효소에 의한 GABA 보충에 중요합니다.
신경 활동과 활동 전위는 제한된 공간에서 세포외 K+를 증가시키고, 엄격한 조절 메커니즘이 없을 때 과흥분성 막 전위를 유발합니다[117]. 성상세포는 막 K+ 채널의 수가 많고 K+ 투과성이 높습니다[118,119]. 성상세포는 과도한 세포외 K+를 포획하고 Na+/K+ ATPase를 통해 성상세포 융합체로 운반합니다.
성상교세포는 또한 성상교세포 칼슘 신호 전달과 성상교세포-뉴런 혼선을 통해 뉴런 내 Ca{0}} 농도를 조절합니다. 세포외 Ca2+의 감소를 유도하는 신경 활성화는 Ca2+를 통해 시공간 변화를 유발합니다. /Na+교환체는 성상교세포에서 세포질에서 세포외 공간으로 전파되는 성상교세포 Ca{5}}파를 생성합니다[120,121].

성상세포는 또한 기계에 매우 민감하며, 시냅스 활동으로 인한 세포외 Ca{0}}의 감소는 코넥신 43 반채널의 개방을 통해 성상교세포에서 ATP를 방출하게 합니다[122-124]. 신경 활동은 이중을 통해 성상교세포의 대사 변화를 유도할 수 있습니다 신경 기능을 지원하기 위해 포도당 동원 및 해당작용을 유발하는 Na+ 및 Ca{5}} 신호. 성상세포 대사는 신경 세포의 높은 대사 요구와 상관관계가 있습니다[125,126].
For more information:1950477648nn@gmail.com