백신 접종된 돼지의 마이코플라스마 하이오뉴모니아에 특이적인 면역에 대한 장기 추적조사
Sep 25, 2023
추상적인
Mycoplasma hypopnea mobile은 돼지 유행성 폐렴의 주요 원인균입니다. 이 질병으로 인한 경제적 손실을 최소화하기 위해 M. hypopnea 이동 백신 접종이 일반적으로 시행됩니다. 그러나 M. hyopneumoniae 백신에 의한 면역, 특히 세포 매개 면역이 도축 순간까지 지속되는지에 대해서는 아직 조사된 바가 없다. 따라서 두 상업용 농장에서 25마리의 돼지(n=50)에게 생후 16일에 상업용 박테린을 근육 내 투여했습니다. 매달 M. hyopneumoniae 특이적 혈청 항체의 존재를 분석하고 혈액 내 다양한 T 세포 하위 집합에 의한 TNF-, IFN- 및 IL{8}}A 생산의 증식을 회상 분석을 사용하여 평가했습니다. M. hyopneumoniae에 의한 자연 감염은 두 농장 모두에서 가정되었습니다. 그러나 연구 대상 돼지는 거의 전체 실험에서 M. hyopneumoniae 음성 상태를 유지했습니다. 백신접종 후 혈청전환은 관찰되지 않았으며 모든 돼지는 2개월령에 혈청음성으로 변했습니다. T 세포 하위 집합 빈도의 동역학은 두 농장에서 유사했습니다. 마이코플라스마 저호흡증 이동 특이 사이토카인 생산 CD4+CD8+ T 세포는 두 농장의 돼지 혈액에서 생후 1개월에 발견되었으나 연령이 증가함에 따라 크게 감소했습니다. 반면, 시험관 내 M. hyopneumoniae 자극 후 T 세포 증식은 비육 기간이 끝날 때까지 관찰되었습니다. 더욱이, M. hyopneumoniae 백신 접종 후 체액성 및 세포 매개성 면역 반응의 차이는 모체 유래 항체가 있는 돼지와 없는 돼지 사이에서 나타나지 않았습니다. 이 연구는 현장 조건에서 비육 돼지의 장기간 M. hypopnea 이동 백신에 의한 면역 반응을 문서화합니다. 이러한 반응에 대한 자연 감염의 영향을 조사하기 위한 추가 연구가 필요합니다.

남성의 면역체계 강화를 위한 시스탄체의 효능
Cistanche Enhance Immunity 제품을 보려면 여기를 클릭하십시오.
【추가 요청】 이메일:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
키워드
마이코플라스마 하이오뉴모니아, 돼지, 종단적 연구, 백신 유발 면역, 세포 매개 면역
소개
돼지의 가장 중요한 호흡기 병원체 중 하나는 Mycoplasma hyopneumoniae(M. hyopneumoniae)입니다. 이는 유행성 폐렴의 주요 원인균으로, 대부분의 농장에 풍토병이 있으며 전 세계적으로 돼지 생산에 상당한 경제적 손실을 초래합니다[1, 2]. 예방접종은 M. hyopneumoniae를 방제하기 위해 가장 일반적으로 사용되는 관리 방법으로 임상 징후와 성능 손실을 최소화하고 치료 비용을 줄일 수 있기 때문입니다[3]. M. hyopneumoniae 백신 접종의 목표는 자연적인 M. hyopneumoniae 감염 시 빠르고 효과적으로 반응하는 병원체 특이적 면역 반응을 높이는 것입니다. 대부분의 상업적으로 이용 가능한 돼지용 M. hyopneumoniae 백신은 생후 1~3주 사이에 투여하도록 등록되어 있습니다[4]. M. hypopnea 이동 특이적 면역의 시작은 1주에서 4주까지 다양하며 도살 때까지의 전체 비육 기간 동안 감염으로부터 보호하는 것을 목표로 합니다[4]. 전반적으로 돼지의 백신 접종이나 감염은 기억 B 세포와 CD4+CD8+ T 세포의 분화를 유발하여 병원체와 두 번째 접촉 후 빠른 항체 및 세포 매개 면역 반응을 보장합니다[5] . M. hyopneumoniae에 대한 백신 접종은 혈청전환을 일으키고 기도에서 국소적으로 M. hyopneumoniae 특이적 항체를 증가시킬 수 있습니다[6-9]. 백신 접종된 동물에서는 백신 접종을 받지 않은 동물에 비해 시험관 내 M. hyopneumoniae 자극 후 더 높은 수준의 IFN{13}}생성 림프구와 더 높은 림프구 증식 속도가 관찰되었습니다[9-11]. 또한, INF- 및 TNF-를 생성하는 다기능성 CD{17}}CD8- 및 CD4-CD{20}} T 세포가 M. hyopneumoniae 백신 접종 후에 발견되었습니다[12]. 그러나 M. hypopnea 모바일 특이적 백신에 의한 면역이 얼마나 오랫동안 지속되는지는 완전히 명확하지 않습니다. 대부분의 M. hyopneumoniae 백신 효능 연구에서 돼지는 이미 백신 접종 후 몇 주 후에 기침, 면역 매개변수, 병원체 부하 및 폐 병변을 조사하도록 챌린지되었습니다[13-16]. 주로 현장 시험을 통해 장기 효능을 연구할 때 종종 생산 매개변수와 도축 시 폐 병변만 검사하고 면역 매개변수는 조사하지 않았거나 제대로 조사하지 않았습니다[17-20]. 우리가 아는 한, M. hyopneumoniae 특이적 백신에 의해 유발된 세포 매개 면역은 백신 접종 순간부터 현장 조건 하에서 도축될 때까지 아직 조사되지 않았습니다. 새끼 돼지 예방접종 외에도, 번식 새끼 돼지에 대한 M. hyopneumoniae 예방접종이 일반적으로 사용되는 순응 관행입니다[21]. 마이코플라스마 하이오뉴모니아에(Mycoplasma hyopneumoniae) 특이적 사이토카인 생성 CD4+CD8+ 및 다기능 CD4−CD8− T 세포는 사육 동물의 백신 접종 후에 존재합니다[22]. 예방접종된 모돈의 초유를 빨아먹는 새끼 돼지는 혈액 내 높은 수준의 M. hyopneumoniae 특정 모체 유래 항체(MDA)와 세포 매개 면역을 가지며, 이는 젖을 떼거나 심지어 더 오랫동안 지속될 수 있습니다[7, 22, 23]. (높은 수준의) MDA가 있는 상태에서 새끼 돼지에 M. hyopneumoniae에 대한 예방 접종을 하면 혈청 전환이 부족한 경우가 많습니다[24-26]. 그러나 시험관 내 자극 후 림프구의 증식 반응은 MDA 수준에 관계없이 백신을 접종하지 않은 새끼 돼지에 비해 M. hyopneumoniae 백신을 접종한 새끼 돼지에서 유의하게 더 높았습니다[26]. 이 저자들은 높은 수준의 MDA 존재 하에서 M. hyopneumoniae 백신 접종 시 세포 매개 면역이 준비되었음을 보여주었지만, 이러한 세포 매개 면역 반응에 대한 더 나은 통찰력을 얻으려면 T 세포 하위 집합과 이들 사이토카인 생산의 추가 분화가 필요합니다. 그리고 결국 이러한 반응에 대한 자연 감염의 영향. 본 연구의 목적은 두 상업 농장의 돼지에서 M. hyopneumoniae 백신 접종 시 체액성 및 세포 매개성 면역 반응을 조사하는 것이었습니다. 이를 위해, 16일령의 백신접종 순간부터 도축 연령까지 다양한 T 세포 하위세트에 의한 혈청 항체와 증식 및 사이토카인 생산을 모니터링했습니다. 새끼 돼지의 체액성 및 세포 매개 백신 반응에 대한 M. hyopneumoniae 특이적 모체 유래 면역의 잠재적인 영향도 조사되었습니다.

cistanche 보충 혜택 - 면역력 증가
재료 및 방법
무리 설명 및 동물 선택
Two commercial farrow-to-finish farms were included in the study based on the willingness of the farmer to participate. On both farms, circulation of M. hyopneumoniae was assumed based on the presence of the pathogen in tracheobronchial swabs (TBS) taken from fattening pigs in the past. Danbred breeding gilts were reared on farm A and purchased on farm B. On-farm A, the breeding gilts were vaccinated once against M. hyopneumoniae four weeks before first insemination with Ingelvac MycoFLEX® (Boehringer Ingelheim Vetmedica GmbH, Ingelheim am Rhein, Germany). On-farm B, breeding gilts were vaccinated with Stellamune® Mycoplasma (Elanco, Utrecht, The Netherlands) at six months of age upon arrival at the farm and a second time four weeks later. Furthermore, on-farm B gilts were also booster-vaccinated twice shortly before farrowing. On both farms, sows were not vaccinated against M. hyopneumoniae. Farm A practiced a 5-week batch-farrowing system and piglets were weaned and moved to the nursery unit at approximately 22 days of age. The piglets were vaccinated at 16 days of age against M. hyopneumoniae with an inactivated whole cell J strain-based bacterin (Ingelvac MycoFLEX®, Boehringer Ingelheim Vetmedica GmbH, Ingelheim am Rhein, Germany), porcine circovirus type 2 (PCV2) (Ingelvac CircoFLEX®, Boehringer Ingelheim Vetmedica GmbH) and porcine reproductive and respiratory syndrome virus (PRRSV) (UNISTRAIN® PRRS, HIPRA, Amer, Spain). Pigs were moved to the fattening unit at 9 weeks of age. Farm B worked in a 4-week batch-farrowing system and piglets were weaned and moved to the nursery unit at approximately 22 days of age. Tey was vaccinated at 16 days of age against M. hyopneumoniae with the same vaccine as in farm A (Ingelvac MycoFLEX®, Boehringer Ingelheim Vetmedica GmbH) and PRRSV (UNISTRAIN® PRRS, HIPRA). The piglets were moved to the fattening unit at 10 weeks of age. On both farms, five breeding animals (two gilts and three sows of mixed parity) were included in the study. The growing process was monitored by the main investigator and from each litter, five healthy piglets (birth weight>1kg)을 선택하여 귀를 파고 출생부터 도축까지 매월 추적 관찰했습니다(n=25 새끼 돼지/농장). 귀가 있는 새끼 돼지의 교차 양육은 허용되지 않았으며 전체 실험 기간 동안 두 농장 모두에서 M. hyopneumoniae에 대해 활성을 갖는 항생제를 돼지에 투여하지 않았습니다.

cistanche tubeulosa - 면역 체계를 향상시킵니다.
연구 설계 및 샘플링
이 연구는 겐트대학교 수의학과 및 생명과학공학부 윤리위원회의 승인을 받았습니다(승인 번호 2020/31). 분만 과정에서 모돈으로부터 초유를 수집했습니다. 분만 후 6시간 이내에 TBS(60 cm 흡인 카테터, Medinorm GmbH, 독일 Spiesen-Elversberg)와 멸균 혈청 튜브의 혈액(응고된 혈액)을 모돈으로부터 수집했습니다. 생후 2일째에, 혈청 튜브를 통해 새끼 돼지로부터 혈액을 채취했습니다. 1개월부터 6개월령까지 매달 새끼 돼지로부터 멸균 혈청과 EDTA(비응고 혈액) 튜브에 담긴 혈액과 TBS를 채취했습니다. 농장 A에서는 돼지를 177일령에 도살하였으므로 마지막 샘플을 5.5개월령에 채취하였다. B 농장에서는 돼지를 191일령에 도살장으로 보냈기 때문에 마지막 샘플은 6개월령에 채취했습니다. 초유 및 혈청 샘플은 추가 분석까지 -20도에서, TBS 샘플은 -80도에서 보관했습니다. 세포 매개 면역 분석을 위해 응고되지 않은 혈액을 즉시 처리했습니다. M. hyopneumoniae DNA 검출을 위한 디지털 PCR M. hyopneumoniae의 존재 여부를 테스트하기 위해 상용 키트(DNeasy® Blood & Tissue 키트, Qiagen, Venlo, The 네덜란드)를 사용하여 TBS 샘플에서 DNA를 추출하고 디지털 PCR(dPCR)을 사용하여 DNA를 추출했습니다. ) P102 유전자를 표적으로 하는 프로토콜은 이전에 설명된 프로토콜에 따라 수행되었습니다[27]. Mycoplasma hyopneumoniae-특이적 항체 혈청 및 초유 시료의 Mycoplasma hyopneumoniae-특이적 항체는 제조업체의 지침에 따라 상업용 간접 ELISA(M. hyo Ab 테스트, IDEXX Laboratories Inc., Westbrook, ME, USA)를 사용하여 분석되었습니다. 샘플 대 양성(S/P) 비율이 0.40보다 높으면 샘플은 양성으로 간주되고, S/P 비율이 0.40 이하이면 음성으로 간주됩니다.
T 세포 사이토카인 생산
신선한 비응고 혈액으로부터 말초 혈액 단핵 세포(PBMC)를 Lym phoprep™ 밀도 구배(Stemcell Technologies, Van - - couver, Canada)를 사용하여 분리했습니다. PBMC의 분리, 자극 및 염색은 약간의 수정을 거쳐 이전에 설명한 대로 수행되었습니다[22]. 세포를 자체 제작한 M. hyopneumoniae J 균주 박테리아로 밤새(20시간) 자극하였고, 각 동물에 대해 음성 배지 및 양성 Concanavalin A(ConA) 대조군을 포함시켰습니다. M. hyopneumoniae J 균주 박테리아는 M. hyopneumonia F7.2 C 박테리아 생산을 위한 프로토콜을 기반으로 만들어졌습니다[16]. 사이토카인 생산을 조사하기 위해 Brefeldin A(eBioscience™, San Diego, CA, USA)를 자극 마지막 4시간 동안 각 웰에 첨가하여 단백질 분비를 억제했습니다. 세포외 염색을 위해 PBMC를 항CD3(클론 PPT3), 항CD4(클론 74-12-4) 및 항CD8(클론 11-295-33) 단클론 항체와 함께 배양했습니다. 다음으로 해당 2차 항체 항마우스 IgG1 APC-Cy7(Abcam, Cambridge, UK), 항마우스 IgG2b FITC(Biolegend, San Diego, CA, USA) 및 항마우스 IgG2a PE-Cy7(Abcam, Cambridge, UK) 추가되었습니다. 이어서, 마우스 IgG1(10 μg/mL)을 이용한 차단 단계를 수행했습니다. 표면 염색 후 세포를 고정하고 투과화한 다음 TNF-, IFN- 및 IL{32}}A에 대한 세포내 염색을 수행했습니다[22]. CytoFLEX 유세포 분석기(Beckman Coulter, Bea, CA, USA)를 사용하여 데이터를 수집하고 결과를 CytExpert 소프트웨어(Beckman Coulter)를 사용하여 추가로 분석했습니다. 게이팅 계층 구조는 추가 파일 1에 표시됩니다.
T 세포 증식 분석
분리된 PBMC를 자체 제작한 M. hyopneumoniae J 균주 박테리아로 시험관 내에서 자극하여 T 세포의 증식을 평가했습니다. 사용된 프로토콜은 이전 연구[22]에 자세히 설명되어 있습니다. 표면 염색을 위해 세포를 먼저 항 CD3, 항 CD4 및 항 CD8 단클론 항체와 함께 배양한 다음 해당 2차 항체 항 마우스 IgG1 APC-Cy7(Abcam, Cambridge, UK), 항 마우스 IgG2b와 함께 배양했습니다. FITC (Biolegend, San Diego, CA, USA) 및 항 마우스 IgG2a AlexaFluor 647 (Biolegend, San Diego, CA, USA)과 요오드화 프로피듐. CytoFLEX 유세포 분석기를 사용하여 데이터를 수집하고 CytExpert 소프트웨어를 사용하여 결과를 추가로 분석했습니다. 게이팅 계층 구조는 추가 파일 2에 표시됩니다.

cistanche tubeulosa - 면역 체계를 향상시킵니다.
데이터 분석
Statistical analyses were performed using IBM SPSS® Statistics Version 27 (IBM, Chicago, IL, USA) to compare results within farms. A descriptive analysis was performed for M. hyopneumoniae-specific antibody levels and the frequency of different T cell subsets. Kolmogorov-Smirnov and Shapiro-Wilk tests were used as tests for the normality of the residuals. For normally distributed data, repeated measures analyses of variance were used and post-hoc pairwise comparisons were made with a Bonferroni correction to assess possible differences between successive sampling moments. For not mally distributed data, a non-parametric Friedman test was used together with a Wilcoxon signed rank test with Bonferroni correction to compare the different sampling moments. Descriptive results were given to discuss whether the presence (S/P>MDA의 {{0}}.40) 또는 부재(S/P 0.40 이하)는 새끼 돼지 예방접종 후 체액성 및 세포 매개성 면역에 영향을 미쳤습니다.
결과
각 농장에서는 돼지 5마리가 사망 또는 귀표 분실로 인해 실험에서 제외되었습니다. 이 돼지의 데이터는 정확하게 기록된 마지막 샘플링 순간까지 분석에 포함되었습니다.
농장에서 M. hyopneumoniae의 자연 감염 존재
농장 A에서는 모든 TBS 샘플(암퇘지, 새끼 돼지 및 비육 돼지)에서 M. hyopneumoniae DNA의 존재에 대해 음성으로 테스트되었습니다. 농장 B에서는 암퇘지, 새끼 돼지, 비육 돼지의 모든 TBS 샘플에서 5개월령까지 M. hyopneumoniae DNA의 존재에 대해 음성으로 테스트되었습니다. 6개월령에 비육 돼지 4마리는 300, 7, 22, 14 M. hyopneumoniae 유기체/μL DNA로 M. hyopneumoniae에 대해 양성 반응을 보였습니다.
돼지에서 M. hyopneumoniae 특이적 항체의 지속성
두 농장 모두에서 모돈 5마리 중 4마리는 분만 시 혈청과 초유에서 M. hyopneumoniae 특이적 항체를 가지고 있었습니다(그림 1A 및 C). 해당 모돈의 초유를 빨아먹는 2일 된 새끼 돼지는 M. hyopneumoniae 특이적 모체 항체(MDA 존재)를 가지고 있었고, 혈청 음성 모돈의 새끼 돼지도 혈청 음성이었습니다(MDA 없음)(그림 1B 및 D). 16일령에 예방접종을 했음에도 불구하고, 두 농장 모두에서 돼지 혈청의 M. hyopneumoniae 특이적 항체 수준이 생후 2일에서 1개월까지, 1개월에서 2개월까지, 2개월에서 2개월까지 크게 감소했습니다. 3개월령(그림1E). 이후 샘플링 순간 사이에는 큰 차이가 나타나지 않았습니다. 생후 2개월부터 A 농장의 4개월령 두 마리를 제외한 모든 돼지는 M. hyopneumoniae 혈청음성이었습니다. MDA가 있는 새끼 돼지의 M. hyopneumoniae 특이적 항체 수준은 시간이 지남에 따라 감소했으며 생후 2개월에 MDA가 없는 새끼 돼지의 수준과 동일한 수준에 도달했습니다(그림 1F).
돼지의 T 세포 하위 집합 빈도의 동역학
돼지의 생애 동안 면역 체계의 성숙과 미생물과의 접촉으로 인해 혈액 내 다양한 T 세포 하위 집합의 빈도가 변합니다[28]. 다양한 T 세포 하위세트의 동역학을 조사하기 위해 비자극 배지 대조군의 혈액 PBMC를 유세포 분석법으로 평가했습니다. 1개월령 CD4− CD8+ T 세포의 빈도(평균 %)는 농장 A와 B의 돼지에서 각각 13.6±2.8%와 10.5±3.4%였습니다. 이 빈도는 두 농장 모두 생후 2개월에 크게 증가했고 농장 A에서는 생후 3개월에 다시 크게 감소했습니다. 생후 3개월부터 농장 A에서는 안정적으로 유지된 반면 농장 B에서는 6개월령에 다시 상당한 증가가 관찰되었습니다. 개월령(그림 2A). 두 농장 모두 생후 1개월째에 CD{13}}CD8− T 세포의 빈도가 37.5±6.0%(농장 A), 42.3±5.9%(농장 B)로 가장 높았습니다. 이 빈도는 생후 2개월에 크게 감소했습니다. 농장 A에서는 빈도가 2개월부터 안정화되는 반면, 농장 B에서는 감소가 더 점진적으로 발생했습니다(그림 2B). 생후 1개월령의 CD4/CD8 비율은 2.8(농장 A)과 4.{31}}(농장 B)이었습니다. 비율은 두 농장 모두 생후 2개월에 떨어졌고 생후 3개월부터 1.{52}} 미만으로 유지되었습니다. 1개월령 돼지의 CD4-CD8- T 세포의 빈도는 농장 A와 농장 B에서 각각 31.1±7.2%와 25.6±5.4%였다. 두 농장 모두에서 빈도는 생후 2개월에 유사하게 유지되었지만 이후 크게 증가하여 생후 5개월에 최고 수준에 도달했습니다(그림 2C). CD4+CD8+ T 세포의 빈도는 농장 A와 B에서 각각 3.3±1.1%와 4.{54}}±1.0%로 생후 1개월에 가장 낮았습니다. 이 빈도는 생후 2개월에 크게 증가했습니다. 농장 A에서는 이후 안정적으로 유지된 반면, 농장 B에서는 생후 4개월까지 점차 증가하여 5개월에 다시 크게 감소했습니다(그림2D).

그림 1 암퇘지와 돼지에서 마이코플라스마 하이오뉴모니아에 특이적인 항체의 존재. 에이,씨

그림 2 돼지 혈액 내 CD{1}} T 세포 하위 집합의 월간 빈도(%). ㅏ

그림 3. 돼지에서 순환 증식하는 CD{1}} T 세포의 지속성. 에이, 비
T 세포의 증식
M. hypopnea moniae로 자극된 PBMC를 분석하여 T 세포 증식 비율을 조사했습니다. 그림 3A와 B에서 볼 수 있듯이, M. hyopneumoniae 박테리아로 시험관 내 자극을 한 후 두 농장 모두에서 샘플링할 때마다 돼지의 혈액에 증식하는 CD{2}} T 세포가 존재했습니다. 농장 A. 농장 A에서는 생후 5개월의 비율에 비해 6개월령의 T 세포 증식 비율이 크게 감소한 반면, 농장 B에서는 증식하는 T 세포의 비율이 크게 감소하거나 증가하지 않았습니다. 관찰되다. Te CD4−CD8− T 세포는 두 농장 모두에서 M. hyopneumoniae 자극에 반응하여 증식하는 우세한 CD3+ T 세포 하위 집합이었으며, CD4+CD8− T 세포 하위 집합이 그 뒤를 이었습니다(그림 3 C 및 디).
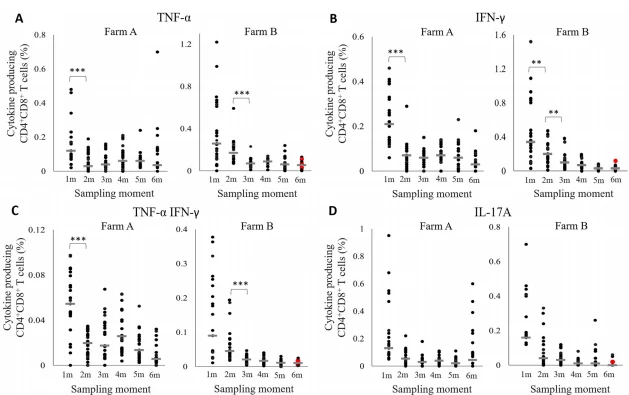
그림 4 두 농장의 돼지 혈액에서 순환하는 Mycoplasma hyopneumoniae 특정 사이토카인 생성 CD4+CD8+ T 세포. ㅏ
T 세포 사이토카인 생산
돼지에서 M. hyopneumoniae 특이적 T 세포의 존재 및 지속성에 대한 더 나은 통찰력을 얻기 위해 M. hyopneumoniae 박테리아로 시험관 내에서 자극된 혈액 PBMC에 의한 TNF-, IFN- 및 IL{3}}A 생산을 다음과 같이 평가했습니다. 유세포 분석. 그림 4에서 볼 수 있듯이, 두 농장 모두에서 자극된 CD4+CD8+ T 세포는 사이토카인을 생산했는데, 이는 더 어린 연령의 돼지에서 더 두드러졌습니다. TNF- + CD4+CD8+ T 세포의 비율은 농장 A의 돼지에서 1~2개월령, 농장 B의 2~3개월령에서 크게 감소했습니다. A IFN{10}} CD4+CD8+ T 세포의 현저한 감소는 두 농장의 돼지에서는 1~2개월령, 농장 B에서는 2~3개월령에서 관찰되었습니다. Te TNF-와 IFN-을 모두 생성하는 CD4+CD8+ T 세포의 비율은 농장 A에서는 생후 1~2개월, 농장 B에서는 2~3개월령 돼지에서 크게 감소했습니다. 연령에 따라 IL{17}}A+ CD4+CD{20}} T 세포의 비율이 생후 2개월의 비율에 비해 높았지만 이 차이는 통계적으로 유의하지 않았습니다. B 농장에서 6개월령에 M. hyopneumoniae 양성 반응을 보인 4마리의 동물은 M. hyopneumoniae 음성 동물과 비교하여 CD{21}}CD8+ T 세포에 의한 사이토카인 생산이 유사했습니다. CD4+CD8+ T 세포 하위 집합 외에도 농장 B의 다른 T 세포 하위 집합에 의한 사이토카인 생산의 차이도 관찰했습니다. 그림 5는 명확한 반응 데이터와 사이토카인 생산의 중요한 차이를 보여줍니다. 다른 T 세포 하위 집합은 농장 B에서만 발생했습니다. 다른 매개변수와 농장 A에서는 CD4−CD8+, CD4+CD8− 또는 CD4−의 사이토카인 생산에서 차이가 관찰되지 않았습니다. CD8− T 세포. TNF- + CD4+CD8− T 세포의 비율은 크게 증가한 반면, IFN- + CD4−CD8+ T 세포의 비율은 1개월에서 2개월 사이에 크게 감소했습니다. 나이. 주목할 만한 점은 6개월령에 M. hyopneumoniae 유기체/μL DNA가 7개이고 M. hyopneumoniae 양성이었던 돼지는 TNF- + CD4+CD8− 및 IL-17의 비율이 높았습니다. 혈액 내 A+ CD4−CD8+ T 세포. 6개월령의 다른 M. hyopneumoniae 양성 돼지는 M. hyopneumoniae 음성 돼지와 비슷한 비율의 사이토카인 생산 T 세포를 가지고 있었습니다.

그림 5 농장 B의 돼지 혈액에서 순환하는 마이코플라스마 하이오뉴모니아에(Mycoplasma hyopneumoniae) 특이적 사이토카인 생성 T 세포 하위 집합. A
각 농장에서 M. hyopneumoniae 특이적 MDA는 2일령 새끼 돼지 20마리의 혈청에 존재했고, M. hyopneumoniae 특이적 혈청 항체가 없는 암퇘지에서 나온 5마리 새끼 돼지의 혈청에는 없었습니다. MDA가 M. hyopneumoniae 백신으로 유발된 세포 매개 면역에 영향을 미치는지 조사하기 위해 MDA가 있는 새끼 돼지와 없는 새끼 돼지를 구별하고 두 그룹 간의 차이를 조사했습니다. 사이토카인 생산에서 차이가 관찰되었습니다(그림 6A-E). 농장 B에서 TNF- + CD4+CD8+ T 세포의 비율은 MDA가 있는 1개월 된 돼지에서 1개월 된 돼지에 비해 더 높은 경향이 있었습니다. MDA가 없는 돼지. 다른 사이토카인을 생성하는 CD4+CD8+ T 세포의 경우, 각 농장에서 생후 1개월령의 두 돼지 그룹 사이의 평균 비율은 유사했습니다. 시간이 지남에 따라 돼지의 혈액에서 사이토카인을 생성하는 CD4+CD8+ T 세포의 평균 비율이 감소하는 경향이 있었으며 6개월령에는 사이토카인이 있는 돼지와 없는 돼지 사이에 차이가 거의 없거나 전혀 없었습니다. MDA(그림 6A-C). 농장 B의 돼지 혈액에서 IFN- -생산 CD8+ T 세포에 대해서도 동일한 현상이 관찰되었습니다(그림 6D). 1개월령과 2개월령에 농장 B의 TNF- + CD4+CD8− T 세포의 평균 비율은 MDA가 있거나 없는 돼지와 유사했지만, 6개월령에는 더 높은 비율이 있었습니다 TNF{30}}생성 CD4+CD8− T 세포가 MDA가 없는 돼지의 혈액에서 관찰되었습니다(그림 6E).

cistanche 보충 혜택 - 면역력 증가
논의
이는 출생부터 도살까지 현장 조건에서 돼지의 장기간 M. hyopneumoniae 특이적 백신으로 유발된 면역 반응에 대한 통찰력을 제공하는 첫 번째 연구입니다. IDEXX ELISA로 평가한 혈청 내 체액성 면역 반응은 백신 접종 후 나타나지 않았지만 세포 매개 면역 반응은 나타났습니다. 시험관 내 M. hyopneumoniae 자극 후 T 세포의 증식이 비육 기간이 끝날 때까지 관찰되었습니다. 또한 생후 1개월에는 M. hyopneumoniae 백신 접종 후 기억 T 세포를 포함하는 M. hyopneumoniae 특이 사이토카인 생산 CD4+CD8+ T 세포가 존재했으나 연령이 증가함에 따라 감소하였다. . 모체 항체는 TNF- + CD4+CD8+ T 세포의 존재를 제외하고 돼지의 생애 동안 체액성 및 세포 매개성 백신 유발 면역 반응에 영향을 미치지 않는 것으로 보입니다. . 농장 수준에서 M. hyopneumoniae 백신 접종 새끼 돼지의 면역 반응의 지속성과 차이를 평가하기 위해 두 개의 상업용 농장을 포함시켰습니다. M. hyopneumoniae의 순환이 두 농장 모두에서 가정되었지만 연구 종료 시 농장 B의 4마리의 돼지를 제외하고 연구된 돼지는 전체 실험에서 M. hyopneumoniae 음성으로 남아 있었습니다. 자연 감염의 영향 없이 면역 반응. B 농장에서 6개월령의 M. hyopneumoniae PCR 양성 돼지 4마리는 PCR 음성 돼지에 비해 M. hyopneumoniae 특이적 항체 수준이 더 높지 않았습니다. 돼지 한 마리를 제외하고는 시험관 내 M. hyopneumoniae 자극 후 혈액 내 사이토카인 생산 T 세포의 비율이 더 높지 않았습니다. 이는 M. hyopneumoniae 감염이 샘플링 직전에 발생했을 가능성이 높으며 이로 인해 면역체계가 감염에 반응할 충분한 시간을 허용하지 않는다는 사실로 설명할 수 있습니다[29-31]. M. hyopneumoniae 양성 돼지 4마리 중 3마리에서 TBS 샘플의 병원체 부하도 다소 낮았습니다.

그림 6 모체 유래 항체 수준에 따른 마이코플라스마 하이오뉴모니아에(Mycoplasma hyopneumoniae) 특이적 사이토카인 생성 T 세포 하위 집합의 평균 비율. 교류
2일령 돼지의 혈청 항체 수준은 분만 시 모돈의 혈청 및 초유 내 M. hyopneumoniae 특이적 항체 수준과 일치하여 초유를 통해 M. hyopneumoniae 특이적 모체 면역이 전달되는 것을 확인했습니다[22, 23]. M. hyopneumoniae 백신 접종 후 16일령에는 혈청전환이 관찰되지 않았습니다. 반대로, M. hyopneumoniae-특이적 항체의 수준은 시간이 지남에 따라 감소했으며 모든 동물은 생후 2개월에 혈청 음성이 되었습니다. 본 연구에 사용된 상용 M. hyopneumoniae 백신은 단회 투여 후 제한된 혈청전환을 일으키는 것으로 알려져 있으며, 이는 이전 연구에서도 관찰되었다[14, 32, 33]. 이유 전후에 백신을 접종한 새끼 돼지에 대한 실험 연구에서 동물의 40%가 백신 접종 후 3주에 혈청 전환된 반면, 현장 실험에서는 돼지 40마리 중 3마리만이 백신 접종 후 7주에 혈청 전환을 보였습니다[14, 32]. 그러나 백신 접종 후 M. hyopneumoniae 특이적 혈청 항체의 존재(또는 부재)가 감염에 대한 보호(또는 부재)와 일치하지 않습니다[14, 25, 34]. M. hyopneumoniae와 같은 조건성 세포내 및 세포외 박테리아 병원체로부터 숙주를 보호하기 위해 CD{22}}CD8- T 보조 세포(주로 T1 및 T17 세포)가 중요한 역할을 합니다. T1 세포는 대식세포를 활성화하여 병원체를 죽이는 IFN- 를 생성하는 반면, T17 세포는 IL{29}}A를 생성하여 점막 장벽을 강화합니다[35-38]. 최근에는 낮은 비율의 M. hyopneumoniae 세포도 세포 내에서 발견될 수 있으며, 세포 내 병원체로부터 숙주를 보호하는 CD4−CD{33}} 세포 독성 T 세포의 중요한 역할을 고려하면 이러한 세포 독성 T 세포는 M. hyopneumoniae 감염을 통제하는 데에도 중요할 수 있습니다[31, 35, 39]. 다양한 T 세포 하위 집합 빈도의 역학과 시험관 내 M. hyopneumoniae 자극 후 이러한 T 세포의 증식 능력을 조사하기 위해 두 농장의 새끼 돼지로부터 PBMC를 분리했습니다. T 세포 하위 집합 빈도의 패턴은 이 두 농장에서 유사했습니다. 다른 연구에 따르면 어린 나이에 CD{37}}CD8− T 세포의 비율이 CD4−CD8+ T 세포의 비율보다 높다고 합니다. 연령이 증가함에 따라 CD{41}}CD8− T 세포의 비율은 감소하는 반면, CD4−CD8+ T 세포의 비율은 증가하여 시간이 지남에 따라 CD4/CD8 비율이 감소합니다[40-42]. 새끼 돼지는 CD4+CD8+ T 세포가 거의 없이 태어납니다. 이들 세포 중 일부는 병원체 특이적 기억 기능을 갖고 있기 때문에 돼지가 미생물과 접촉할 때 나이가 들수록 이러한 세포가 증가합니다 [5, 22, 42-44]. 그러나 농장 A에서는 CD{57}}CD8+ T 세포의 빈도가 생후 2개월 이후부터 동일한 수준을 유지했습니다. B 농장에서는 예상대로 생후 4개월까지 점진적인 증가가 있었지만 이후에는 CD4+CD8+ T 세포의 비율이 다시 감소했습니다. 이 연구에서 PBMC는 혈액 샘플링 후 직접 측정되지 않았지만 T 세포 하위 집단의 비율을 측정하기 전에 먼저 20시간 동안 배양되었기 때문에 T 세포 하위 집합을 다른 연구와 비교하는 것은 여전히 어렵습니다. Mycoplasma hyopneumoniae 특이적 CD3+ T 세포의 증식은 비육 기간이 끝날 때까지 지속되었으며, 이는 백신 접종 16일령 돼지의 혈액에서 M. hyo pneumoniae 특이적 T 세포의 존재를 확인시켜줍니다. M. hyopneumoniae 특이적 증식 T 세포의 존재는 유행성 폐렴에 대한 보호와 상관관계가 있을 수 있습니다. 왜냐하면 이전 연구에서 미토겐 ConA로 시험관 내 자극 후 PBMC가 증식하는 능력이 돼지의 질병에 대한 저항성과 상관관계가 있음이 입증되었기 때문입니다[45 ]. Te CD4−CD8− T 세포는 두 농장 모두에서 증식하는 주요 T 세포 하위 집합이었고 그 다음에는 시간이 지남에 따라 백분율이 변동하는 CD4+CD8− T 세포가 있었습니다. 돼지에서 대부분의 CD4-CD8- T 세포는 항원 특이적 T 세포와 달리 불변의 δ T 세포 수용체를 보유합니다[31, 42]. 돼지가 PRRSV와 같은 다른 병원체에 감염되면 δ T 세포는 PRRSV 바이러스혈증 이후의 주요 증식 반응자이기도 합니다[46]. 이러한 T 세포는 또한 돼지 열병에 대한 백신 접종 후 중화 항체 생산에 역할을 합니다[47]. 또한 Actinobacillus pleuropneumoniae에 감염된 돼지의 기관지 폐포 세척액에서 CD8-δ T 세포의 증가가 관찰되었습니다 [48]. M. hyopneumoniae 감염에 대한 제어 및 보호에서 δ T 세포의 역할을 조사하기 위해서는 추가 연구가 필요합니다. 회상 분석에서는 TNF-, IFN- 및 IL{84}}A 생산에 대해 다양한 T 세포 하위 집합을 평가했습니다. 생후 2개월에는 TNF- -, IFN- - 및 TNF-/IFN- -생산 CD4+CD8+ T 세포의 비율이 크게 감소했습니다. 생후 1개월의 비율과 비교합니다. 이후에는 백분율이 가변적이어서 시간이 지남에 따라 더 감소하거나 안정적으로 유지되었습니다. 통계적으로 유의하지는 않지만 IL{91}}A를 생성하는 CD4+CD8+ T 세포에서도 동일한 패턴이 나타났습니다. PRRSV 백신을 접종한 어미 돼지에서도 PBMC에 의한 IFN-생산이 최초 백신 접종 후 42일까지 관찰되었으나 이후 백신 접종 후 147일까지 감소했습니다[49]. M. hyo pneumoniae 백신 접종 후 IFN 분비 림프구의 수가 증가한 것이 이전에 입증되었습니다[9, 10].
사막 생활 시스탄체세뇨관
최근에는 하나 이상의 사이토카인을 생산하는 다기능성 T 세포가 병원체를 보호하고 제거하는 데 중추적인 역할을 한다는 증거가 축적되어 왔습니다. 예를 들어, 클라미디아 종에 감염된 돼지에서 다기능 CD{0}}CD8- T 세포는 보호와 상관관계가 있습니다[50]. M. hyo pneumoniae에 대한 새끼 돼지의 예방접종은 또한 다기능성 CD4+CD8− 및 CD4−CD8+ T 세포의 비율을 증가시켰습니다[12]. 또 다른 연구에서는 돼지에게 PCV2 백신을 접종한 결과, 백신 접종 후 24일에 TNF- +/IFN- + CD4+CD8+ T 세포 수준이 높아졌다가 다시 감소했습니다. 백신 접종 후 56일째에 연구가 끝날 무렵입니다[51]. 우리 연구에서 우리는 또한 사이토카인을 생성하는 CD4+CD8+ T 세포의 존재가 시간이 지남에 따라 감소하는 것을 관찰했습니다. 이 연구는 순환 혈액 림프구에 중점을 두었지만 백신 접종은 또한 폐 및 기관지 림프절에서 국소 M. hyopneumoniae 특이적 세포 매개 면역 반응을 유도합니다[8]. 따라서 M. hyo pneumoniae 특이적 백신 유발 면역에 대한 향후 연구는 국소 세포 매개 면역 반응에도 초점을 맞춰야 합니다. 또한, 새끼 돼지를 면역시키기 위해 본 연구에서는 단 하나의 상업용 M. hyopneumoniae 백신만 사용했습니다. 면역 반응은 백신의 제형(보조제와 항원)과 투여 경로에 따라 영향을 받기 때문에 백신마다 다를 수 있다[16, 52, 53]. 예를 들어, 사용되는 상업용 M. hyopneumoniae 백신의 보조제인 carbopol은 면역 반응을 T1 반응으로 유도하는 것으로 알려져 있습니다[54]. 각 농장에서 5마리의 새끼 돼지는 M. hyopneumoniae 혈청음성이었고, 20마리의 새끼 돼지의 혈청에는 M. hyopneu 이동 특이적인 MDA가 존재했습니다. MDA 상태와 관계없이 모든 돼지는 생후 2개월에 M. hyopneumoniae 혈청음성이었고 이후 시점에서는 혈청전환이 관찰되지 않았습니다. 우리의 연구 결과는 MDA 유무에 관계없이 7일 된 새끼 돼지에게 M. hyopneumoniae에 대한 백신을 접종한 이전 연구와 일치합니다[25]. 두 그룹 모두에서 백신접종 후 혈청전환은 관찰되지 않았으며 모든 돼지는 백신접종 후 42일에 혈청음성이었습니다. 반면, MDA가 존재하는 상태에서 M. hyopneumoniae 백신을 접종한 경우, 백신을 접종하지 않은 새끼 돼지에 비해 항체 수준이 높아지나 MDA 역가가 높을수록 반응이 낮아진다는 연구도 있었습니다[24, 26]. M. hyopneumoniae 백신 접종 후 항체 반응이 항상 관찰되는 것은 아니지만 M. hyopneumoniae 특이적 세포매개 면역반응이 유도된다[26]. M. hyopneumoniae 백신 접종 돼지에서 분리한 PBMC의 증식에는 MDA 수준에 관계없이 차이가 관찰되지 않았습니다[26]. 우리 연구에서는 각 농장 내에서 M. hyopneumoniae 백신 접종 돼지와 MDA가 없는 돼지 사이에서 1개월령의 사이토카인 생산 T 세포에 차이가 관찰되지 않았습니다. 농장 B에서만 MDA가 있는 새끼 돼지는 MDA가 없는 새끼 돼지에 비해 생후 1개월에 TNF{47}} CD4+CD8+ T 세포의 비율이 더 높은 경향이 있었습니다. 이러한 발견의 타당성은 M. hyopneumoniae 특정 MDA 유무에 관계없이 더 크고 동일한 양의 새끼 돼지를 포함하는 연구에서 추가로 조사되어야 합니다. MDA가 없는 그룹과 MDA가 있는 그룹의 동물 수가 적고 불평등하기 때문에 이 연구에서는 수행되지 않았기 때문에 10개의 통계 분석도 수행되어야 합니다. 결론적으로, 본 연구는 자돈의 M. hyopneumoniae 백신 접종 후 혈청전환이 부족함에도 불구하고 M. hyopneumoniae 특이적인 세포매개 면역반응이 검출되었음을 보여주었다. 다기능 사이토카인을 생산하는 CD4+CD8+ T 세포는 생후 3개월까지 존재하고, 비육 기간이 끝날 때까지 증식하는 T 세포가 관찰되어 병원체 특이적 세포 매개 면역이 있음을 나타냅니다. M. hyopneumoniae 백신접종 돼지에서. 결과는 현장 조건에서 자연 M. hyopneumoniae 감염이 백신 유발 면역에 미치는 영향을 평가하는 추가 연구의 기초를 형성합니다.
참고자료
1. 피터스 M, 매스 D (2019) 마이코플라스마증. In: Zimmermann JJ, Karriker LA, Ramirez A, Schwartz KJ, Stevenson GW, Zhang J (eds) Diseases of swine, 11th ed. 와일리, 뉴욕
2. Rycroft A (2020) 돼지 마이코플라스마 종의 일반적인 특성 및 분류. In: Maes D, Sibila M, Pieters M (eds) Mycoplasmas in Swine. Acco, 26-46페이지
3. Maes D, Segalés J, Meyns T, Sibila M, Pieters M, Haesebrouck F (2008) 돼지의 Mycoplasma hyopneumoniae 감염 관리. 수의사 미생물 126:297–309
4. Garza-Moreno L, Segalés J, Pieters M, Romagosa A, Sibila M (2018) Mycoplasma hyopneumoniae 감염을 통제하기 위한 어미 돼지의 순응 전략. 수의사 미생물 219:23–29 5. Saalmüller A, Werner T, Fachinger V (2002) 순진한 T 도우미 세포에서 헌신적인 세포까지. 수의사 면역 면역병리학 87:137–145
6. Ruiz AR, Utrera V, Pijoan C (2003) 이유 시 자돈의 집락 형성에 대한 Mycoplasma hyopneumoniae 모돈 예방접종의 효과. J Swine Health Prod 11:131–135
7. Sibila M, Bernal R, Torrents D, Riera P, Llopart D, Calsamiglia M, Segalés J (2008) Mycoplasma hyopneumoniae에 대한 암퇘지 예방접종이 암퇘지와 새끼 돼지의 집락화 및 혈청 전환, 도축 시 돼지 폐 병변에 미치는 영향. 수의사 미생물 127:165–170
8. Marchioro SB, Maes D, Flahou B, Pasmans F, Del Pozo Sacristán R, Vranckx K, Melkebeek V, Cox E, Wuyts N, Haesebrouck F (2013) 비활성화된 Mycoplasma hyopneumoniae를 근육 내 주사한 돼지의 국소 및 전신 면역 반응 백신. 백신 31:1305~1311
9. Martelli P, Saleri R, Cavalli V, De Angelis E, Ferrari L, Benetti M, Ferrarini G, Merialdi G, Borghetti P (2014) 비활성화된 Mycoplasma hyopneumoniae 백신을 피내 및 근육 내 주사한 돼지의 전신 및 국소 면역 반응. 수의사 미생물 168:357–364
10. Thacker EL, Thacker BJ, Kuhn M, Hawkins PA, Waters WR (2000) 돼지에 Mycoplasma hyopneumoniae 박테리아를 근육 내 주사하여 유도된 국소 및 전신 면역 반응 평가. Am J Vet Res 61:1384–1389
11. Seo HW, Han K, Oh Y, Park C, Choo EJ, Kim SH, Lee BH, Chae C (2013) 돼지에서 3가지 상업용 단일 용량 Mycoplasma hyopneumoniae 박테리아에 의해 유도된 세포 매개 면역의 비교. J Vet Med Sci 75:245–247
12. Matthijs AMF, Auray G, Jakob V, Garcia-Nicolas O, Braun RO, Keller I, Bruggman R, Devriendt B, Boyen F, Guzman CA, Michiels A, Haesebrouck F, Collin N, Barnier-Quer C, Maes D , Summerfield A (2019) Mycoplasma hyopneumoniae 박테리아에 대한 새로운 백신 제제의 시스템 면역학 특성 분석. 프론트 면역 10:1087
13. Villarreal I, Meyns T, Dewulf J, Vranckx K, Calus D, Pasmans F, Haeseb-rouck F, Maes D (2011) 사육 조건에 있는 돼지의 Mycoplasma hyopneumoniae 전염에 대한 예방접종의 효과. 수의사 J 188:48–52
14. Arsenakis I, Panzavolta L, Michiels A, Del Pozo Sacristán R, Boyen F, Haesebrouck F, Maes D (2016) 돼지의 실험적 공격 감염에 대한 이유 전과 이유 시 Mycoplasma hyopneumoniae 백신 접종의 효능. BMC 수의사 입술 12:63
15. 박 C, 정 J, 최 K, 채 C(2016) 실험 조건에서 돼지 서코바이러스 2형 및 마이코플라스마 하이오뉴모니아(Fostera™ PCV MH)에 대한 새로운 2가 백신의 효능. 백신 34:270–275
16. Matthijs AMF, Auray G, Boyen F, Schoos A, Michiels A, García-Nicolás O, Barut GT, Barnier-Quer C, Jakob V, Collin N, Devriendt B, Summerfield A, Haesebrouck F, Maes D (2019) Mycoplasma hyopneumoniae의 실험적 감염에 대한 세 가지 혁신적인 박테린 백신의 효능. 수의사 입술 50:91
17. Reynolds SC, St Aubin LB, Sabbadini LG, Kula J, Vogelaar J, Runnels P, Peters AR (2009) 약 1주차에 Mycoplasma hyopneumoniae 백신을 1회 투여한 후 25주 동안 공격한 돼지의 폐 병변 감소 시대의. 수의사 J 181:312–320
18. Wilson S, Van Brussel L, Saunders G, Taylor L, Zimmermann L, Heinritzi K, Ritzmann M, Banholzer E, Eddicks M (2012) 비활성화된 Mycoplasma hyopneumoniae 백신으로 생후 1주령의 새끼 돼지에게 예방접종을 하면 폐 병변이 감소하고 체중의 일일 평균 증가를 개선합니다. 백신 30:7625–7629
19. Del Pozo Sacristán R, Sierens A, Marchioro SB, Vangroenweghe F, Jourquin J, Labarque, Haesebrouck F, Maes D (2014) 나이든 비육 돼지의 혼합 호흡기 질환에 대한 초기 Mycoplasma hyopneumoniae 예방접종의 효능. 수의사 추천 174:197
20. Cvjetkovíc V, Sipos S, Szabó I, Sipos W (2018) 호흡기 질환을 앓고 있는 돼지 떼에서 마이코플라스마 하이오뉴모니아에 대한 두 가지 예방접종 전략의 임상적 효능. Porc 건강 관리 4:19
21. Garza-Moreno L, Segalés J, Pieters M, Romagosa A, Sibila M (2017) 유럽의 Mycoplasma hyopneumoniae 금테 순응 관행에 대한 조사. Porc 건강 관리 3:21
22. Biebaut E, Beuckelaere L, Boyen F, Haesebrouck F, Gomez-Duran CO, Devriendt B, Maes D (2021) Mycoplasma hyopneumoniae 특정 세포 매개 면역을 신생아 새끼 돼지에게 이전. 수의사 입술 52:96
23. Bandrick M, Ariza-Nieto C, Baidoo SK, Molitor TW (2014) 초유 항체 매개 및 세포 매개 면역은 새끼 돼지의 선천적 및 항원 특이적 면역에 기여합니다. Dev Comp Immunol 43:114–120
24. Hodgins DC, Shewen PE, Dewey CE (2004) Mycoplasma hyopneumoniae에 대해 백신을 접종한 신생아 새끼 돼지의 항체 반응에 대한 연령 및 모체 항체의 영향. J 돼지 건강 광고 12:10–16
25. Martelli P, Terreni M, Guazzetti S, Cavirani S (2006) 암퇘지 예방접종으로 유도된 모체 항체 유무에 관계없이 예방접종을 받은 돼지의 마이코플라스마 하이오뉴모니아 감염에 대한 항체 반응. J Vet Med 53:229–233
26. Bandrick M, Theis K, Molitor TW (2014) 모체 면역은 새끼 돼지의 Mycoplasma hyopneumoniae 예방접종으로 유발된 세포 매개 면역 반응을 향상시킵니다. BMC 수의사 입술 10:124
27. Beuckelaere L, Haspeslagh M, Biebaut E, Boyen F, Haesebrouck F, Krejci R, Meyer E, Gleerup D, De Spiegelaere W, Devriendt B, Maes D (2022) 다양한 국소, 선천적 및 적응성 면역 반응은 두 가지에 의해 유도됩니다. 상업용 Mycoplasma hyopneumoniae 박테리아와 보조제 단독. 프론트 면역 13:1015525
28. Gerner W, Mair KH, Schmidt S (2022) 돼지 바이러스 및 박테리아 감염 퇴치에서 국소 및 전신 T 세포 면역 통합. Annu Rev Anim Biosci 10:349–372
29. Calsamiglia M, Pijoan C, Bosch GJ (1999) 혈청학 및 중첩 PCR 기술을 사용하여 농장에서 이동하는 마이코플라스마 저호흡증을 프로파일링합니다. J Swine Health Prod 7:263–268
30. Pieters M, Daniels J, Rovira A (2017) 감염 초기 단계에서 마이코플라스마 하이오뉴모니아의 생체 내 검출을 위한 샘플 유형 및 진단 방법 비교. 수의사 미생물 203:103–109
31. Tizard IR(2018) 수의학 면역학, 10판. 미주리주 세인트루이스 엘스비어
32. Arsenakis I, Michiels A, Del Pozo Sacristán R, Boyen F, Haesebrouck F, Maes D (2017) 현장 조건에서 이유 시 또는 이유 직전에 Mycoplasma hyopneumoniae 예방 접종: 무작위 효능 시험. 수의사 추천 181:19
33. Betlach AM, Fano E, Vanderwaal K, Pieters M (2021) 어미 돼지의 Mycoplasma hyopneumoniae 감염 정도와 전염에 대한 다중 예방접종의 효과. 백신 39:767–774
34. Martínez-Boixaderas N, Garza-Moreno L, Sibila M, Segalés J (2022) 돼지 호흡기 질환 복합체와 관련된 가장 일반적인 병원체에 대한 새끼 돼지 조기 예방 접종으로 유발된 면역 반응에 대한 모체 유래 면역의 영향. Porc 건강 관리자 8:11
35. Schroder K, Hertzog PJ, Ravasi T, Hume DA (2004) 인터페론-: 신호, 메커니즘 및 기능 개요. J Leukoc Biol 75:163–189
36. Dobbs NA, Odeh AN, Sun X, Simecka JW (2009) 마이코플라스마 호흡기 질환에 대한 발병 및 저항성에 있어 T 세포 매개 면역의 다각적인 역할. 현재 동향 Immunol 10:1–19
37. Ge Y, Huang M, Yao Y (2020) 인터루킨-17의 생물학 및 패혈증에서의 병태생리학적 중요성. 프론트 면역 11:1558
38. Summerfeld A (2020) 돼지 마이코플라스마 감염에 대한 면역 반응. In: Maes D, Sibila M, Pieters M (eds) Mycoplasmas in Swine. Acco, pp 110–125
39. Raymond BBA, Turnbull L, Jenkins C, Madhkoor R, Schleicher I, Uphof CC, Whitchurch CB, Rohde M, Djordjevic SP (2018) Mycoplasma hyopneumoniae는 돼지 상피 세포 내에서 세포 내로 존재합니다. 과학 담당자 8:17697
40. Borghetti P, De Angelis E, Saleri R, Cavalli V, Cacchioli A, Corradi A, Mocchegiani E, Martelli P (2006) 신생아 새끼 돼지의 말초 T 림프구 변화: 성장 호르몬(GH), 프로락틴(PRL) 및 프로락틴(PRL)과의 관계 코티솔이 변화합니다. 수의사 면역 면역병리학 110:17–25
41. Brown DC, Maxwell CV, Erf GF, Davis ME, Singh S, Johnson ZB (2006) 출생 후 다양한 연령대의 신생아 돼지에서 T 림프구의 개체 발생 및 장 형태학적 특성. J Anim Sci 84:567–578
42. Stepanova H, Samankova P, Leva L, Sinkora J, Faldyna M (2007) 새끼 돼지의 출생 후 초기 면역 체계 발달: T 림프구 하위 집합의 재분배. 세포 면역 249:73–79
43. Hernández J, Garfas Y, Nieto A, Mercado C, Montaño LF, Zenteno E (2001) CD4 + CD8 +와 CD4 + CD{{5}의 비교 평가 } 돼지 루불라바이러스에 대한 면역 반응의 림프구. 수의사 면역 면역병리학 79:249–259
44. Blanc F, Prévost-Blondel A, Piton G, Bouguyon E, Leplat J, Adréoletti F, Egidy G, Bourneuf E, Bertho N, Vincent-Naulleau S (2020) 순환 백혈구의 구성은 연령과 흑색종 발병에 따라 다릅니다. MeLiM 돼지 생물의학 모델. 프론트 면역 11:291
45. Jeon RL, Gilbert C, Cheng J, Putz AM, Dyck MK, Plastow GS, Fortin F, Canada P, Dekkers JC, Harding JCS (2021) 질병의 지표로서 미토겐 자극 후 건강한 새끼 돼지의 말초 혈액 단핵 세포 증식 회복력. J 애니메이션 Sci 99:skab084
46. Kick AR, Amaral AF, Cortes LM, Fogle JE, Crisci E, Almond GW, Käser T (2019) 제2형 돼지 생식기 및 호흡기 증후군 바이러스(PRRSV)에 대한 T 세포 반응. 바이러스 11:796
47. Petersen B, Kammerer R, Frenzel A, Hassel P, Dau TH, Becker R, Breithaupt A, Ulrich RG, Lucas-Hahn A, Meyers G (2021) δT 세포가 결여된 TRDC 녹아웃 돼지의 세대 및 첫 번째 특성화. 과학 담당자 11:14965
48. Faldyna M, Nechvatalova K, Sinkora J, Knotigova P, Leva L, Krejci J, Toman M (2005) 다양한 유형 및 특정 보호 수준을 사용하는 새끼 돼지의 Actinobacillus pleuropneumoniae 감염 실험: 림프구 하위 집합의 면역 유전형 분석 순환 및 호흡기 점막 림프 조직. 수의사 면역 면역병리학 107:143–152
49. Sánchez-Matamoros A, Camprodon A, Maldonado J, Pedrazuela R, Miranda J (2019) 돼지 생식기 호흡기 증후군 바이러스 1에 대한 변형 생 바이러스 백신과 불활성화 백신의 병용 투여에 대한 안전성과 장기간 지속되는 면역 돼지 파보바이러스 및 Erysipelothrix rhusiopathiae에 대한 번식용 암퇘지 번식에 대한 효과입니다. Porc 건강 관리 5:11
50. Käser T, Pasternak JA, Delgado-Ortega M, Hamonic G, Lai K, Erickson J, Walker S, Dillon JR, Gerdts V, Mearens F (2017) Chlamydia suis 및 Chlamydia trachomatis는 돼지에서 다기능 CD4 T 세포를 유도합니다. 백신 35:91–100
51. Koinig HC, Talker SC, Stadler M, Ladinig A, Graage R, Ritzmann M, Hennig Pauka I, Gerner W, Saalmüller A (2015) PCV2 백신 접종은 다음에서 잠재적인 역할을 하는 IFN-/TNF- 공동 생산 T 세포를 유도합니다. 보호. 수의사 입술 46:20
52. Xiong Q, Wei Y, Xie H, Feng Z, Gan Y, Wang C, Liu M, Bai F, Xie F, Shao G (2014) 살아있는 Mycoplasma hyopneumoniae의 면역원성과 보호 효과에 대한 다양한 보조제 제제의 효과 근육 주사 후 백신. 백신 32:3445–3451
53. Maes D, Boyen F, Devriendt B, Kuhnert P, Summerfield A, Haesebrouck F (2021) 돼지의 Mycoplasma hyopneumoniae 백신 개선에 대한 전망. 수의사 입술 52:67
54. Gartlan KH, Krashias G, Wegmann F, Hillson WR, Scherer EM, Greenberg PD, Eisenbarth SC, Moghaddam AE, Sattentau QJ (2016) Carbopol에 의해 유도된 무균 염증은 병원체 관련 분자 패턴이 없을 때 강력한 적응성 면역 반응을 유도합니다 . 백신 34:2188–2196